3-Tümöre İnfiltre Olan Lenfositlerdeki Adrenerjik Reseptör, IFN- -bağımlı PD-L1 İfadesini Sürdürür ve Nöroblastomda Anti-Tümör Bağışıklığını Bozar
Oct 19, 2023
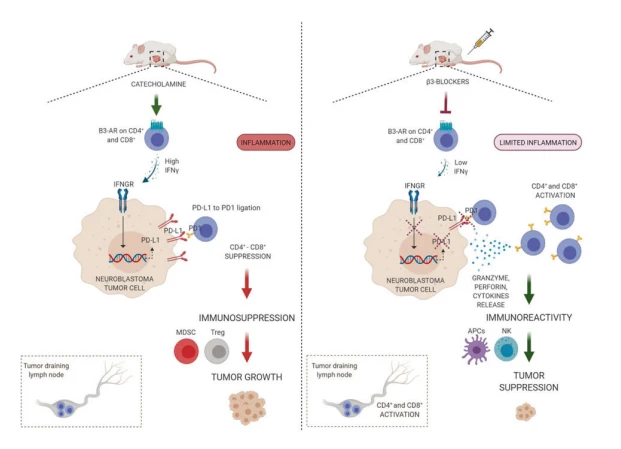
Nöroblastoma (NB), çocukluk çağında ortaya çıkan heterojen bir ekstrakranial tümördür. NB tümörlerinin ayırt edici bir özelliği, nöroendokrin katekolaminleri salgılama yetenekleridir; bu da -adrenerjik reseptör ligasyonu yoluyla tümör mikroçevresindeki (TME) farklı sinyal yollarını etkileyebilir. Daha önce, NB tümör hücreleri üzerindeki 3-adrenerjik reseptörün (3- AR) spesifik antagonizmasının, tümör büyümesini ve ilerlemesini etkilediği gösterilmişti. Burada, farelerde sinjeneik bir NB modelinde, 3-AR modülasyonunun konakçı bağışıklık sisteminin tümöre karşı tepkisini etkileyip etkilemediğini araştırmayı amaçladık. Sonuçlar, 3-AR antagonizmasının, kısmen PD-1/PD-L1 sinyal ekseni katılımına bağlı olarak bir bağışıklık tepkisinin yeniden aktivasyonuna yol açtığını gösterdi. Gerçekte, tümöre infiltre eden lenfositler (TIL'ler) üzerindeki 3- AR blokajı, bunların IFN- salgılama yeteneklerini azalttı; bu da NB tümör hücreleri üzerinde TIL'lerin infiltrasyonunun neden olduğu PD-L1 ekspresyonunu azalttı. NB hastaları üzerinde yapılan genomik analiz yoluyla yapılan ileri araştırmalar, yüksek ADRB3 gen ekspresyonunun, düşük ekspresyon grubuna kıyasla daha kötü klinik sonuçlarla ilişkili olduğunu ve ADRB3 gen ekspresyonunun bağışıklıkla ilişkili farklı yolları etkilediğini gösterdi. Genel olarak sonuçlar, NB TME'deki 3-AR'nin, tümör ile konakçının bağışıklık sistemi arasındaki etkileşimi modüle edebildiğini ve antagonizmasının birden fazla tümör öncesi sinyal yoluna çarptığını göstermektedir.
Grafiksel Özet
GİRİİŞ
Nöroblastoma (NB) karmaşık ve heterojen bir hastalıktır ve yaşamın ilk yılında teşhis edilen en yaygın kanser türüdür. NB, sempatik sinir sisteminin (SNS) gelişimi sırasında nöral kretin öncü hücrelerinden kaynaklanan bir nöroendokrin tümördür. Bu ayırt edici köken, genellikle adrenal bezde ve/veya sempatik ganglionlarda meydana gelen tümörün lokalizasyonunu belirler [1]. NB'nin klinik davranışı, kendiliğinden gerileyen tümörlerden, yoğun kemoterapi, cerrahi, radyoterapi, otolog kök hücre nakli ve retinoidlerin (13-cis-retinoik) uygulanması dahil olmak üzere mevcut tüm tedavilere dirençli hale gelen diğer tümörlere kadar oldukça değişkendir. asit) [2]. Bu nedenle yanıt vermeyen bu tümörler için alternatif terapötik hedeflere ihtiyaç vardır. İmmün kontrol noktası inhibitörlerine (ICI'ler) dayanan immünoterapi, birçok katı tümör için en umut verici stratejiyi temsil eder [3]. Diğerlerinin yanı sıra, programlanmış ölüm ligandı-1/programlanmış ölüm-1 (PD-L1/PD-1) sinyal ekseni, efektör T hücresi bağışıklığını bozar ve tümör hücrelerinin bağışıklık toleransını artırarak çok önemli bir rol oynar. hem fare hem de insan kanserlerinde anti-tümör tepkilerinin hafifletilmesinde rol oynar [4, 5]. Bununla birlikte, yetişkin kanserinde PD-1/PD-L1 sinyalinin altında yatan mekanizmaları zaten çok sayıda çalışma araştırmış olsa da, pediatrik tümörler hakkında çok az şey bilinmektedir. Katekolamin salınımı ve -adrenerjik reseptör sinyalinin aktivasyonu yoluyla SNS ile bağışıklık sistemi arasındaki karmaşık bir çapraz konuşma, birçok tümörde tümör ilerlemesinin kaderini belirleyebilmektedir [6]. Bu özellikle yüksek katekolamin düzeylerinin malignitenin ciddiyetini yansıttığı NB hastalarında doğru olabilir [7]. 3-adrenerjik reseptör (3-AR) alt tipi yakın zamanda kanserin kritik bir düzenleyicisi olarak tanımlanmıştır [8-10]. Özellikle, tümör mikro ortamının (TME) hem tümör hem de stromal hücrelerinde ekspresyonu ve aktivasyonu, farklı klinik öncesi modellerde tümörün ilerlemesinden sorumlu tümör öncesi sinyal yollarını ortaya çıkardı [11-14]. Burada, NB'nin genetik fare modelinde, tümöre infiltre eden lenfositler (TIL'ler) üzerindeki 3-AR'nin, tümör hücrelerinde IFN- -'ye bağlı PD-L1 artışını sürdürdüğünü ve bunun da sonuç olarak bir tümör oluşumuna yol açtığını gösterdik. Tümörün kaçışından sorumlu olan bağışıklık baskılayıcı TME. Buna ek olarak, 3-AR antagonizması, immün-reaktif CD8+, doğal öldürücü (NK) ve dendritik hücrelerin (DC'ler) sayısını artırmayı ve immün-baskılayıcı düzenleyici hücrelerin sayısını azaltmayı başardı. TME'de T hücreleri (Treg) ve Miyeloid türevli baskılayıcı hücreler (MDSC). Ayrıca, Kaplan-Meier analizi, yüksek ADRB3 gen ekspresyonunun NB hastalarının hayatta kalma oranının düşük olmasıyla ilişkili olduğunu gösterdi ve NB ekspresyonuna ilişkin mevcut farklı kamuya açık veri kümelerinin analizleri, ADRB3 gen ekspresyon seviyesi ile ilişkili sinyal yollarında yer alan genler arasında önemli bir korelasyon olduğunu ortaya çıkardı. bağışıklık sistemi/tümör etkileşimi.

Cistanche tubulosa'nın faydaları-Antitümör
YÖNTEMLER
Hücre kültürü
Neuro-2A fare NB kanser hücreleri ATCC'den (CCL-131) elde edildi ve %10 FBS, 2 mM L-glutamin, 100 U·ml-1 penisilin ve 100 U·ml-1 penisilin ile takviye edilmiş DMEM'de büyütüldü. ug·ml−1 streptomisin, suya doymuş, %5 CO2 atmosferinde 37 derecede. Nöro{13}}a hücreleri mikoplazma kontaminasyonu açısından rutin olarak test edildi.
Tümör singeneik fare modeli
4 haftalık dişi NCI A/JCr fareleri, Charles River Laboratories'den (Frederick) satın alındı. Nöro-2a hücreleri (N2A), sağ kanattan 100 ul PBS içinde 1 x 10⁶ hücre enjekte edilerek A/J alıcı farelere deri altından implante edildi. N2A hücreleri elle hissedilebilen bir tümör oluşturduğunda (yaklaşık 8 gün) tedavilere başlandı. Tedaviler, SR59230A (Tocris Bioscience) ve araç (fizyolojik çözelti) için günde iki kez ve PD-L1 antikoru (InVivoMAb anti-fare PD-L1 (B7-xhH1) #BE0101) için 8. günde ve 12. günde uygulandı. , Bio X Cell) ve izotip kontrolü (InVivoMAb sıçan IgG2b izotip kontrolü # BE0090, Bio X Cell). IgG2b izotip kontrolü uygulaması araçlarda aynı sonuçları vermiştir, dolayısıyla şekillerde yalnızca aracın durumu gösterilmektedir. SR59230A, intraperitoneal (ip) yoluyla fizyolojik çözelti içinde 10 mg/kg'da iletildi; 250 µg PD-L1, 100 µl InVivoPure™ pH 6,5 Seyreltme Tamponu (#IP0065) içinde ip olarak verildi; 250 µg IgG2b izotip kontrol faresi, 100 µl InVivoPure™ pH 7.0 Seyreltme Tamponu (#IP0070) içinde ip olarak verildi. FTY720 (#6176, Tocris Biotechne) ile tedavi, 6. günden itibaren os (po) başına 2 mg/kg olarak uygulandı. Tümör büyüme hızı, tümör kütlesinin bir kalibre ile ölçülmesiyle değerlendirildi ve tümör kütle hacmi, hacim {{ 41}} [(uzunluk × genişlik)2/2]. Fareler 8 günlük tedaviden sonra öldürüldü.
Western blot analizi
Hücreler toplandı ve proteaz inhibitör kokteyli içeren RIPA tamponunda parçalandı. Miktar belirlemenin ardından, bir SDS-PAGE ve WB analizini gerçekleştirmek için 20 ug toplam protein kullanıldı. PVDF membranları gece boyunca birincil antikorlar anti-PD-L1 (ab238697, Abcam), fosfo-CREB (ab32096, Abcam), CREB (ab32515, Abcam), p-PKA / / (sc- 32968, Santa) ile inkübe edildi Cruz Bioteknoloji), -actin (sc-1615, Santa Cruz Bioteknoloji), 3-AR (ab94506, Abcam) 4 derecede ve ardından belirli ikincil antikorlarla oda sıcaklığında 1 saat süreyle. Antikorların spesifik proteinlerle bağlanması, Clarity Western ECL Substrat (Bio-Rad) kullanılarak tespit edildi ve görüntüler Chemidoc Görüntüleme Sistemi (Biorad®) aracılığıyla elde edildi. Kantitatif analizler gerçekleştirmek için ImageJ yazılımı kullanıldı ve bantların sinyal yoğunluğu, kontrol değerlerine göre kat artış olarak ifade edildi.
PD-L1 sitoflorimetrik tahlil için ortak kültür
Tümör hücreleri MW24 (45,000 hücre/oyuk) üzerine ekildi ve 24 saat sonra, 2 gün boyunca Araç veya SR59230A (T2) ile önceden tedavi edilen farelerin TDLN'lerinden elde edilen lenfositlerle birlikte kültürlendi. 1:10 tohumlama oranı (tümör/lenfositler). Toplam inkübasyon süresinin (48 saat) sonunda, lenfositler, ortak kültür ortamıyla birlikte nazik pipetleme yoluyla geri çekildi ve ardından tümör hücreleri, trypsinizasyon yoluyla ayrıldı ve anti-PD-L1 antikoru (CD274 Antikoru {) ile işaretlendi. {17}}, eBioscience™) sitoflorimetrik ölçüm için. Lekeli hücreler bir MACSQuant Analizör 10 Akış Sitometresinde (Miltenyi Biotec, Gladbach, Almanya) elde edildi ve veriler Flowlogic yazılımı (Miltenyi Biotec, Gladbach, Almanya) kullanılarak işlendi.
PD-L1 immünofloresansı ve IFN ölçümü için ortak kültür
Tümör hücreleri, Nunc Lab-Tek bölme slaytı 4'teki mikroskop slaytlarına (20,000 hücre/oyuk) ekildi ve 24 saat sonra, 2 gün boyunca Araç ile tedavi edilen farelerin TDLN'lerinden elde edilen lenfositlerle birlikte kültürlendi. veya SR59230A (T2), 1:10 (tümör/lenfositler) tohumlama oranında. 48 saat sonra kültür ortamındaki lenfositler nazik pipetleme yoluyla toplandı ve daha sonra santrifüjleme yoluyla atıldı; Süpernatan, üreticinin talimatlarına göre Luminex xMAP teknolojisi aracılığıyla IFN'yi ölçmek için kullanıldı. Kısaca, ortak kültür ortamındaki IFN-kantifikasyonu, Bio-Plex Pro Fare Sitokin IFN-Seti (#171G5017M, Bio-Rad) kullanılarak gerçekleştirildi ve veriler MAGPIX Sisteminden (Luminex, Texas, ABD) elde edildi. Analiz, Bio-Plex Manager™ yazılımı (BIO-RAD, California, ABD) kullanılarak yapıldı. Mikroskop slaytlarındaki tümör hücreleri bunun yerine aşağıdaki gibi PDL1 immünofloresan tahlilini gerçekleştirmek için kullanıldı. İmmünofloresan analizi için hücreler, 20 dakika boyunca PBS içerisinde %3 paraformaldehit içerisinde sabitlendi. Geçirgenleştirme, PBS içinde Tween-20 0.5% içeren bir çözeltinin oda sıcaklığında 30 dakika süreyle eklenmesiyle elde edildi. Hücreler daha sonra 1 saat boyunca %3 BSA içerisinde bloke edildi ve birincil antikor anti-PD-L1 (ab238697, Abcam) ile 2 saat süreyle inkübe edildi. Daha sonra, PBS'de yıkamanın ardından slaytlar, Alexafluor 488 ikincil antikoru ile 1 saat süreyle inkübe edildi. Görüntüler bir floresan mikroskobu (DMi8 - Leica microsystems) kullanılarak elde edildi.

Çin otu cistanche bitkisi-Antitümör
1- 2- ve 3-AR susturma için lenfositlerin siRNA elektroporasyonu
TDLN'lerden elde edilen lenfositler, seçici 1- (SASI_Mm01_00090154, dizi: GUGAUCGUGGCCAUCGCCA, Merck), 2- (SASI_Mm{) için siRNA'larla transfekte edildi {5}}, sıra: CCAAGUUCGAGCGACUACA, Merck) ve 3-AR (SASI_Mm01_00145466, sıra: CAGUGGACGUGCUCUGUGU, Merck) susturma. Kısaca, lenfositler, 4D-Nucleofector X Birimi (Lonza) ve P3 Birincil Hücre 4D-NucleofectorTM X Kiti (V4XP-3024, Lonza) kullanılarak siRNA'lar (100 nM) ile elektroporasyona tabi tutuldu. Fare T hücresi elektroporasyonuna özel DN-100 programı gerçekleştirildi. Elektroporasyondan sonra lenfositler, TexMACS Ortamında (130-097-196, Miltenyi Biotec) 24 saat boyunca kültürlendi ve daha sonra PD-L1 ölçümü için daha önce açıklandığı gibi 48 saat boyunca N2A tümör hücreleriyle birlikte kültürlendi. -AR'lerin lenfositlerdeki susturma etkinliği dijital damlacık PCR ile aşağıdaki şekilde değerlendirildi.
-AR mRNA ölçümü için dijital damlacık PCR
RNA, iScript Gelişmiş cDNA Sentez Kiti (Bio-Rad) kullanılarak ters kopyalandı. ddPCR, üretim talimatlarına göre, bir QX200 sistemi (Bio-Rad) ve bir C1000 Touch Thermal Cycler (Bio-Rad) üzerinde Problar için ddPCR Supermix (dUTP Yok) (Bio-Rad) kullanılarak gerçekleştirildi. Kullanılan analizler şunlardı: Adrb3-FAM (dMmuCPE5088688), Adrb2-FAM (dMmuCPE5089938), Adrb1-FAM (dMmuCPE5100184), Rps18-HEX (dMmuCPE5196447). ddPCR verileri QuantaSoft™ yazılımı (versiyon 1.7.4, Bio-Rad) kullanılarak analiz edildi.
RNA dizilimi
Kesilen tümörler RLT tamponuna (Qiagen) yerleştirildi ve nazikMACS M Tüpleri (Miltenyi Biotec, Gladbach, Almanya) kullanılarak nazikMACS Octo Dissociator (Miltenyi Biotec, Glad bach, Almanya) ile mekanik olarak homojenleştirildi. Üreticinin talimatları takip edilerek RNeasy Plus Mini kiti (Qiagen) ile toplam RNA ekstraksiyonu gerçekleştirildi. RNA ölçümü, hem NanoDrop 2000/2000c Spektrofotometreler (ThermoFisher) hem de Qubit RNA Yüksek Hassasiyet (HS) (ThermoFisher) kullanılarak gerçekleştirildi. RNA bütünlüğü, Agilent Bioanalyzer'da Agilent RNA 6000 Pico Kiti kullanılarak değerlendirildi ve RNA bütünlük numarası (RIN) 6,00'dan düşük olan tüm numuneler hariç tutuldu. Kütüphane hazırlığı, üreticinin talimatına göre TruSeq Stranded Total RNA Library Prep Gold Kit (Illumina) kullanılarak, başlangıç olarak 500 ng toplam RNA girişiyle gerçekleştirildi. Kütüphane kalitesi, bir Agilent Bioanalyzer üzerinde bir Agilent DNA 7500 kiti kullanılarak değerlendirildi, ardından 1X dsDNA Yüksek Hassasiyet (HS) (ThermoFisher) kullanılarak kütüphane ölçümü yapıldı. Kütüphaneler, NextSeq 500/550 v2.5 (150 döngü) Yüksek Çıkışlı Reaktif Kitleri (Illumina) kullanılarak bir NextSeq 550 Sıralama Sisteminde (Illumina) dizildi. Çalışmalar 2 × 76 bp konfigürasyonla gerçekleştirildi.
mRNA ölçümü ve transkriptomik analizler
Transkriptlerin miktarının belirlenmesini gerçekleştirmek için haritalama bazlı modda Somon (v. 1.5.1) kullanıldı ve mus musculus'un referans transkriptomu GRCm38.98. Ortaya çıkan qf dosyaları, R istatistik dili ile analiz edildi. Verileri R'ye aktarmak için tximport paketi kullanıldı ve transkriptler, AnnotationDbi paketi ve org.Mm.eg.db veritabanı tarafından genlere daraltıldı. Son olarak istatistiksel analizleri DESeq2 ile gerçekleştirdik. Değişen hücresel yolları tespit etmek için GO: BP veritabanını sorgulamak ve elde edilen istatistiksel analizlerle birlikte ClusterProfiler paketini kullanarak bir Aşırı Zenginleştirme Analizi (ORA) gerçekleştirdik. Zenginleştirme analizi için genleri seçmek amacıyla log2FC eşiğini 0.5 (| log2FC|⋝ 0.5) ve düzeltilmiş p değerini 0 olarak ayarladık.{ {17}}5. Sonuçları 0,05'lik bir p değeriyle filtreledikten sonra, GO: BP veritabanına göre test edilen 15158 arasından istatistiksel olarak kuralsızlaştırılmış 45 süreç elde ettik.
Luminex sitokinlerinin ölçümü

cistanche tubulosa-bağışıklık sistemini iyileştirir
Cistanche Enhance Immunity ürünlerini görüntülemek için buraya tıklayın
【Daha fazlasını isteyin】 E-posta:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Fareler, Araç, SR59230A, PD-L1 ve SR59230A + PD-L1 ile 2 günlük tedaviden (T2) sonra kurban edildi ve tümör kütlesi makasla kesildi ve Bio-Plex Hücre lizis kiti (BIO-RAD, California) kullanılarak homojenleştirildi. , ABD) ve GentleMACS Octo Dissociator (Miltenyi Biotec, Almanya). Tümör lizatları daha sonra Luminex xMAP teknolojisine dayanan Bio-Plex Pro™ analizleri (BIO-RAD, California, ABD) ile sitokin konsantrasyonları açısından test edildi. IFN- , TNF- , IL-2, IL-6, IL-10, GM-CSF, IL-1 ve IL-1 seviyeleri (pg/ml) ) üreticinin talimatlarına göre ölçüldü. Veriler MAGPIX Sisteminden (Luminex, Texas, ABD) elde edildi ve analiz, Bio-Plex Manager™ yazılımı (BIO-RAD, California, ABD) kullanılarak yapıldı.
Akış sitometri analizi
Akış sitometri analizi, tümör hücreleri ve tümör mikro ortamının bağışıklık hücresi alt popülasyonları üzerinde aşağıdaki şekilde gerçekleştirildi. Kısaca, tümörler Tümör ayrışma kiti faresi (#130-096-730, Miltenyi Biotec) ile homojenleştirildi ve tümöre sızan lenfositler, CD45 (TIL) MicroBeads faresi (#130-110- 618, kullanılarak toplam hücre süspansiyonundan izole edildi. Miltenyi Biotec) veya CD8 (TIL) MicroBeads faresini (#130-116-478, Miltenyi Biotec) üreticinin talimatlarına göre otomatik Pro Ayırıcıdan (Miltenyi Biotec) geçirin. Hücreler daha sonra inkübe edildi ve farklı florokrom konjuge antikorların uygun şekilde seyreltilmiş çeşitli kombinasyonları ile boyandı (Ek Tablo 1). Lekeli hücreler, bir MACSQuant Analizör 10 Akış Sitometresi (Miltenyi Biotec®) kullanılarak analiz edildi ve veriler, Flowlogic yazılımı (Miltenyi Biotec®) kullanılarak işlendi.
Hücre ve dokuların immünofloresansı
Fare tümör kütlesinin immünofloresan analizi aşağıdaki şekilde gerçekleştirildi. Numuneler hızlı bir şekilde çıkarıldı, tamponlu %4 formaldehit içerisinde 24 saat süreyle sabitlendi ve parafine gömüldü. Örneklerden 5 µm kalınlığında histolojik kesitler kesildi, parafinden arındırıldı ve antijen geri kazanımı için sodyum sitrat tamponunda (10 mM, pH 6.0; Bio-Optica) 10 dakika kaynatıldı ve gece boyunca 4 derecede primer ile immün boyamaya tabi tutuldu. antikorlar (anti-PD-L1, ab238697, Abcam; anti- 3-AR, ab94506, Abcam; anti-CD4, 14-9766-82, eBioscience; anti-CD8, 14-0808-82, eBioscience; DBH, ab209487, Abcam). İkincil antikorlar Alexa Fluor 488- konjuge IgG veya Alexa Fluor 594-konjuge IgG (1:350; Jackson Laboratuvarı) ile inkübe edilen kesitlerde immün reaksiyon ortaya çıktı. 4,6-diamidino-2-fenilindol (DAPI) ile zıt boyamanın ardından temsili görüntüler, CellSens Dimension Imaging Software sürüm 1.6'ya (Olympus) bağlanan bir Olympus BX63 mikroskobu ile elde edildi. İmmünofloresan boyama, ilgili proteinin floresans yoğunluğu DAPI değerlerine normalleştirildiğinden ImageJ yazılımı (NIH, ABD) aracılığıyla değerlendirildi.

Cistanche tubulosa'nın faydaları-Antitümör
NB'li hastalarda Kaplan-Meier ve gen korelasyon analizi
ADRB3 geninin CD80, CTLA4, CD276, CD226, CD40LG, 4-1BBL'nin bağışıklık kontrol noktası genleriyle korelasyonu ve NB'li hastaların genel (OS) ve olaysız hayatta kalma (EFS) olasılığı ile ARDB3 düzeyleri arasındaki korelasyon mRNA ekspresyonu, 44 K oligonükleotid mikrodizileri kullanılarak oluşturulan 649 NB örneğinin gen ekspresyon profili kullanılarak gerçekleştirildi. Profiller ve klinik veriler R2'den alınmıştır: genomik analiz ve görselleştirme platformu (http://r2.amc.nl), (Kocak, özel ag44kcwolf, n=649 vaka). Dağıtımın son çeyreği, Kaplan-Meier analizinde yüksek ve düşük ADRB3 gen ekspresyonu için ekspresyon kesme değeri olarak kullanıldı.
İstatistik
İstatistiksel analiz, GraphPad Prism (GraphPad, San Diego, CA, ABD) kullanılarak tek yönlü veya iki yönlü varyans analizi (ANOVA) ve ardından Bonferroni post-hoc testi veya eşleştirilmemiş öğrenci t-testi kullanılarak gerçekleştirildi. İn vivo deneyler için, aynı hayvan modeli üzerinde yapılan önceki çalışmalara göre [12], %80'lik bir gücü garanti etmek için grup başına en az 6 fareye ihtiyaç vardı. Değerler ortalama ± SEM olarak sunulmuştur. P olduğunda anlamlılık dikkate alındı<0.05 and described in each figure legend. Allocation concealment was performed using a randomization procedure (http:// www.randomizer.org/).
SONUÇLAR
3-AR karşıtlığı, NB taşıyan A/J farelerinin tümör hücrelerinde PD-L1 ekspresyonunu azaltır
Son çalışmalar, NB'deki PD-1/PD-L1 sinyallemesinin, bağışıklık gözetimini sınırlamak için çok önemli bir mekanizmayı temsil ettiğini ve PD-L1 ekspresyonunun, yüksek seviyelerde tümör belirteçleri ile korele olduğunu gösterdi [15, 16]. Bunları ve 3-AR blokajının, melanom taşıyan farelerde bağışıklık açısından yetkin bir TME'yi ortaya çıkarma yeteneğini gösteren önceki verilerimizi hesaba katarak [13], NB tümöründe 3-AR'nin olup olmadığını merak ettik. antagonizm, PD-L1 sinyalleme katılımına bağlı olarak bağışıklık tepkisi aktivasyonuna yol açabilir. 3-AR antagonisti SR59230A'nın farelerde sinjeneik bir NB modelinde uygulanması, tümör büyümesini anti-PD-L1 antikoru mAb (PD-L1) tedavisinden daha büyük ölçüde azalttı, ancak hiçbir sinerjistik etki gözlenmedi fareler her iki ilaçla da tedavi edildiğinde (Şekil 1A, B). SR59230A uygulamasının getirdiği anti-tümör etkisinin kısmen PD-L1 ekspresyon modülasyonuna dayanıp dayanmadığını araştırmak için NB taşıyan farelerin TME'sindeki PD-L1 ekspresyon seviyesini test ettik. İlginç bir şekilde, fare tümör kütlesi üzerindeki immünofloresan (Şekil 1C) ve western blot analizi (Şekil 1D), araç durumuna kıyasla 3-AR antagonisti ile tedavi edilen farelerin TME'sinde PD-L1 ekspresyonunun azaldığını gösterdi. Kapsamlı literatür verileri, TME'de kanser hücrelerine ek olarak antijen sunan hücreler (APC'ler), MDSC, DC'ler ve makrofajlar gibi stromal hücrelerin de PD-L1'in ana kaynakları olduğunu gösterdiğinden [17-20], biz ayrıca TME'de PD-L1 ifade düzeyinin 3-AR blokajının ardından nerede etkilendiğini araştırdık. Sitoflorometrik analiz, 3-AR antagonizmasının, tümör hücrelerinde PD-L1 ekspresyonunu azalttığını (Şekil 1E), DC'lerde ve makrofajlarda ekspresyon seviyesini arttırdığını (Şekil 1F, G) ortaya çıkardı. MDSC popülasyonunda herhangi bir değişiklik gözlenmedi (Şekil 1H). Bu ilk sonuçlar, 3-AR blokajının, NB taşıyan farelerin singeneik modelinde önemli bir anti-tümöral aktivite gösterdiğini ve PDL1 antikorunun eş zamanlı uygulanmasının, bir anti-tümöral sinerjistik etkiyi tetiklemediğini göstermektedir. İlginç bir şekilde, 3-AR farmakolojik antagonizması, TME'de PDL1 ekspresyon seviyesini modüle etti; bu, 3-AR blokajının getirdiği anti-tümör eyleminde PD-L1 sinyallemesinin rol oynadığını ortaya koydu.
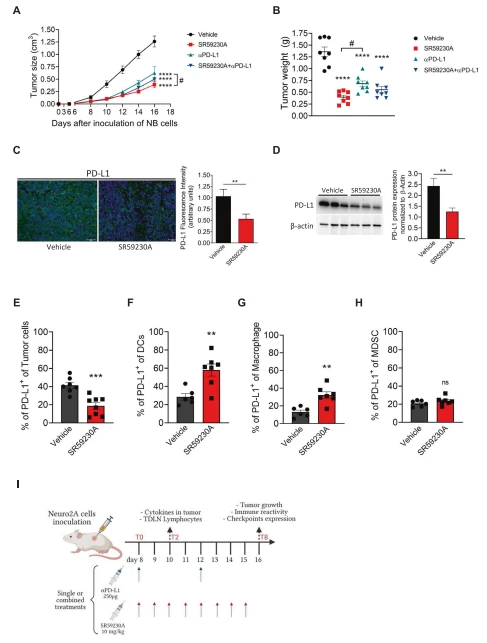
Şekil 1 SR59230A ve PD-L1 tedavilerinin NB tümör taşıyan farelerde tümör büyümesi ve PD-L1 ekspresyonu üzerindeki etkisi
3-AR antagonizması ve PD-L1'in uygulanması, NB'de immün-reaktif bir TME'yi uyarır
NB tümör hücrelerinde 3-AR antagonizmasını takiben gözlenen azalmış PD-L1 ekspresyonunun TME'de immün reaktivasyona yol açıp açmadığını araştırmak için öncelikle performans sayısını PD-1+CD{ ile değerlendirdik. Araçla karşılaştırıldığında SR59230A-, PD-L1- veya SR59203A + PD-L1- ile tedavi edilen farelerin tümör kütlesindeki {4}} hücre (Şekil 4A, B). Üstelik bir Ki67 boyama tahlili, 3-AR antagonisti veya PD-L1 antikoru ile tedavi edilen farelerin NB tümörlerinde CD8+ T hücrelerinin çoğalmasının arttığını gösteren bir eğilim gösterdi; bu, anlamlı düzeye ulaşmasa bile farklılıklar (Şekil 4C). Son olarak, sitokin ölçümü, PDL{20}} ile tedavi edilen farelerin tümör kütlesinde, TNF-, IFN- ve IL-6 gibi anti-tümöral etkiler gösterdiği bilinen sitokinlerin düzeyinin arttığını ve buna eşlik eden bir sitokin düzeyini gösterdi. bağışıklık baskılayıcı sitokin IL-10'nin azalması. Şaşırtıcı bir şekilde, 3-AR antagonisti ile tedavi edilen NB taşıyan farelerde, bağışıklık sistemine göre TNF- ve IL-6'de bir artış ve IL-10 düzeylerinde bir azalma gözlemledik. T hücresi özellikleri tarafından önerilen reaktif durum, ancak azalmış IFN- seviyesi (Şekil 4D). Test edilen diğer sitokinlerde (GMCSF, IL-2, IL-1 ve IL-1) anlamlı bir fark bulunmadı. Bu veriler birlikte, 3-AR antagonizmasının, NB taşıyan farelerin TME'sinde konakçı bağışıklık tepkisini tetiklediğini ve PD-L1 antikoru uygulamasını takiben gözlemlenen aynı etkilerin izini sürdüğünü göstermektedir. Özellikle CD8+ sitotoksik fonksiyonları hem SR59230A hem de PD-L1 tarafından güçlendirilmiştir. 3-AR antagonisti, PD-L1 antikoruyla birlikte uygulandığında hiçbir sinerjistik etki gözlenmedi; bu, 3-AR blokajının getirdiği bağışıklık yeniden aktivasyonunun en azından kısmen PD-L1 sinyallemesine dayandığını doğruluyor yol katılımı.
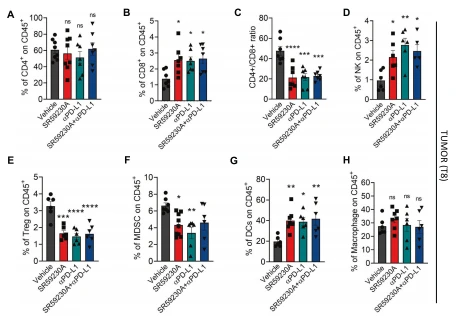
Şekil 2 SR59230A ve PD-L1, NB'de immün-reaktif bir TME'yi uyarır
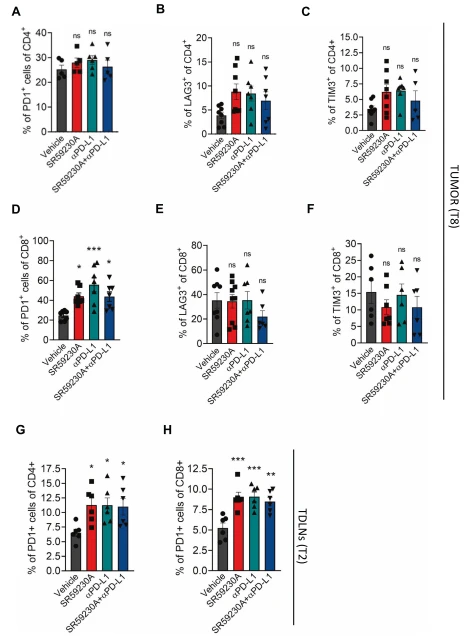
Şekil 3 3-AR antagonizmasını ve PD-L1 uygulamasını takiben TME ve TDLN'lerdeki lenfositler üzerindeki bağışıklık kontrol noktalarının ifadesi
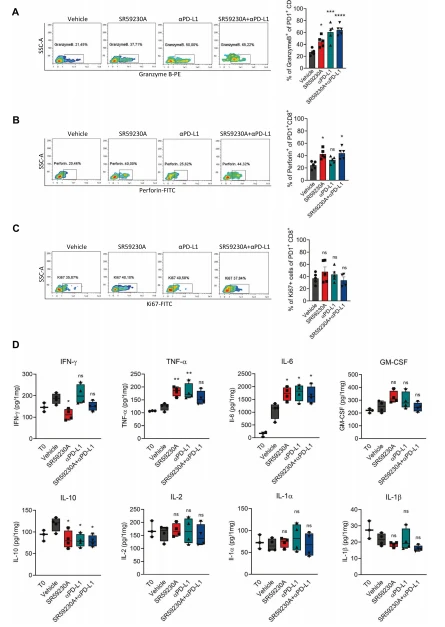
Şekil. 4 3-AR blokajı, CD8 işlevlerini tetikler ve TME'de bağışıklık sitokinlerinin salgılanmasını düzenler.
3-Tümöre infiltre eden lenfositlerdeki AR, IFN salgılanmasını modüle eder ve NB tümör hücrelerinde PD-L1 ekspresyonunu etkiler
PD-L1'in tümör hücrelerinde ekspresyonu çeşitli faktörler tarafından ortaya çıkarılabilir, ancak diğerlerinin yanı sıra TNF- ve IFN-, farklı tümörlerde PD-L1 seviyelerini artırabilen ana sitokinleri temsil eder [23]. NB tümör modelimizde 3-AR/PD-L1 çapraz konuşmasının altında yatan sinyali daha fazla aydınlatmak için, ilk olarak TNF- ve IFN- tedavisini takiben N2A tümör hücreleri üzerinde PD-L1 ekspresyonunu in vitro olarak analiz ettik. Sonuçlar, 48 saat boyunca IFN- ile tedavi edilen ancak TNF- ile tedavi edilen NB hücrelerinde PD-L1 ekspresyonunun yukarı regüle edildiğini gösterdi. Ayrıca, N2A tümör hücrelerinin 3-AR antagonisti SR59230A ile ön tedavisi, IFN tedavisinin getirdiği artan PDL1 ekspresyonunu ortadan kaldıramadı (Şekil 5A). Literatür verilerinin, uyarlanabilir bağışıklık tepkisi sırasında TIL'leri IFN-'nin ana hücresel kaynağı olarak tanıdığını [24] ve sonuçlarımızın, N2A tümör hücrelerindeki 3-AR modülasyonunun IFN- -bağımlı PD'yi etkilemediğini ortaya koyduğunu göz önünde bulundurursak -L1 ekspresyonunda, TIL'ler üzerindeki bir 3-AR modülasyonunun değişen IFN-sekresyonundan sorumlu olup olmadığını ve bunun da tümör hücrelerindeki PD-L1 ekspresyonunu etkileyip etkilemediğini merak ettik. Hipotezimizi kanıtlamak için, araçla veya SR59230A ile tedavi edilen NB taşıyan farelerin TDLN'lerinden elde edilen lenfositler izole edildi ve tümör hücreleriyle in vitro olarak birlikte kültürlendi. İmmünofloresan ve akış sitometri analizi, 3- AR antagonisti ile tedavi edilen NB taşıyan farelerden toplanan lenfositlerin, tedavi edilmeyen lenfositlere kıyasla N2A hücrelerinde PD-L1 ekspresyonunu tetikleme yeteneklerini azalttığını doğruladı (Şekil 5B, D). Ayrıca ortak kültür ortamındaki IFN seviyesi ölçümü, SR50230A ile tedavi edilen farelerden toplanan lenfositlerin, NB tümör hücreleriyle birlikte kültürlendiklerinde IFN- salgılama yeteneklerini kısmen kaybettiklerini doğruladı (Şekil 5C). 3-AR'nin çeşitli dokularda Gs proteinine bağlanabileceği ve bunun aktivasyonunun cAMP/PKA sinyal yolunun aktivasyonuna yol açtığı zaten gösterilmiştir [25]. Aynı zamanda çalışmalar, siklik AMP'ye yanıt veren element bağlanmasının (CREB), T hücrelerinde IFN-'nin pozitif transkripsiyonel düzenleyicisi olarak kritik rolünü kanıtladı [25-27]. Bu gözlemlerden yola çıkarak cAMP/PKA/CREB sinyal yolunun TIL'lerdeki 3-AR'ye bağımlı IFN salgısında yer alıp almadığını test ettik. Sonuçlar, 3-CD'nin AR antagonizmasının8+ TIL'lerin, PKA /PKA alt birimlerinin ve CREB'nin fosforilasyonunu azalttığını, bunun da CD8+ TIL'lerde IFN- ifadesinin azalmasına yol açtığını gösterdi (Ek Şekil 1A). , B). Bu sonuçlar, 3-AR'nin, cAMP/PKA/CREB sinyal yolunu tetikleyerek NB'nin TIL'lerinde IFN transkripsiyonunu sürdürebildiğini doğruladı. Öte yandan, araca kıyasla SR59230A ile tedavi edilen farelerin Treg'inde immünosüpresif sitokin IL-10 azaldı (Ek Şekil 1C), bu da 3-AR antagonist tedavisinden sonra NB TME'nin immün reaktivitesini doğruladı NB taşıyan farelerin SR59230A antagonizmasının 3-AR alt türü üzerindeki seçici etkisini doğrulamak için, 1-, 2- ve 3-AR için siRNA'larla susturulmuş lenfositlerle bir ortak kültür tahlili gerçekleştirdik alt türler. Sonuçlar, -AR alt tipleri arasında 3-AR için susturulmuş lenfositlerin, kontrol durumuna kıyasla N2A tümör hücrelerinde PD-L1 ekspresyonunu indükleme yeteneklerini kısmen kaybettiğini gösterdi (Şekil 5E ve Ek Şekil 1D). Ayrıca, NB taşıyan farelerin fare lenfositleri üzerinde 3-AR'nin protein ekspresyonu, TDLN'lerden (Ek Şekil 2A) elde edilen lenfositlerin western blot analizi ve CD4+ ve CD{{'nin immünofloresansı ile doğrulandı. Tümör kitle kesitlerinde 3-AR için boyanmış 90}} T hücreleri (Ek Şekil 2B). Daha önce, SR59230A tarafından N2A tümör hücreleri üzerindeki 3- AR'nin spesifik antagonizmasının, tümör hücrelerinin kökten farklılaşma özelliklerine geçiş yaparak NB büyümesini ve tümör ilerlemesini inhibe ettiğini göstermiştik [12]. Burada sonuçlarımız, 3-AR antagonisti uygulamasının anti-tümöral etkisinin aynı zamanda TIL'ler üzerindeki 3-AR sinyal modülasyonuna da dayandığını ve bunun da tümörlere karşı bağışıklık tepkilerinin yeniden canlanmasına yol açtığını ima etti. Bu nedenle, tezimizi in vivo olarak desteklemek için, TDLN'lerdeki T hücrelerini dizginlemek ve bunların tümör kütlesindeki infiltrasyonunu azaltmak için FTY720'yi uyguladık. FTY720, sfingozin 1-fosfatın (S1P) bir analoğudur ve uygulanması, S1P reseptörünün içselleştirilmesini ve bozunmasını indükler, böylece lenfositlerin lenf düğümlerinden çıkmasını önler [28]. Varsayılan olarak FTY720 ön tedavisi, 3-AR antagonisti uygulamasının getirdiği anti-tümör etkisini azalttı (Şekil 5F–H). FTY720'nin TDLN'lerdeki T hücrelerini dizginlemedeki etkinliğini doğrulamak için sekiz günlük (T8) tedaviden sonra TDLN'lerdeki T hücresi sayısını ölçtük. Sonuçlar, tedavi edilmemiş farelere (araç) kıyasla FTY720 ile önceden tedavi edilmiş farelerin TDLN'lerinde hem CD4+ hem de CD8+ hücrelerinin arttığını gösterdi (Ek Şekil 2C). S1P sinyallemesinin NB tümör hücrelerinin hayatta kalması için çok önemli olduğunu gösteren bizim ve diğer önceki sonuçlarımıza göre [12, 29], tek başına FTY720 ile tedavi de tümör büyümesini önemli ölçüde azaltabildi (Şekil 5F-H). Araçtan ve SR59230A ile tedavi edilen farelerden izole edilen NB tümör kütleleri üzerinde RNA dizileme analizi, 5607 gen tanımladı; bunların arasında 267'si diferansiyel olarak eksprese edilen genler (DEG'ler), 127'si yukarı regüle edildi ve 140'ı SR59230A ile tedavi edilen tümörlerde aşağı regüle edildi (Şekil 6A). Özellikle istatistiksel olarak diferansiyel olarak eksprese edilen birkaç gen, GO: BP veri tabanına göre bağışıklıkla ilişkili yollara aitti (Şekil 6B). Ayrıca, araç durumuna kıyasla SR59230A ile tedavi edilen tümörde PD-L1 mRNA'nın (CD274 geni) aşağı regülasyonu ve bağışıklıkla ilgili süreçlerde yer alan farklı diğer genlerin yukarı regülasyonu (Şekil 6C), 3-AR ile AR arasındaki korelasyonu doğruladı. protein düzeyinde gözlemlenen bağışıklık kontrol noktası PD-L1. Son olarak, NB'lerden etkilenen 34 hastadan oluşan halka açık bir veri seti (GEO arşivinden GSE14880) üzerinde diferansiyel gen ekspresyonu analizi, düşük ADRB3 ekspresyonuna sahip NB tümör kitlelerinin, immün tepkiler, T hücresi aktivasyonu ve immün efektörde pozitif bir düzenleme gösterdiğini doğruladı. yüksek ADRB3 seviyelerine sahip tümör kütlesiyle karşılaştırıldığında yollar (Şekil 6D). Farklı kanserlerde, katekolaminler kanserle ilişkili nöronlar yoluyla salınırken veya basitçe kan dolaşımı yoluyla tümöre ulaşırken, NB'de bu malignitenin benzersiz bir özelliği olan aşırı katekolamin ve bunların metabolitlerinin (HVA, VMA, dopamin) düzeylerinin ortaya çıkmasından kaynaklanır. farklı bir kaynaktan. Gerçekten de, NB hücrelerinin kendine özgü kökeni nedeniyle (nöronal tepenin kusurlu sempatik nöronal farklılaşma hücrelerinden), bu tümörler genellikle katekolaminleri kendi başlarına salgılayabilirler. Aslında, NB fare modelimizde, tümör kitleleri üzerindeki immünofloresan, NB tümör hücrelerinin, 3- ne olursa olsun, norepinefrin sentezinden sorumlu bir enzim olan Dopamin -Hidroksilaz (DBH) (Ek Şekil 3A) için pozitif olduğunu gösterdi. Tümörde AR ifadesi veya antagonizması. Birlikte ele alındığında bu veriler, NB tümörlerinde konakçı bağışıklık sistemi ile tümör mikro ortamı arasındaki etkileşimde yer alan farklı biyolojik süreçlerin düzenlenmesinde -adrenerjik sinyallemenin oynadığı önemli rolü vurgulamaktadır. Faregiller genetik modelimizde 3-AR antagonisti uygulamasını takiben gözlemlenen anti tümör etkileri, en azından kısmen, tümör kitlesine sızan lenfositler üzerinde ifade edilen 3-AR'nin modülasyonuna dayanır. Özellikle, TIL'ler üzerinde 3-AR'nin seçici blokajının IFN salgılanmasını azalttığını, bunun da immün reaktif bir TME'yi teşvik eden NB tümör hücreleri üzerindeki PD-L1 ekspresyonunu azalttığını gösterdik.
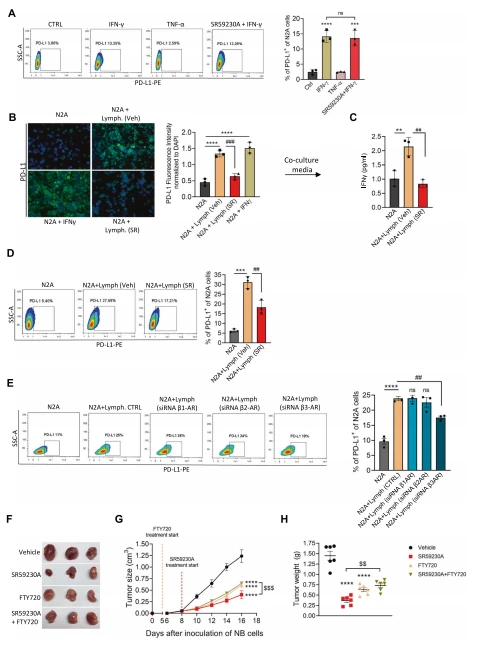
Şekil. 5 3-TIL'lerdeki AR, NB tümör hücrelerinde IFN- -bağımlı PD-L1 ekspresyonunu sürdürür. A
ADRB3 gen ekspresyonu NB hastalarında kötü prognozla ilişkilidir
Bazı çalışmalar, {{0}}AR mRNA'sının ve/veya proteininin aşırı eksprese edildiğini ve bazı durumlarda farklı insan kanserlerinde neoplastik proliferasyon ve transformasyon ile ilişkili olduğunu öne sürdü [10, 30–32]. Buna göre, NB'nin genetik fare modelinde elde edilen klinik öncesi sonuçlarımız, 3-AR sinyallemesinin, tümör büyümesini destekleyen farklı tümör öncesi süreçleri sürdürebildiğini gösterdi. Bu nedenle, ADRB3 gen ekspresyonunun NB hastalarının hayatta kalmasıyla korele olup olmadığını test etmek için, Koçak veritabanını kullanarak R2: Genomik Analiz ve Görselleştirme Platformu (http://r2.amc.nl) aracılığıyla bir Kaplan-Meier analizi gerçekleştirdik. 649 NB hastasının klinik verileri hakkında eksiksiz bilgi. Sonuçlar ADRB3 gen ekspresyonunun NB'li hastalarda kötü sonuçlarla ilişkili olduğunu gösterdi. ADRB3 geninin yüksek ekspresyonu, aslında olaysız (p=3.2e−05) (Şekil 7A) ve genel hayatta kalmanın azalması (p=8.4e−0.5) ile önemli ölçüde ilişkiliydi ( NB hastalarının Şekil 7B). Ayrıca, bazı kohortlarda yapılan bir gen korelasyon analizi, ADRB3 ile CD80, CTLA4 ve CD276 gibi inhibitör immün kontrol noktalarına yönelik genler arasında pozitif bir korelasyon ve CD266 gibi bağışıklık sistemini aktive eden immün kontrol noktalarına yönelik genler ile negatif bir korelasyon gösterdi. CD40 ligandı (CD40LG) ve 4-1BB ligandı (4-1BBL) (Şekil 7C). Genel olarak elde edilen veriler, ADRB3 gen ekspresyonunun NB hastalarının sonuçlarıyla negatif korelasyonunu vurgulamakta ve çoklu bağışıklık kontrol noktasını etkileyerek anti-tümör bağışıklık tepkilerini azaltabilen moleküler bir oyuncu olarak 3-AR'nin rolünü doğruluyor ve güçlendiriyor Sinyal yolları.
TARTIŞMA
Kendine özgü nörojenik kökeninden dolayı, yüksek seviyelerde katekolamin metabolitleri NB tümör durumunu karakterize eder [7, 33]. Önceki çalışmada, TME'deki katekolamin salınımının -AR'lerin aktivasyonu yoluyla kanser hücrelerini hedef alabileceğini ve NB kanserinde ileri beslemeli bir büyüme ve malignite döngüsünü tetikleyebileceğini öne sürmüştük. Aslında deneysel veriler, 3-AR'nin farklı NB tümör hücre dizileri ve hastalardan alınan biyopsiler üzerinde eksprese edildiğini ve bunun modülasyonunun, NB'nin sinjeneik bir fare modelinde tümör büyümesini önemli ölçüde etkilediğini gösterdi [12]. Tümör hücrelerinde -AR'lerin ekspresyonuna ek olarak -AR'lerin, bağışıklık hücreleri de dahil olmak üzere TME'deki çoğu hücrenin yüzeyinde yer aldığı ve bağışıklık hücrelerinde -AR'lere katekolamin ligasyonunun hem doğal hem de edinsel bağışıklığı düzenlediği yaygın olarak bilinmektedir. [34]. Fizyolojik koşullar altında bağışıklık sisteminin -adrenerjik sinyalleme yoluyla modülasyonu normal bağışıklık tepkisini desteklerken, değişen süreçlerde SNS/katekolaminler/-AR'lerin uzun süreli uyarılmasının lenfositler dahil farklı bağışıklık hücreleri üzerinde zararlı etkileri olabileceğini belirtmek gerekir. ] Bu değişen koşullarda, adrenerjik sinyallemenin sürekli uyarılması patolojik süreçleri ve diğerlerinin yanı sıra kanserin ilerlemesini teşvik eder [37]. Yukarıda belirtilen gözlemlerden yola çıkarak, çalışmamızın amacı, NB tümörlerinde 3-AR antagonizmasının getirdiği anti-tümör etkilerinin, kısmen anti-tümör bağışıklığının yeniden canlandırılmasına dayanıp dayanamayacağını ve bunun, bağışıklık kontrol noktaları sinyal yollarının modülasyonu. Klinik öncesi çalışmalar, metastatik NB'de PD-L1 ekspresyonunun, bağışıklık sürveyansını sınırlamak için çok önemli bir mekanizmayı temsil ettiğini [15] ve anti-PD-L1/PD-1 ve anti-CD4 antikorları ile kombine immünoterapinin sinjeneik dissemine NB'yi iyileştirdiğini ileri sürmektedir [15] 38]. Son zamanlarda, çeşitli pediatrik tümörlerde PD-L1 ekspresyonu değerlendirildi ve hepsinden önemlisi, PD-L1 boyaması, NB'li hastalarda daha düşük sağkalım ile ilişkilendirildi [16, 39]. Ayrıca, PD-L1-pozitif tümörlerin adrenal bezde PD-L1-negatif tümörlerden daha sık yer aldığı ve katekolamin metabolitlerinin (NSE, VMA ve HVA) daha sık olduğu gösterilmiştir. PD-L1-pozitif grupta PD-L1-negatif gruba göre daha yüksektir [16].

cistanche tubulosa-bağışıklık sistemini iyileştirir
Bu kanıt, PD-1/PD-L1 sinyal ekseninin primer ve metastatik NB'de tümör immün kaçışını kontrol etme yeteneğini ortaya koydu, ancak PD-1/PD-'nin altında yatan kesin mekanizmaları incelemediler. L1 sinyal düzenlemesi. 3-AR modülasyonunun NB'deki PD-L1 ekspresyonunu ve bunun sonucunda TME'deki bağışıklık reaktivitesini etkileyip etkilemediğini araştırmak için, sinjeneik N2A NB hücreleriyle aşılanan A/J farelerini 3- ile tedavi ettik. AR antagonisti SR59230A, bir PD-L1 monoklonal antikoru (PD-L1) veya bunların kombinasyonu. İlk olarak, 3-AR antagonizmasının NB tümör büyümesini azaltabildiğini ve bununla birlikte NB taşıyan farelerin TME'sinde PD-L1 ekspresyonunu azaltabildiğini gözlemledik. Akış sitometrisi, SR59230A ile tedavi edilen farelerin tümör kütlesinde gözlemlenen azalan PD-L1 miktarının çoğunlukla tümör hücrelerinin azalan ekspresyonunu yansıttığını ortaya çıkardı. Tam tersine, DC'ler ve makrofajlar üzerindeki PD-L1 ekspresyonu yukarı doğru düzenlenmiştir. Hem tümör hücrelerinde hem de APC'lerde bulunan PD-L1'in, tümöre karşı etkili bir bağışıklık reaksiyonunu kısmen engelleyerek T hücresi aktivasyonunu azaltma kapasitesine atfedilen birçok bilimsel kanıt vardır [40]. Bununla birlikte, son araştırmalar, adaptif bağışıklıkta çok önemli bir adım olan antijen alımı ve tümör antijenlerinin T hücrelerine çapraz sunumu sırasında, DC'lerin ve makrofajların PD-L1'i yukarı regüle ettiğini, böylece T hücrelerinin aşırı aktivasyonunu sınırladığını ve onları hücrelerin sitotoksik aktivitelerinden koruduğunu göstermiştir. T hücreleri [41, 42]. Bu nedenle, tümör hücrelerinde PD-L1 ekspresyonunun azalmasının ve bunun SR59230A ile tedavi edilen tümör kütlesindeki APC'lerde eşlik eden artışının muhtemelen TME'de bir bağışıklık sisteminin yeniden canlanmasını yansıttığını varsaydık. Sonuçlar, tümöre sızan bağışıklık reaktif hücrelerin (NK, DC'ler ve CD8+) sayısının arttığını ve tümöre sızan bağışıklık baskılayıcı hücrelerin (Treg ve MDSC) azaldığını doğruladı. TIL'lerdeki bağışıklık kontrol noktası PD-1'nin ekspresyon analizi, TDLN'lerde PD-1+CD4+ ve PD- 1+CD8+ T hücrelerinin sayısında önemli ölçüde artış olduğunu gösterdi. kontrole kıyasla SR59230A, PD-L1 veya bunların kombinasyon tedavisinden 8 gün sonra (T8) tümörde tümör gelişiminin (T2) ve PD-1+CD8+'nin erken aşaması. SR59230A tümörlerinde, PD-L1 tedavilerinde ve bunların kombinasyonunda TIM3 veya LAG3 için boyanmış CD4+ T hücrelerinin sayısında da bir artış eğilimi kaydedildi, ancak bunlar istatistiksel anlamlılığa ulaşamadı. TIM3 veya LAG3 için boyanmış CD8+ T hücreleri için bunun yerine büyük bir değişkenlik gözlemledik. Bazı literatür verileri PD-1, LAG-3 ve TIM-3 eksprese eden T hücrelerinin tükendiğini ve işlevsiz olduğunu öne sürerken [43-45], diğerleri bu bağışıklık kontrol noktalarının, özellikle PD'nin, -1, ayrıca aktivasyon ve efektör T hücresi farklılaşmasını takiben yukarı doğru düzenlenir [46-48] ve bu nedenle ifade kendi başına tükenmiş bir durumu yansıtmaz, daha ziyade bu belirteçler, farklı tümörlere sızan otolog tümör reaktif repertuarını tanımlar [46– 49]. Buna uygun olarak, tümör modelimizdeki daha derin araştırmalar, anti-PD-L1 mAb ile tedavi olarak 3-AR antagonizmasının, artan PD sayısının da gösterdiği gibi, CD8+'nin sitotoksik fonksiyonlarını tetiklediğini doğruladı. Performans veya granzim B için boyanmış 1+CD8+ hücreleri, tümör kitlesinde bulunan PD1+ TIL'lerin işlevsel olarak aktif olduğunu doğrulamaktadır. Tümörde CD{84}} sitotoksik T hücrelerinin yüksek infiltrasyonunun, melanom, baş ve boyun, meme, kolorektal, yumurtalık, prostat ve diğer kanserler dahil çeşitli maligniteleri olan hastalarda pozitif prognoz ile ilişkili olduğu gösterilmiştir [50]. NB'de yakın zamanda yapılan bir çalışma, tümör infiltre eden T hücrelerinden zenginleştirilmiş tümörlerin, tümör evrelemesi için benimsenen diğer güncel göstergelerden bağımsız olarak daha iyi bir klinik sonuca sahip olduğunu gösterdi [51]. Üstelik son bulgular, tümör kütlesinde DC ve NK hücrelerinin varlığının, hem T hücre infiltrasyonu hem de NB hastalarının pozitif klinik sonuçları ile pozitif korelasyon gösterdiğini göstermiştir [52]. Tüm bu klinik kanıtlar, 3- AR antagonizması veya PD-L1 uygulamasının ardından gözlemlenen NK, DC ve CD{89}} T hücrelerinden zenginleştirilmiş bir TME'nin işlevsel olarak NB tümör büyümesini kontrol edin. Konakçı bağışıklık sisteminin tümörlere karşı mücadelesinin temel bir yönü, TME'de anti-tümöral aktiviteleri sürdürebilen veya azaltabilen farklı sitokinlerin salınmasıdır. Tümördeki sitokinlerin ölçümü, SR59230A ve PD-L{97}} ile tedavi edilen farelerde, durumun immün reaktif TME'ye doğru kaydığını doğruladı. Ancak anti-tümör sitokinleri arasında TNF- ve IL{101}} düzeylerinin her ikisi de artarken, 3-AR antagonisti ile tedavi edilen farelerin tümör kütlesinde IFN- düzeyi düştü. Bu gözlemden yola çıkarak, 3-tümöre infiltre eden T hücrelerindeki, özellikle CD{107}} ve CD{108}} üzerindeki AR sinyalinin modülasyonunun, değişen IFN-'den sorumlu olabileceğini varsaydık. bu da tümör hücrelerinde PD-L1 ekspresyonunu etkiledi. Sonuçlar hipotezimizi doğruladı. TIL'ler üzerindeki seçici 3-AR antagonizması, aslında bu hücreleri, değişen IFN- salgılaması nedeniyle NB tümör hücreleri üzerinde PD-L1 ekspresyonunu indüklemede verimsiz hale getirdi ve fiilen adaptif bir bağışıklık direncinin oluşmasını engelledi. TME'de IFN-, tümör hücrelerine saldırmak için granzim B ve perforin ile birlikte sitotoksik bir sitokin görevi görerek hem pro-tümörojenik hem de antitümör immün tepkilerini düzenler, ancak aynı zamanda inhibitör immün kontrol noktalarının sentezini tetikleyerek immün baskılayıcı mekanizmaları uyarır [53]. IFN-'nin zıt etkilere neden olmadaki bu iki modlu rolü, henüz tam olarak anlaşılamayan karmaşık mekanizmalara bağlıdır, ancak salgılanan IFN-miktarının, bu sitokinin getirdiği eylemlerin tanımlanmasında belirleyici olduğu görülmektedir [54]. Buna göre, modelimizde, TIL'ler üzerindeki 3- AR antagonizmasının getirdiği azalan IFN- miktarının, IFN-'ye kronik maruz kalmanın daha fazla bağışıklık baskılayıcı mekanizmayı zorladığı kontrol durumuna kıyasla bağışıklık tepkilerini desteklediğini varsayıyoruz. -AR alt türleri arasında 2-AR, çeşitli bağışıklık hücrelerinin yüzeyinde en çok ifade edilen tür gibi görünüyor. Ancak -AR'lerin son tanımlanan üyesi olan 3-AR'nin bugüne kadar en az çalışılan olduğunu belirtmek gerekir. Bu nedenle, SR59230A uygulamasının esas olarak 3-AR alt tipini bloke eden etkiler yarattığını doğrulamak için ilk olarak TDLN'lerin lenfositleri ve tümöre sızan T hücreleri üzerindeki 3-AR protein ekspresyonunu araştırdık ve doğruladık. 3-Tümöre sızan CD4+ ve CD8+'de AR proteininin ekspresyonunu ve ardından seçici 1-, 2- ve {{ yoluyla gösterdik 140}}AR'leri susturarak, lenfositlerde bulunan 3-AR alt tipinin, NB tümör hücrelerinde IFN- -bağımlı PD-L1 ekspresyonunu kontrol etmedeki belirgin rolünü doğruladık. Not: Farklı dokular ve hücre modellerine ilişkin kapsamlı veriler, 1- ve 2-AR'ların her ikisinin de, endojen katekolaminlere uzun süre maruz kalmanın ardından homolog duyarsızlaşma fenomenine daha yatkın olmasına rağmen, {{147} }AR alt tipinin öyle olmadığı gösterildi ve yine de bazı hücrelerde 3-AR'ların duyarsızlaşması meydana geldiğinde, 1- ve 2-AR'lerinkine kıyasla daha az belirgindi [ 55]. Daha sonra, katekolaminlere kronik maruz kalma ile karakterize edilen bir durum olan NB tümöründe, fizyolojik olarak en fazla ifade edilen, TIL'lerdeki 2-AR alt tipinin duyarsızlaştırmanın ardından aşağı regülasyona uğrayabileceğini ve bunun tersine 3-AR'nin, katekolamin kaynaklı tümör önleyici etkilere aracılık etmede önemli bir rol oynar. İnsanlarda 3- AR ifadesinin tümör öncesi eğilimini araştırmak için, sonunda açık erişimli R2: Genomik Analiz ve Görselleştirme Platformunu kullanarak 649 NB hastasında bir genetik analiz gerçekleştirdik. Yüksek ADRB3 gen ekspresyonu, düşük ekspresyona kıyasla NB hastalarının en kötü klinik sonucu (genel ve olaysız sağkalım) ile koreleydi; ayrıca CD80, CTLA4 ve B7-H3 (CD276) gibi farklı bağışıklık baskılayıcı kontrol noktalarıyla pozitif ADRB3 gen korelasyonu ve CD266, CD40LG ve 4-1 gibi bağışıklık etkinleştirici kontrol noktalarıyla negatif korelasyon BBL, NB'deki bağışıklık reaktivitesinin karmaşık düzenlenmesinde 3-AR'nin oynadığı olumsuz rolü doğruladı. Özellikle, ADRB3 gen ekspresyonunun, yanıt vermeyen NB varyantlarında bulunan ve NK hücre aracılı lizise karşı koruyucu bir rol oynayan NB ile ilişkili bir molekül olan CD276 gibi immün baskılayıcı kontrol noktaları ile pozitif korelasyonu [56, 57], veya inhibisyonunun NB'de antitümör T hücresi öldürülmesini arttırmada gereksiz olmadığı gösterilen CTLA4 ile [58], 3-AR sinyalinin, tümör immün kaçışını destekleyen farklı mekanizmaları sürdürme yeteneğini vurguladı. Yüksek ADRB3 gen ekspresyonu ile farklı bağışıklık kontrol noktalarının artan ekspresyonu arasındaki korelasyonun, bazı proaktif maddelere kronik maruz kalma gibi aşırı aktivasyonu tümör direncinin başlangıcını destekleyen mekanizmaları sürdürme konusunda AR'nin 3-AR yeteneğine dayanabileceğini tahmin edebiliriz. -inflamatuar sitokinler. NB'de kontrol noktası inhibisyonuna ilişkin ilk çalışmalar her zaman başarılı olmamıştır. Özellikle, hem klinik öncesi çalışma modellerinde hem de insanlarda, birden fazla ICI'yi benimseyen terapötik stratejilerde elde edilen daha iyi yanıtlar, farklı bağışıklık kontrol noktalarının hedeflenmesinin NB'de yedekli olmayan etkili bir anti-tümöral yaklaşımı temsil ettiğini ileri sürdü [58, 59]. Daha sonra, farklı immünosüpresif yolakların hedeflenmesi, tek hedefli tedavinin tümör direncini önlemek için en iyi terapötik seçeneği temsil edebilir. Ancak birden fazla ilacın uygulanması, ağır yan etkiler ve toksisite nedeniyle her zaman sorunlu olmuştur ve her zaman istenen sonuçlara yol açmamıştır. Bu nedenle, yeni immün-onkoloji yaklaşımlarının geliştirilmesi için TME'nin immün karşılığının karmaşık ağının düzenlenmesinde yer alan moleküler mekanizmalar hakkında daha derin bir bilgiye ihtiyaç vardır. Bu bağlamda sunulan sonuçlar, NB TME'de 3-AR'yi hedeflemenin birden fazla yedeksiz tümör öncesi sinyal yolunu vurmak için olası bir yaklaşımı temsil edebileceğini göstermektedir. Özellikle, bağışıklık kontrol noktaları işbirliğinin neden olduğu bariyerin kaldırılması yoluyla hem konakçının bağışıklık sistemini hem de tümör hücresinin hayatta kalma yanlısı yollarını etkileyerek, 3-AR karşıtlığının terapötik açıdan umut verici bir stratejiyi temsil edebileceğini umuyoruz. NB malignitelerinden etkilenen hastalar için potansiyel. Konakçı bağışıklık sistemi ile NB'deki tümör karşılığı arasındaki karmaşık etkileşimin altında yatan diğer mekanizmaları derinleştirmek için hala daha fazla çalışmaya ihtiyaç vardır. Bununla birlikte, gözlemlediklerimizin ışığında, NB tümörlerinin TME'sindeki -adrenerjik sinyalleme çalışması dikkate alınmayı hak etmektedir.
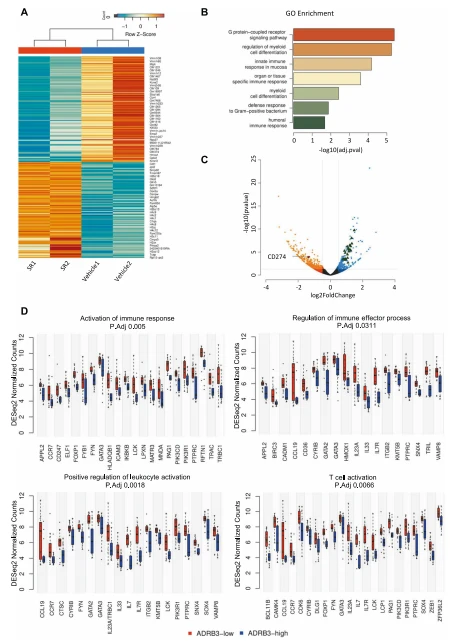
Şekil 6 NB tümör kütlesinin transkriptomik analizleri, 3-AR'nin bağışıklıkla ilgili süreçleri etkilemedeki belirgin rolünü doğrulamaktadır
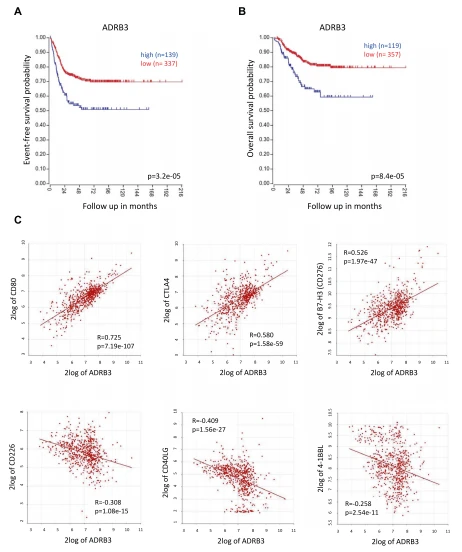
Şekil 7 NB hastalarında Kaplan-Meier sağkalım analizi ve immün kontrol noktalarının ADRB3 gen ekspresyonu ile korelasyonu.
REFERANSLAR
1. Cheung NK, Dyer MA. Nöroblastoma: gelişimsel biyoloji, kanser genomiği ve immünoterapi. Nat Rev Kanser. 2013;13:397–411.
2. Matthay KK, Maris JM, Gudrun S, Nakagawara A, Mackal CL, Diller L, ve diğerleri. Nöroblastom. Nat Rev Dis Prim. 2016;2:16078.
3. Darvin P, Toor SM, Nair SN, Elkord E. Bağışıklık kontrol noktası inhibitörleri: son gelişmeler ve potansiyel biyobelirteçler. Uzman Mol Med. 2018;50:1–11.
4. Pardoll DM. Kanser immünoterapisinde bağışıklık kontrol noktalarının bloke edilmesi. Nat Rev Kanser. 2012;12:252–64.
5. Zou W, Wolchok JD, Chen L. Kanser tedavisi için PD-L1 (B7-H1) ve PD-1 yolu blokajı: mekanizmalar, yanıt biyobelirteçleri ve kombinasyonları. Sci Transl Med. 2016;8:328rv4.
6. Cole SW, Sood AK. Moleküler yollar: kanserde beta-adrenerjik sinyalleşme. Clin Kanser Arş. 2012;18:1201–6.
7. Strenger V, Kerlb R, Dornbusch HJ, Ladenstein R, Ambros PF, Ambros IM, ve diğerleri. Nöroblastoma hastalarında idrar katekolaminlerinin tanısal ve prognostik etkisi. Pediatr Kan Kanseri. 2007;48:504–9.
8. Huang XE, Hamajima N, Saito T, Matsuo K, Mizutani M, Iwata H, ve diğerleri. Beta2- ve beta3-adrenerjik reseptör gen polimorfizmlerinin meme kanserine yatkınlıkla olası ilişkisi. Meme Kanseri Arş. 2001;3:264–9.
9. Babol K, Przybylowska K, Lukaszek M, Pertynski T, Blasiak J. Beta3-adrenerjik reseptör genindeki Trp64Arg polimorfizmi ile endometrial kanser ve obezite arasındaki ilişki. J Exp Clin Kanser Arş. 2004;23:669–74.
10. Perrone MG, Notarnicola M, Caruso MG, Tutino V, Scilimati A. İnsan kolon kanserinde beta3-adrenerjik reseptör mRNA'nın yukarı regülasyonu: bir ön çalışma. Onkoloji. 2008;75:224–9.
11. Magnon C, Hall SJ, Lin J, Xue X, Gerber L, Freedland SJ, ve diğerleri. Otonom sinir gelişimi prostat kanserinin ilerlemesine katkıda bulunur. Bilim. 2013;341:1236361.
12. Bruno G, Cencetti F, Pini A, Tondo A, Cuzzubbo D, Fontana F, ve diğerleri. beta3- adrenoreseptör blokajı, tümör büyümesini azaltır ve SK2/S1P2 modülasyonu yoluyla nöroblastomda nöronal farklılaşmayı artırır. Onkogen. 2020;39:368–84.
13. Calvani M, Bruno G, Dal Monte M, Nassini R, Fontana F, Casini A, ve diğerleri. Melanomda potansiyel bir immün baskılayıcı ajan olarak beta3 -Adrenoseptör. Br J Eczacı. 2019;176:2509–24.
14. Dal Monte M, Casini G, Filippi L, Nicchia MG, Svelto M, Bagnoli P. Melanom büyümesi ve vaskülarizasyonda beta3-adrenerjik reseptörlerin fonksiyonel katılımı. J Mol Med. 2013;91:1407–19.
15. Dondero A, Pastorino F, Della Chiesa M, Corrias MV, Morandi F, Pistoia V, ve diğerleri. İmmün sürveyansı sınırlamak için ek bir mekanizma olarak metastatik nöroblastomda PDL1 ekspresyonu. Onkoimmünoloji. 2016;5:e1064578.
16. Zuo S, Sho M, Sawai T, Kanehiro H, Maeda K, Yoshida M, ve diğerleri. PD-L1 ekspresyonunun ve tümöre infiltre eden lenfositlerin nöroblastom üzerindeki potansiyel rolü. Pediatr Surg Int. 2020;36:137–43.
17. Keir ME, Butte MJ, Feeman GJ, Sharpe AH. Tolerans ve bağışıklıkta PD-1 ve ligandları. Annu Rev Immunol. 2008;26:677–704.
18. Curiel TJ, Wei S, Dong H, Alvarez X, Cheng P, Mottram P, ve diğerleri. B7-H1'in blokajı, miyeloid dendritik hücre aracılı antitümör bağışıklığını geliştirir. Nat Med. 2003;9:562–7.
19. Wu K, Kryczek I, Cheng L, Zou W, Welling TH. İnsan hepatoselüler karsinomunda CD8+ T hücrelerinin Kupffer hücresi tarafından bastırılmasına B7-H1/programlanmış ölüm-1 etkileşimleri aracılık eder. Kanser Arş. 2009;69:8067–75.
20. Kuang DM, Zhao Q, Peng C, Xu J, Zhang JP, Wu C, ve diğerleri. Hepatoselüler karsinomun peritümöral stromasındaki aktif monositler, bağışıklık ayrıcalığını ve PD-L1 yoluyla hastalığın ilerlemesini teşvik eder. J Exp Med. 2009;206:1327–37.
21. Rotte A, Jin JY, Lemaire V. Kanser immünoterapisinde kombinasyonlarının rasyonel tasarımını desteklemek için immün kontrol noktalarına mekanik genel bakış. Ann Oncol. 2018;29:71–83.
22. Dammeijer F, van Gulijk M, Mulder EE, Lukkes M, Klaase L, van den Bosch T, ve diğerleri. PD-1/PD-L1 kontrol noktası, tümör boşaltan lenf düğümlerindeki T hücresi bağışıklığını kısıtlar. Kanser hücresi. 2020;38:685–700. e8.
23. Cha JH, Chan LC, Li CW, Hsu JL, Hung MC. Kanserde PD-L1 ekspresyonunu kontrol eden mekanizmalar. Mol Hücresi. 2019;76:359–70.
24. Burke JD, Young HA. IFN- : Bir sitokin doğru zamanda, doğru yerdedir. Semin İmmünol. 2019;43:101280.
25. Schena G, Caplan MJ. 3-AR* (* ancak sormaya korktuğunuz) hakkında her zaman bilmek istediğiniz her şey. Hücreler. 2019;8:357.
26. Liu Y, Guo YL, Zhou SJ, Liu F, Du FJ, Zheng XJ, ve diğerleri. CREB, latent fakat aktif olmayan tüberküloz enfeksiyonlarında gama interferonun pozitif bir transkripsiyonel düzenleyicisidir. Clin ad Vaccine Immunol. 2010;17:1377–80.
27. Samten B, Townsend JC, Weis SE, Bhoumik A, Klucar P, Shams H, ve diğerleri. CREB, ATF ve AP-1 transkripsiyon faktörleri, mikobakteriyel antijene yanıt olarak insan T hücreleri tarafından IFN-gama salgılanmasını düzenler. J İmmünol. 2008;181:2056–64.
28. Matloubian M, Lo CG, Cinamon G, Lesneski MJ, Xu Y, Brinkmann V, ve diğerleri. Timus ve periferik lenfoid organlardan lenfosit çıkışı S1P reseptörü 1'e bağlıdır. Doğa. 2004;427:355–60.
29. Li MH, Hla T, Ferrer F. FTY720, tümör büyümesini inhibe eder ve sfingolipid sinyal yoluna müdahale ederek nöroblastomada topotekanın tümör baskılayıcı etkisini arttırır. Pediatr Kan Kanseri. 2013;60:1418–23.
30. Chisholm KM, Chang KW, Truong MT, Kwok S, West RB, Heerema-McKenney AE. Vasküler tümörlerde beta-adrenerjik reseptör ekspresyonu. Mod Pathol. 2012;25:1446–51.
31. Montoya A, Amaya CN, Belmont A, Diab N, Trevino R, Villanueva G, ve diğerleri. Seçici olmayan beta blokerlerin kullanımı, erken evre meme kanserinde tümör proliferatif indekslerinin azalmasıyla ilişkilidir. Hedefe uygun. 2017;8:6446–60.
32. Rains SL, Amaya CN, Bryan BA. Beta-adrenerjik reseptörler çeşitli kanserlerde eksprese edilir. Oncoscience. 2017;4:95–105.
33. Verly IR, van Kuilenburg ABP, Abeling NGGM, Goorden SMI, Fiocco M, Vaz FM, ve diğerleri. Tanı sırasındaki katekolamin profilleri: Nöroblastoma hastalarında artan tanı duyarlılığı ve biyolojik ve klinik özelliklerle korelasyon. Eur J Kanser. 2017;72:235–43.
34. Eng JWL, Kokolus KM, Reed CB, Hylander BL, MA WW, Repasky ve diğerleri. Sinir tümörü mikro ortamı: adrenerjik stresin kanser hücreleri, immünosupresyon ve immünoterapötik yanıt üzerindeki etkisi. Kanser İmmunol İmmunother. 2014;63:1115–28.
35. Dhabhar FS, McEwen BS. Akut stres artarken, kronik stres in vivo hücre aracılı bağışıklığı bastırır: lökosit kaçakçılığı için potansiyel bir rol. Beyin Davranışı Bağışıklık. 1997;11:286–306.
36. Dhabhar FS. Stres kaynaklı bağışıklık fonksiyonunda artış - stres hormonlarının, lökosit trafiğinin ve sitokinlerin rolü. Beyin Davranışı Bağışıklık. 2002;16:785–98.
37. Qiao G, Chen M, Bucsek MJ, Repasky EA, Hylander BL. Adrenerjik sinyalleme: antitümör immün tepkisinin gelişimini sınırlayan hedeflenebilir bir kontrol noktası. Ön İmmunol. 2018;9:164.
38. Rigo V, Emionite L, Daga A, Astigiano S, Corrias MV, Quintarelli C, ve diğerleri. Anti-PDL-1/PD{-1 ve anti-CD4 antikorları ile kombine immünoterapi, sinjeneik dissemine nöroblastomayı tedavi eder. Bilim Temsilcisi 2017;7:14049.
39. Majzner RG, Simon JS, Grosso JF, Martinez D, Pawel BR, Santi M, ve diğerleri. Pediatrik kanser dokularında programlanmış ölüm ligandı 1 ekspresyonunun ve tümörle ilişkili bağışıklık hücrelerinin değerlendirilmesi. Kanser. 2017;123:3807–15.
40. Gibbons Johnson RM, Dong H. Programlanmış ölüm ligandı 1'in (B7-H1) bağışıklık hücreleri ve tümör hücreleri tarafından fonksiyonel ifadesi. Ön İmmunol. 2017;8:961.
41. Peng Q, Qiu X, Zhang Z, Zhang S, Zhang Y, Liang Y, ve diğerleri. Dendritik hücreler üzerindeki PD-L1, T hücresi aktivasyonunu azaltır ve immün kontrol noktası blokajına yanıtı düzenler. Nat İletişim. 2020;11:4835.
42. Singhal S, Stadanlick J, Annunziata MJ, Rao AS, Bhojnagarwala PS, O'Brien S, ve diğerleri. İnsan tümörü ile ilişkili monositler / makrofajlar ve bunların erken evre akciğer kanserinde T hücresi tepkilerinin düzenlenmesi. Sci Transl Med. 2019;11:eaat1500.
43. Blackburn SD, Shin H, Haining WN, Zou T, Workman CJ, Polley A, ve diğerleri. Kronik viral enfeksiyon sırasında CD8+ T hücresi tükenmesinin çoklu inhibitör reseptörler tarafından ortak düzenlenmesi. Nat İmmunol. 2009;10:29–37.
44. Jin HT, Anderson AC, Tan WG, West EE, Ha SJ, Araki K, ve diğerleri. Kronik viral enfeksiyon sırasında CD8 T hücresi tükenmesinde Tim-3 ve PD-1'nin işbirliği. Proc Natl Acad Sci ABD. 2010;107:14733–8.
45. Sakuishi K, Apetoh L, Sullivan JM, Blazar BR, Kuchroo VK, Anderson AC. T hücresi tükenmesini tersine çevirmek ve anti-tümör bağışıklığını yeniden sağlamak için Tim-3 ve PD-1 yollarını hedefleme. J Exp Med. 2010;207:2187–94.
46. Agata Y, Kawasaki A, Nishimura H, Ishida Y, Tsubata T, Yagita H, ve diğerleri. Uyarılmış fare T ve B lenfositlerinin yüzeyinde PD-1 antijeninin ifadesi. Uluslararası İmmunol. 1996;8:765–72.
47. Vibhakar R, Juan G, Traganos F, Darzynkiewicz Z, Finger LR. T-lenfositlerde insan programlı ölüm-1 geninin aktivasyonla indüklenen ifadesi. Exp Hücre Res. 1997;232:25–8.
48. Freeman GJ, Long AJ, Iwai Y, Bourque K, Chernova T, Nishimura H, ve diğerleri. PD-1 immüno-inhibitör reseptörünün yeni bir B7 ailesi üyesi tarafından devreye girmesi, lenfosit aktivasyonunun negatif düzenlenmesine yol açar. J Exp Med. 2000;192:1027–34.
49. Gros A, Robbins PF, Yao X, Li YF, Turcotte S, Tran E, ve diğerleri. PD-1, insan tümörlerine sızan hastaya özgü CD8(+) tümör reaktif repertuarını tanımlar. J Clin Yatırım. 2014;124:2246–59.
50. Galon J, Costes A, Sanchez-Cabo F, Kirilovsky A, Mlecnik B, Lagorce-Pagès C, ve diğerleri. İnsan kolorektal tümörlerindeki bağışıklık hücrelerinin türü, yoğunluğu ve konumu klinik sonuçları öngörür. Bilim. 2006;313:1960–4.
51. Mina M, Boldrini R, Citti A, Romanya P, D'Alicandro V, De Ioris M, ve diğerleri. Tümörü infiltre eden T lenfositleri tedaviye dirençli nöroblastomun klinik sonuçlarını iyileştirir Onkoimmünoloji. 2015;4:e1019981.
52. Melaiu O, Chierici M, Lucarini V, Jurman G, Conti LA, De Vito R, ve diğerleri. Tümöre sızan dendritik hücrelerin ve doğal öldürücü hücrelerin hücresel ve gen imzaları, nöroblastomun prognozunu öngörür. Nat İletişim. 2020;11:5992.
53. Jorgovanoviç D, Song M, Wang L, Zhang Y. Tümör ilerlemesi ve gerilemesinde IFN-gamanın rolleri: bir inceleme. Biomark Res. 2020;8:49.
54. Zhang J. Enflamasyon ve otoimmün hastalıkta IFN-gamanın Yin ve Yang etkileşimi. J Clin Yatırım. 2007;117:871–3.
55.Okeke K, Angers S, Bouvier M, Michel MC. Beta3 -adrenoseptörlerin agonist kaynaklı duyarsızlaştırılması: nerede, ne zaman ve nasıl? Br J Eczacı. 2019;176:2539–58.
56. Castriconi R, Dondero A, Augugliaro R, Cantoni C, Carnemolla B, Sementa AR, ve diğerleri. 4Ig-B7-H3'ün, NK hücre aracılı lizise karşı koruyucu bir rol oynayan nöroblastoma ile ilişkili bir molekül olarak tanımlanması. Proc Natl Acad Sci ABD. 2004;101:12640–5.