Bağırsak Mikrobiyotası ile Konak Bağışıklığı Arasındaki Karışma: Enflamasyon ve İmmünoterapi Üzerindeki Etki(2)
Oct 24, 2023
7.2. Gastrointestinal Enfeksiyonlar
Bağlama bağlı olarak bağırsak mikrobiyotası ya konağı koruyabilir ya da ekzojen patojenlerden enfeksiyon riskini artırabilir. Mikrobiyomun koruyucu bir güç olarak rolü, yenidoğanların olgunlaşmamış mikrobiyomlarının patobiontların istilasına daha duyarlı olduğunu gösteren araştırmalarla desteklenmektedir [222]. Kommensallerin patojenler tarafından kolonizasyonu önleyebildiği ve kaynaklar için rekabet etmek, bakteriyofajları serbest bırakmak ve antimikrobiyal metabolitler üretmek de dahil olmak üzere enfeksiyonlara karşı koruma sağlayabildiği birkaç farklı mekanizma vardır [237-241]. Buna karşılık, 4-metil benzoik asit, 3,4-dimetilbenzoik asit, heksanoik asit ve heptanoik asit gibi mikrobiyom metabolitlerinin, enterohemorajik E. coli'de görüldüğü gibi kolonik epitel hasarını arttırdığı gösterilmiştir. çip üzerinde organ modelinde [223]. Ayrıca, ortakçı Escherichia albertii'den alınan süpernatan, ishale neden olan E. coli türlerinin virülansını da artırabilir, bu da IL-8'de TLR5-aracılı bir artışa ve konakçı bağırsak hücrelerinde genel olarak artan proinflamatuar yanıta neden olur [242]. Mikrobiyom bileşimindeki belirli ortakların varlığı ve değişiklikler, Clostridium difficile, Salmonella typhimurium, Escherichia coli, vankomisine dirençli Enterococcus spp. ve Citrobacter rodentium gibi organizmaların enfeksiyon duyarlılığıyla bağlantılıdır [238,239,241,243-245]. En iyi örneklerden biri, doğuştan gelen bağışıklık hücrelerinin, inflamatuar ve TLR4, TLR5 ve nükleotid bağlayıcı oligomerizasyon alanı içeren protein 1 (NOD1) sinyal yolları yoluyla C. difficile toksinleri tarafından uyarıldığı CDI'yı içerir [246,247]. Çok sayıda proinflamatuar sitokin (interlökin (IL)-12, IL-1, IL-18, interferon-gamma (IFN-) ve tümör nekroz faktörü (TNF) gibi) ve kemokinler (MIP-1a, MIP-2 ve IL-8) daha sonra üretilir ve bu durum mukozal geçirgenliğin artmasına, mast hücresi degranülasyonuna, epitelyal hücre ölümüne ve nötrofilik infiltrasyona neden olur [248] . Daha da önemlisi, CDI genellikle bağırsak mikrobiyotasının antibiyotik aracılı bozulmasının bir sonucudur [249]. Bağırsaktaki faydalı bakterilerin belirli antibiyotikler, özellikle de klindamisin tarafından yok edilmesi, C. difficile'nin gelişmesine olanak tanır [250], bu da kolit ve ardından ishalle sonuçlanır [251,252]. Bağırsak mikrobiyotasındaki disbiyozun yanı sıra, Th17- ve IL-17-eksprese eden hücreler gibi bağışıklık hücresi popülasyonları, tekrarlayan CDI'yı teşvik edebilir [253]. Karşılaştırmalı olarak, IL{48}}aktive edilmiş ILC'ler CDI'yı önleyebilir [254]. Bağırsak mikrobiyotasının tükenmesi CDI'nin ana nedeni olduğundan, mikropları yenileyen müdahaleler terapötik değere sahip olabilir. Diyet lifi ve bunların fermente edilmiş yan ürünleri, yani SCFA gibi prebiyotikler, CDI için olası tedavilerdir. Örneğin, pektin gibi diyet lifleri, bağırsak mikrobiyotası eubiosisini (Lachnospiraceae'de artış ve Enterobacteriaceae'de azalma ile gösterilir) onarabildi ve C. difficile'nin neden olduğu kolitin ardından inflamasyonu hafifletebildi [255]. Bütirat üreten bakteri Clostridium butyricum'un benzer şekilde enfeksiyonun erken evresinde nötrofilleri, Th1 ve Th17 hücrelerini artırarak CDI'ya karşı koruma sağladığı bulundu; bu GPR43 ve GPR109a sinyallemesinden bağımsızdı [256]. Bölüm 6.2'de belirtildiği gibi CDI, FMT tarafından etkili bir şekilde tedavi edilebilir [152]. FMT, insan dışkısından izole edilen 33 bakteri türünden oluşan Mikrobiyal Ekosistem Tedavisinin antibiyotiğe dirençli C. difficile kolitini tedavi edebileceğini gösteren önceki bir çalışmayla da desteklenmektedir [257]. Benzer gözlemlerin, Mikrobiyal Ekosistem Tedavisi Salmonella typhimurium enfeksiyonuna uygulandığında da görülmesi dikkat çekicidir [258]. Bu bulgular, bağırsak mikrobiyotasının ve bağışıklık tepkilerinin uygun şekilde modüle edilmesinin enfeksiyonun önlenmesi ve enfeksiyonla mücadele için zorunlu olduğunu vurgulamaktadır.

cistance-tedavi kabızlığın etkileri
7.3. İnflamatuar Bağırsak Hastalıkları
İnflamatuar bağırsak hastalıkları (IBD), çevre, bağırsak mikropları, bağışıklık sistemi ve genetik faktörler gibi çeşitli faktörlerdeki kusurlar nedeniyle gelişir. IBD, GIT'in kronik inflamasyonunu içerir. Crohn hastalığı (CH) ve ülseratif kolit (UC), histopatolojik özelliklere, hastalığın GIT'teki konumuna ve semptomlara dayalı olarak İBH'nin iki farklı klinik durumudur [259]. IBD'de mukolitik bakteriler ve patojenik bakteriler mukozal bariyeri bozar ve patojenlerin derin bağırsak dokularına istilasını arttırır [224,260-262]. Bağırsak mikrobiyota bileşimindeki değişiklikler, IBD'nin gelişimi ve ilerlemesi ile büyük ölçüde bağlantılıdır. İBH hastalarında Firmicutes popülasyonunda azalma ve Proteobakteriler, Bacteroidetes, Enterobakteriaceae ve Bilophila'da artış görülmektedir [263-265]. Ek olarak, IBD hastalarında ve kolit fare modellerinde görüldüğü gibi birçok proinflamatuar bakteri türü IgA ile kaplanmıştır [266,267]. Mikropsuz farelerin kolite karşı korunduğuna dair kanıtlara dayanarak, bağırsak mikroplarının İBH gelişiminde doğrudan rol oynadığı görülmektedir [268]. Bu, IBD farelerinden mikropsuz farelere bağırsak mikroplarının implantasyonunun, ikinci grup için IBD ile sonuçlandığının keşfedilmesiyle güçlendirilir [268]. Benzer şekilde, IBD'li barajlar yavrulara esasen bir 'IBD mikrobiyotası' aktarabilir; bu durumda yavrularda mikrobiyal çeşitlilik azalır ve kolonda daha az sınıf-değişmeli hafıza B hücresi ve Treg hücresi olur [269]. Mikrobiyota ve IBD arasındaki güçlü bağlantı, tanısal ve terapötik hedeflerin daha iyi belirlenmesine yardımcı olacak metagenomik yaklaşımları ileriye taşımıştır [270]. FMT, tedavi edilen UC hastalarında, daha az ROR t + Th17 hücresi ve daha fazla Foxp3+ CD4+ Treg hücresine karşılık gelen artan Faecalibaterium bolluğuna sahip olduğunun tespit edildiği potansiyel bir tedavi olarak önerilmektedir [166]. SCFA'ların uygulanmasının aynı zamanda IBD hastaları için potansiyel bir terapötik olduğu düşünülmektedir [271]. Destekleyici kanıtlar arasında proinflamatuar nötrofil yanıtlarının, yani kolitik farelerdeki NET'lerin bütirat aracılı inhibisyonu yer alır [272]. SCFA'nın öncüsü olan diyet lifinin İBH hastaları için yararlı bir müdahale olup olamayacağı konusunda çelişkili raporlar vardır. Bir tarafta, spesifik bir çoklu lif karışımının, IL{26}} ve Treg hücrelerini artırarak bağırsak iltihabını önlediği bulunmuştur [273]. Buna karşılık, araştırma bulgularımız, kolitik fareler için prebiyotik lif reaksiyonlarında bir ikilemi işaret etmektedir; burada pektin, inülin ile karşılaştırıldığında inflamasyonu hafifletebilir ve bu da hastalık patolojisini kötüleştirir [274]. Üstelik çalışmamız, bütiratın, NLRP3 inflamatuar sinyalini artırarak zararlı bir mikrobiyal metabolit olabileceğini öne sürdü [274]. Probiyotik bir kokteyl, bağırsak mikrobiyotasını Akkermansia ve Bifidobacterium'u içeren bir anti-inflamatuar profile kaydırarak iltihabı hafifletti. Bu bulgular toplu olarak, kliniklerde uygulanmadan önce IBD'deki prebiyotik lifleri ve SCFA'ları anlamak için daha fazla araştırmaya ihtiyaç olduğunu göstermektedir. SCFA'ya ek olarak ikincil safra asitleri de IBD'de rol oynar. DCA'nın bağırsak iltihabını tetiklediği iyi bilinmektedir [276,277]. Bu kısmen Paneth hücre fonksiyonunun safra asidi aracılı inhibisyonuna bağlı olabilir [278]. Ancak DCA dahil kolesistektomi ile ilişkili sekonder safra asitleri, monosit/makrofaj alımını inhibe ederek farelerde koliti iyileştirmiştir [279]. Ayrıca UDCA, Clostridium kümesi XIVa'nın kaybını önleyerek ve A. muciniphila bolluğunu artırarak kolit şiddetini de azaltabilir [280]. Safra asitlerinin değişen etkileri kimyasal yapıları ve potansiyel konjuge kısımlarıyla ilişkili olabilir. Örneğin, sülfatlanmış sekonder safra asitleri, IBD hastalarında görüldüğü gibi, konjuge olmayan muadillerine kıyasla daha fazla proinflamatuar etki gösterebilir [281]. Elbette İBH hastalarında safra asidi profilini anlamak ve her safra asidi tipinin pro- veya anti-inflamatuar etkilerini belirlemek için daha fazla metabolomik profilleme gereklidir. Genel olarak hem SCFA'nın hem de ikincil safra asitlerinin bağırsakta antiinflamatuar etkilere sahip olduğu görülmektedir (Şekil 1A, B). Son yıllarda İBH riskini artıran çeşitli duyarlılık genleri tanımlanmıştır. Mevcut araştırmalar genetik yatkınlık, disbiyoz ve antibiyotikler gibi çevresel faktörlerin İBH'ya doğru uyum içinde çalıştığı fikrine odaklanmıştır. Nükleotid bağlayıcı oligomerizasyon alanı içeren protein 2 (NOD2, immünolojik bir hücre içi tanıma proteini), bakteriyel hücre duvarlarının ayrılmaz bir bileşeni olan hücre içi muramil dipeptidi (MDP) tanımlar [282]. NOD2 fonksiyonunun kaybı, NF-κB'nin TLR{54}}aracılı aktivasyonunun inhibisyonunu bozar, bu da aşırı aktif bir Th1 tepkisine ve mikroplara karşı zayıflamış immünolojik toleransa neden olur [282]. Ayrıca otofajiyle ilişkili 16-gibi 1 (ATG16L1), kaspaz toplama alanı içeren protein 9 (Card9) ve C tipi lektin alanı ailesi 7 üyesi A (CLEC7A) dahil olmak üzere IBD'ye duyarlılığı artıran diğer bazı genler , T hücresi yanıtlarını düzensizleştirir ve bağırsak mikrobiyota disbiyozu yaratır, bu da IBD'ye katkıda bulunur [283-285]. Gelecekteki çalışmalar, İBH hastaları için mikrobiyal metabolit üretimiyle ilişkili genlerde tek nükleotid polimorfizmlerinin olup olmadığını araştırmalıdır.

Cistanche tubulosa'nın faydaları-Bağışıklık sistemini güçlendirmek
7.4. Kolorektal Karsinom (CRC)
Büyüyen bir literatür, mikrobiyotanın kanserin gelişiminde ve ilerlemesinde rol oynadığını öne sürüyor. Bağışıklık sisteminin uyumsuz gelişim gösterdiği senaryolarda bağırsak mikrobiyota disbiyozu yüksek risk haline gelir ve belirli mikropların yayılması mutajenik toksinlerin üretimiyle sonuçlanabilir [286]. Bu genotoksinler arasında Bacteroides fragilis toksini (Bft), sitoletal gerdirici toksin (CDT) ve kolibaktin yer alır [225]. Ancak bunlar, bağırsak mikroplarının tüm genişliğiyle kanserojen potansiyeli tanımlamak ve anlamak için daha fazla araştırmaya ihtiyaç duyulan, yalnızca az sayıda bakteriyle ilişkili toksinin altını çizmektedir [225]. Adenomatöz ve tırtıklı polipler sıklıkla kolorektal kansere (CRC) ilerleyen iki kanser öncesi lezyondur. Adenomlu hastalarda, Bilophila, Desulfovibrio, Mogibacterium ve Bacteroidetes şubesi dahil çeşitli türler dışkıda artarken, tırtıklı polipli hastalarda Fusobacteria taksonlarında ve Erysipelotrichia sınıfında artışlar görülmüştür [226]. Fusobacterium nucleatum (F. nucleatum), CRC ilerlemesinde önemli bir mikrop olarak karakterize edilir [287,288]. F. nucleatum, TLR4 sinyalini ve E-kadherin/-katenin sinyalini teşvik eder, sonuçta NF-κB'nin aktivasyonuna ve miR-1322 ifadesinin azalmasına yol açar [289]. miR-1322 gibi düzenleyici mikro-RNA'lar, CRC metastazını destekleyen bir sitokin olan CCL20'nin ekspresyonunu doğrudan düzenleyebilir [287]. Diğer literatür, F. nucleatum adezin A'nın (FadA), F. nucleatum'un kolonik epitelyuma yapışmasına, istila etmesine ve aşındırmasına izin veren önemli bir virülans faktörü olduğuna işaret etmektedir [227]. Daha yakın zamanda yapılan bir çalışma, F. nucleatum'un, NK hücrelerini ve T hücrelerini aşağı regüle eden CEACAM1 ve TIGIT1 inhibitör reseptörlerinin aktivasyonu yoluyla anti-tümör bağışıklığını baskılayarak CRC'yi destekleyebildiğini buldu [290]. F. nucleatum suşu Fn7-1'nin, Th17 yanıtlarını yükselterek CRC gelişimini şiddetlendirdiği de gösterilmiştir [74]. F. nucleatum'a ilişkin bu bulgular endişe vericidir çünkü bu, SCFA üreten bir bakteridir [291] ve SCFA genel olarak birçok inflamatuar hastalık için potansiyel bir terapötik yol olarak vurgulanmıştır. F. nucleatum ağırlıklı olarak asetat ve bütirat üretir; yakın zamanda F. nucleatum'un bir SCFA reseptörü olan serbest yağ asidi reseptörü 2 (FFAR2) yoluyla Th17'yi indüklediği öne sürülmüştür [74]. Ancak farelerde FFAR2 kaybı, tümör bakteriyel yükünü ağırlaştırdı ve DC'lerin aşırı aktive olmasını sağladı ve sonunda T hücresi tükenmesini teşvik etti [292]. Ayrıca diyet lifinden elde edilen bütiratın, Warburg etkisi nedeniyle CRC hücrelerinde daha az metabolize olduğu, bunun bir HDAC inhibitörü olarak görev yapmasına ve apoptozla ilgili genlerin asetilasyonunu desteklemesine olanak tanıdığı bulunmuştur [293]. Bu bulgular, F. nucleatum'un patolojik etkilerinin SCFA'dan bağımsız olabileceğini ancak bu olasılığın belirlenmesi için daha fazla çalışmaya ihtiyaç olduğunu vurgulamaktadır. CRC'nin gelişiminde önerilen başka bir mekanizma, aşırı şeker, protein ve lipit alımının, DCA ve LCA gibi ikincil safra asitlerinin ve yan ürünlerinin üretimini artıran safra toleranslı mikropların büyümesini destekleyebileceğini öne sürmektedir. hidrojen sülfür gibi. Aşırı sekonder safra asitleri genotoksiktir ve CRC gelişimini destekleyebilecek proinflamatuar bir ortam üretebilir [226]. Özellikle DCA, metaloproteaz ADAM-17'in epidermal büyüme faktörü reseptörüne bağımlı salınımını aktive ederek bağırsak karsinojenezini uyarabilir [294].

cistance-tedavi kabızlığın etkileri
DCA aynı zamanda -katenin sinyalini aktive eder [295] ve CRC büyümesi ve istilası için Lgr5-eksprese eden (Lgr5+) kanser kök hücrelerinde [296] malign dönüşümleri yönlendirir. Bununla birlikte, ikincil safra asidi üretimiyle ilişkili bakteriler, yani Clostridium kümesi XlVa, İBH hastalarında önemli ölçüde azaldı ve buna birincil safra asitlerinin ikincil safra asitlerine dönüşümünün azalması eşlik etti [297]. Safra asitlerine ek olarak bağırsak mikrobiyal metaboliti folat, AhR sinyalini tetikleyerek ve Th17 düzeylerini genişleterek KRK patogenezini kötüleştirebilir [298]. SCFA'ya benzer şekilde, bağırsak mikrobiyotasından türetilen safra asitlerinin potansiyel tümör oluşturucu etkilerini ayırt etmek için daha fazla araştırmaya ihtiyaç vardır. CRC'de mikrobiyotaya bağlı farklı immünolojik tepkiler vardır. Doğuştan gelen bağışıklık tepkileri açısından, A. muciniphila zenginleştirmesi, kolon tümör oluşumunu bastıran NLRP3-'ye bağımlı bir şekilde M1 makrofaj polarizasyonunu kolaylaştırdı [299]. Benzer şekilde, bağırsaklara yapışan E. coli, bağırsak iltihabını sınırlayan ve tümör oluşumunu kısıtlayan IL-10- üreten makrofajları artırabilir [300]. Edinsel bağışıklık açısından, mikrobiyal disbiyoz, CD{17}} T hücrelerini aşırı uyararak kronik inflamasyonu ve erken T hücresi tükenmesini teşvik eder, bu da kolon tümör duyarlılığına katkıda bulunur [301]. Bağırsak kanseri hücreleri aynı zamanda mikrobiyotaya, antitümör CD{26}} T hücrelerini azaltan ortak inhibitör moleküller B7H3/B7H4'ün tümör ekspresyonunu teşvik eden kalsinörine bağımlı IL-6 salgılanmasını indükleyerek yanıt verebilir [302]. Karşılaştırmalı olarak, Helicobacter hepaticus'un dahil edilmesi, bir fare CRC modelinde anti-tümör bağışıklığını geri kazandıran T foliküler yardımcı hücrelerini indüklemiştir [303]. Makrofajlar ve Th17 hücreleriyle karşılaştırıldığında, CRC hastalarının kolonik dokusunda δ T hücreleri ve yerleşik hafıza T hücreleri daha düşük frekanslarda bulundu [60]. KRK'nin erken tanısı için bir bağışıklık hücresi panelinin geliştirilip geliştirilemeyeceğini araştırmak ilginç olacaktır.

cistanche tubulosa-bağışıklık sistemini iyileştirir
7.5. Hepatoselüler Karsinom (HCC)
En yaygın primer karaciğer kanseri olan hepatoselüler karsinom (HCC), dünya çapında kansere bağlı ölümlerin dördüncü önde gelen nedenidir [304]. HCC patogenezinin ana etiyolojisi, alkolsüz yağlı karaciğer hastalığı (NAFLD) ve steatohepatit gibi siroza yol açan önceden var olan karaciğer hastalıklarından gelir [305]. Bu durum, insülin direnci, obezite ve hepatik inflamasyonu ve IL{4}} ve TNF- yoluyla tümör oluşumunu daha da teşvik eden metabolik bozukluklar dahil olmak üzere, NAYKH hastalarındaki diğer eşlik eden durumlar tarafından daha da karmaşık hale getirilir [306]. Karaciğer, bağırsaklardan gelen venöz kanın 'ilk durağı' olup, onu bağırsak-epitel bariyeri boyunca mikrobiyal translokasyon yoluyla veya emilen mikrobiyal metabolitlerle temas yoluyla bağırsak mikrobiyotasına karşı savunmasız hale getirir [307]. Bağırsak mikrobiyota disbiyozunun, bağırsak bariyerinin bozulması, mikropların kan dolaşımına translokasyonu ve LPS gibi PAMP'ler tarafından PRR'lerin indüklenmesi yoluyla müteakip inflamatuar bağışıklık tepkileri dahil olmak üzere yukarıda belirtilen iyi bilinen etkileri, NAFLD'nin patogenezi ile güçlü bir şekilde ilişkilidir. karaciğer sirozu ve HCC [228,307]. Bağırsak mikrobiyotasındaki disbiyozun HCC gelişiminden önce geldiği uzun süredir düşünülse de, bu nedensel ilişki yakın zamana kadar derinlemesine araştırılmamıştı. Behary, Raposo ve diğerleri. yakın zamanda, HCC ilerlemesinden önce, bağırsak mikrobiyota disbiyozunun, LPS'ye bağımlı Th1- ve Th17- aracılı sitokin tepkisi tarafından takip edilen erken başlangıçlı karaciğer hasarıyla paralel olduğu bulunmuştur [308]. Daha ileri araştırmalar, bağırsak mikrobiyota disbiyozunun HCC'den önceki karaciğer hasarının bir nedeni mi yoksa sonucu mu olduğunu belirlemelidir. NAFLD ile ilişkili HCC hastalarında CCL3, CCL4, CCL5, IL-8 ve IL-13 gibi inflamatuar aracıların düzeylerinin yükselmesinin yanı sıra Enterobacteriaceae ve Streptococcus'ta artış ve Akkermansia'da azalma kaydedilmiştir. 309]. Daha yeni bir çalışma, sirozun neden olduğu HCC'li hastalarda SCFA üreten bakterilerin bolluğunda azalma ve LPS üreten bakterilerde artış olduğunu buldu, ancak hepatit C, hepatit B veya alkolik karaciğer gibi diğer karaciğer hastalıklarında bağırsak mikrobiyota disbiyozuna dair anlamlı bir kanıt bulunamadı. hastalık [310]. Ancak genel olarak konuşursak, birden fazla çalışmada gözlemlenen değişen mikrobiyal popülasyonların birbiriyle tutarlı olmadığı belirtilmelidir [309,311-313]. Ayrıca, genel olarak bağırsak mikropları tarafından üretilen SCFA'ların insanlar için çeşitli faydaları olduğu düşünülürken, yakın zamanda SCFA bütiratın bir öncüsü olan inülinin, genetiği değiştirilmiş disbiyotik farelerde HCC'ye ilerlemeyi destekleyebildiği keşfedildi [229]. Diğer çalışmalar mikrobiyal metabolitlerin HCC üzerindeki etkisine odaklanmıştır. Örneğin, yüksek yağlı bir diyet, ikincil safra asitleri, yani DCA üreten Gram-pozitif organizmaların bağırsakta aşırı büyümesine yol açmıştır [230]. DCA, TLR2'yi aktive etmek ve ardından anti-tümör bağışıklığını aşağı regüle etmek için lipoteikoik asit ile birlikte çalışarak HCC'nin gelişimi için uygun bir mikro ortam yaratabilir [314,315]. Genel olarak bağırsak mikrobiyota metabolitlerinin karaciğer için potansiyel olarak pro-tümörojenik olduğu görülmektedir.
7.6. Kalp-damar hastalığı
Kardiyovasküler hastalık (CVD), kronik, düşük dereceli inflamasyondan kaynaklanan, esas olarak ateroskleroz, NAFLD, hipertansiyon ve tip II diyabet (TIIDM) gibi birbiriyle ilişkili bir dizi hastalığı içeren bir durum olan metabolik sendromla büyük ölçüde bağlantılıdır [316] . Karaciğer ve pankreastaki parankimal hücreler, adipositler ve iskelet miyositleri gibi yüksek metabolik aktiviteye sahip birçok hücre, bağışıklık hücreleriyle kapsamlı çapraz etkileşime katılır. Mikrobiyomun herhangi bir bozulması, konakçının bağışıklık fonksiyonunu değiştirme potansiyeline sahiptir ve buna bağlı olarak metabolik olarak aktif dokularda hastalık süreçlerine neden olma veya hastalık süreçlerini değiştirme yeteneğine sahip olabilir. LPS ve diğer mikrobiyal PAMP'lerin PRR'ler tarafından tanınmasının, bu düşük dereceli inflamatuar durumda önemli bir etken olduğu düşünülmektedir [231]. Mikrobiyal bir ko-metabolit olan trimetilamin N-oksitin (TMAO), NF-κB sinyali, inflamatuar aktivasyon ve artan serbest radikal üretimi yoluyla düşük dereceli inflamasyona neden olduğu da belirtilmektedir [317,318]. Ayrıca TMAO, makrofajlarda kolesterol metabolizmasını bozarak ve köpük hücrelerinin oluşumuna katkıda bulunarak ateroskleroza ve dolayısıyla kalp hastalığına yol açmaktadır. Aslında, daha yüksek serum TMAO'su artan ateroskleroz, koroner arter hastalığı, felç ve vasküler inflamasyon riskiyle ilişkilidir [232,233] ve TMAO şu anda olumsuz kardiyovasküler olaylar için bir biyobelirteç olarak kabul edilmektedir [320]. Daha yeni araştırmalar, fenilasetilglutaminin (PAGln), adrenerjik reseptör aktivasyonu ve pro-trombotik etkiler yoluyla CVD ile ilişkili mikrobiyal bir metabolit olduğunu keşfetmiştir [321,322]. PAGln'nin kardiyovasküler tıpta, tanısal bir belirteç olarak veya hatta KVH hastalarında bloker tedavisine yanıt vermenin bir öngörücüsü olarak kullanılması gibi ortaya çıkan çok sayıda potansiyel rolü vardır [322].
7.7. Diyabet
Şeker hastalığı iki sınıfa ayrılan bir hastalıktır: Tip I diyabet (TIDM), pankreas adacık hücrelerinin otoimmün yıkımını içerirken, tip II diyabet (TIIDM), edinilmiş insülin duyarsızlığını içerir. Mikrobiyota ve diyabeti içeren birçok araştırma TIIDM ve obezite etrafında dönse de, artan diyet SCFA tüketiminin TIDM hastalarında mikrobiyotanın değişmesine ve farklı bağışıklık profillerine yol açabileceği gösterilmiştir [323]. Bütirat ve asetat gibi artan diyet SCFA'larının, farelerde otoreaktif T hücresi popülasyonlarına ve TIDM'ye karşı koruma sağlamak için sinerjistik olarak çalıştığı da gösterilmiştir [100]. Karşılaştırmalı olarak, Parabacteroides distasonis'in uygulanması, bir fare modelinde T1DM gelişimini hızlandırdı ve bunun nedeni, yüksek CD8+ T hücreleri ve azalmış Foxp3+ CD4+ Treg dahil olmak üzere anormal bağışıklık tepkileriydi. hücreler [324]. Düzensiz safra asidi metabolizmasının, adacık otoimmünitesi ve tip 1 diyabet için potansiyel bir predispozan faktör olduğu bulunmuştur [325]. Mikrobiyom ve bağışıklık sistemlerinin her ikisi de TIIDM'nin patogenezinde yoğun olarak rol oynar. Dallı zincirli amino asitler, Prevotella copri (P. copri) ve Bacteroides vulgatus spp. tarafından üretilir ve P. copri, fare modellerinde doğrudan insülin direncini indükler [326,327]. Kommensal A. muciniphila'nın tükenmesi bağırsak bariyerini tehlikeye atar, bu da endotoksinin kan dolaşımına translokasyonu ve ardından CCR{12}} monositlerinin aktivasyonuyla sonuçlanır. Bu, pankreatik B1a hücrelerinin, inflamatuar aracıları serbest bırakan ve geri dönüşümlü veya geri dönüşümsüz insülin direncine neden olan 4BL hücrelerine dönüşmesiyle sonuçlanır [328]. Öte yandan, linoleik asit ve dokosaheksaenoik asit gibi mikrobiyal metabolitler, antiinflamatuar etkiler ve lipotoksisitenin önlenmesi yoluyla insülin direncine ve TIIDM'ye karşı koruyucu etkilere sahiptir [329]. FMT'nin ayrıca TIIDM'li farelerde açlık kan şekeri düzeylerini düşürdüğü ve insülin direncini azalttığı da gösterilmiştir [330]. Ayrıca, çeşitli anti-diyabetik ilaçların terapötik etkilerinden bazıları, kısmen mikrobiyotayı değiştirme yeteneklerine bağlı olabilir [331-333].
7.8. Hipertansiyon
Her ne kadar hipertansif farelerdeki spesifik mikrobiyal profiller kullanılan hipertansiyon modeline bağlı olsa da, birçok çalışma normotansif ve hipertansif fareler arasında mikrobiyom kompozisyonlarının önemli ölçüde değiştiğini gözlemlemiştir [334-337]. Anjiyotensin II hipertansiyon modelinde, mikropsuz farelerde mikrobiyota eksikliği, kısmen kandaki inflamatuar hücre popülasyonlarını azaltarak hipertansiyona karşı koruma sağlamıştır [338]. Ancak mikropsuz fareler, anjiyotensin II ve yüksek tuzlu diyet kombinasyon rejimini takiben böbrek hasarına daha yatkındı [339]. Ayrıca, mikrobiyotanın hipotansif mikropsuz farelere yeniden verilmesi vasküler kasılmayı yeniden sağlamıştır [340]. Genel olarak, mikrobiyota bileşimi hipertansif ve normotansif hayvanlar arasında farklılık gösterir ve ilginç bir şekilde, hipertansif yavruları normotansif analarla çapraz beslemek, önceki gruptaki kan basıncını azaltabilir [341]. CVD'ye benzer şekilde, bağırsak metaboliti TMAO'nun da hipertansiyonla ilgisi vardır. Yakın zamanda yapılan bir çalışma, TMAO'nun anjiyotensin II'nin indüklediği hipertansif farelerde ROS yoluyla vazokonstriksiyonu şiddetlendirdiğini keşfetti [342]. Benzer şekilde, yüksek tuzun indüklediği DC aktivasyonu, mikrobiyal disbiyozun aracılık ettiği hipertansiyon ile ilişkilidir [343]. Karşılaştırmalı olarak, yüksek tuzla beslenen hipertansif sıçanlarda keton gövdesi -hidroksibutirat azalır; -hidroksibutirat öncüsü 1,3 bütandiol ile kurtarma, NLRP{24}}aracılı inflamasyonun önlenmesi yoluyla kan basıncını ve böbrek iltihabını azalttı [344]. HSD'nin başka yerlerde Lactobacillus spp.'yi azalttığı gösterilmiştir. ve Th17 hücre popülasyonlarını indüklediğinde, bunun oldukça farklı bir mekanizma yoluyla gerçekleştiği görülmektedir [176].
7.9. Romatizmal eklem iltihabı
Temel olarak eklem iltihabıyla karakterize sistemik bir otoimmün hastalık olan romatoid artritin (RA) patogenezi daha iyi anlaşılmaktadır. RA, birden fazla tanımlanmış alel ve çevresel faktörlerin hastalığa karşı duyarlılığı artırdığı çok faktörlü bir hastalıktır. RA gelişiminde potansiyel olarak önemli bir mikrobiyal cins Prevotella'dır. Bu ilk olarak 2013 yılında Scher ve arkadaşları tarafından tanımlanmış olup, yeni başlangıçlı RA hastalarında sağlıklı kontrollerle karşılaştırıldığında Prevotella spp., özellikle de Prevotella copri bolluğunun önemli ölçüde arttığını bulmuştur [234]. Ancak kronik RA hastalarında Prevotella popülasyonu artmamıştır [234]. O zamandan bu yana, birçok çalışma çeşitli Prevotella türleri ile RA arasında daha fazla korelasyon bulmuştur [345-347]. Ancak Prevotella spp.'nin olup olmadığı belirsizdir. kendisi RA'nın patogenezine katkıda bulunur veya RA'nın yarattığı immünolojik ortam bağırsakta Prevotella bolluğunu arttırır. RA hastalarında bağırsak mikrobiyotasındaki diğer dikkate değer bakteriyel değişiklikler arasında Proteobakteriler, Clostridium kümesi XlVa ve Ruminococcus'ta bir çoğalma yer alır ve bunlar daha az CD4+ T hücresi ve Treg hücresi ile koreledir [348]. K/BxN otoimmün artrit modeli kullanılarak, SFB aracılı sitotoksik T lenfosit antijeni-4 (CTLA-4) azalmasının, otoreaktif T foliküler yardımcı hücrelere neden olduğu bulunmuştur [349,350]. Artritte T foliküler yardımcı hücrelerin ve Th17 hücrelerinin birikimi yaşa bağımlı gibi görünmektedir [351], bu da RA'nın neden çoğunlukla yaşlı popülasyonda bulunduğunu açıklamaya yardımcı olmaktadır. Ancak ilginç bir şekilde, K/BxN otoimmün artrit modelinin antibiyotik tedavisiyle doğrulandığı gibi, bağırsak mikrobiyotasının ağırlıklı olarak Th17 hücrelerini değil, T foliküler yardımcı hücrelerini etkilediği görülüyor [352]. Yakın zamanda farelerde kollajenin indüklediği RA'nın bağırsak mikrobiyomunda sirkadiyen ritmik düzenlerde bir anormalliğe neden olduğu ve bunun triptofan metabolitleri gibi dolaşımdaki mikrobiyal kaynaklı faktörlerdeki bir değişiklik nedeniyle bariyer bütünlüğünün azalmasına neden olduğu rapor edilmiştir [353]. SCFA'lar, özellikle bütirat, RA için terapötik bir seçenek olarak önerilmiştir. Bütirat takviyesinin, HDAC ekspresyonunu inhibe ederek Treg hücrelerini teşvik ettiği ve RA'da pro-inflamatuar sitokin genlerini aşağı regüle ettiği bulunmuştur [354]. Ayrıca, bütirat, HDAC inhibisyonu yoluyla histon asetilasyonunu artırarak fonksiyonel foliküler Treg hücrelerinin in vitro farklılaşmasını doğrudan indükleyerek artriti hafifletmiştir [355]. Ayrıca bütirat, AhR aktivasyonunun düzenleyici B hücresi fonksiyonunu desteklediği serotonin türevi metabolit 5-hidroksiindol-3-asetik asit gibi AhR ligandlarının düzeylerini artırarak artrit şiddetini azaltmıştır [356]. SCFA'ya ek olarak, bağırsak mikrobiyotasından türetilmiş metabolitler LCA, DCA, isoLCA ve 3-oxoLCA'nın da yakın zamanda anti-artrit etkileri gösterdiği bulunmuştur. Spesifik olarak isoLCA ve 3-oxoLCA, Th17 farklılaşmasını inhibe etti ve M2 makrofaj polarizasyonunu destekledi [357]. İkincil safra asitlerinin bu etkileri Parabacteroides distasonis probiyotik takviyesi ile sinerjilendirilebilir [357]. İkincil safra asitlerine ilişkin yeni bulunan bulgular çok önemlidir ve ek araştırmalara ihtiyaç duymaktadır.

cistanche tubulosa-bağışıklık sistemini iyileştirir
Cistanche Enhance Immunity ürünlerini görüntülemek için buraya tıklayın
【Daha fazlasını isteyin】 E-posta:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
7.10. Alerjik Hastalıklar
Alerjiler, bağışıklık sistemi patojenik olmayan yabancı antijenlere karşı aşırı duyarlı hale geldiğinde ortaya çıkar. Yaygın aşırı duyarlılıklar arasında alerjik rinit, gıda alerjisi, egzama, atopik dermatit ve astım bulunur. Mikrobiyal maruziyetin azalması, sezaryenle doğum, diyet ve antibiyotik kullanımı gibi alerjilerin gelişiminden sorumlu olan çeşitli faktörler, bağırsak mikrobiyom bileşimindeki değişikliklerle güçlü bir şekilde bağlantılıdır [358-361]. Bağırsak mikrobiyotasındaki disbiyoz ise alerji riskini, özellikle de gıda alerjilerini artırır [235,236]. Antibiyotik kullanımının neden olduğu disbiyoz, duyarlı farelerde alerjik semptomları arttırmak, bağırsak inflamasyonunu arttırmak ve bağırsak mukozasındaki sıkı bağlantıyı bozmak için yeterlidir [362]. Yüksek yağlı bir diyet genellikle antibiyotiklere benzer etkilere sahiptir, bağırsak mikrobiyota disbiyozuna neden olur ve ardından gıda alerjisi riskini artırır [363]. Bağırsak mikrobiyota kompozisyonunda doğumdan hemen sonra, yani mikrobiyom hala kuruluyken meydana gelen değişikliklerin, yaşamın ilerleyen dönemlerinde alerjik hastalıkların gelişimi üzerinde özellikle büyük bir etkiye sahip olduğu görülmektedir [364]. Vajinal mikrobiyotanın aynı zamanda Lactobacillus'un baskın olduğu vajinal mikrobiyota kümelerinin 1 yaşındaki bebek serum IgE durumuyla ilişkili olduğu alerji riskini de yansıtabileceği dikkate alınmalıdır [365]. Birçok çalışma, disbiyozun alerjik hastalıklarla, özellikle de astımla yoğun bir şekilde bağlantılı olduğu kavramını güçlendirmektedir. Atopik astımı olan bireylerin dışkısında Lactobacillus ve E. coli düzeyleri sağlıklı bireylerle karşılaştırıldığında önemli ölçüde daha yüksektir [366]. Mikrobiyota metabolitleri açısından, 12,13-diHOME (nispeten karakterize edilmemiş bir linoleik asit), yüksek astım riski taşıyan yenidoğanlarda yaygın olarak bulunur [367]. Yakın zamanda, 12,13-diHOME üreten bakteriyel epoksit hidrolazın pulmoner inflamasyon sırasında konsantrasyonunun da daha yüksek olduğu ve 12,13-diHOME'un akciğerdeki Treg hücrelerini azalttığı bulunmuştur [368,369]. Karşılaştırmalı olarak, AhR ligandı tetraklorodibenzo-p-dioksin, Treg hücrelerini indükleyerek, Th17 hücrelerini baskılayarak ve bağırsak mikrobiyotasındaki disbiyozisi tersine çevirerek gecikmiş tip aşırı duyarlılığı hafifletebildi [370]. Benzer şekilde, yaşamın erken dönemlerinde bütirat ve propiyonat gibi dışkıda daha yüksek SCFA'lara sahip bireylerde astım ve atopi gelişimi riski belirgin şekilde azalmıştır [371]. Potansiyel terapötik değeri olan SCFA takviyesi, astımı hafifletmek için T hücrelerini ve DC'leri modüle edebilir [372]. Benzer şekilde, diyet lifi veya asetat ile anne desteğinin, Foxp3 geninin asetilasyonunu teşvik ederek yenidoğanları astımdan koruduğu gösterilmiştir [373]. Diyet lifi ile beslenme aynı zamanda CD103+ DC'lerde retina dehidrojenaz aktivitesi yoluyla gıda alerjenlerine karşı koruma sağlamıştır [374]. Dikkat çekici bir şekilde, diyet lifi inülinin yakın zamanda alerjen ve helmint kaynaklı tip 2 inflamasyonu teşvik ettiği bulunmuştur ve bu safra asidine bağlıdır [375]. Genel olarak, bağırsak mikrobiyotasının alerjiler üzerindeki etkisi, metabolitler tarafından yüksek oranda düzenleniyor gibi görünüyor, ancak her mikrobiyal ürünün, aşırı duyarlılığı artırabilen veya azaltabilen bağımsız etkileri var.
7.11. Psikiyatrik Bozukluklar: Bağırsak-Beyin Ekseni
Yukarıda belirtilen bilgiler bağırsak mikrobiyotasının hem intra hem de ekstraintestinal hastalıkları etkileyebileceğini açıklamaktadır. Bağırsak mikrobiyotasının etkileyebileceği diğer bir organ da, 'stresli bağırsak'ın çeşitli nörolojik bozukluklarda patolojik bir varlık olarak giderek daha fazla tanındığı beyindir. Bağırsak mikrobiyotası olgunlaşmamış preterm bebeklerde, Klebsiella'nın aşırı büyümesi beyin hasarını yüksek oranda öngörür ve proinflamatuar immünolojik tonla ilişkilidir [376]. Parkinson hastalığı bağırsakta alfa-sinüklein birikimi ile belirgindir ve hastalar sıklıkla daha yüksek Prevotellaceae popülasyonuna sahip mikrobiyota disbiyozisi nedeniyle sızdıran bağırsaktan muzdariptir [13]. Bu semptomlar probiyotiklerin uygulanmasıyla tersine çevrilebilir [377,378]. Son zamanlarda mikrobiyotanın ruh sağlığını şekillendirdiği fikri ilgi görmeye başladı. Taksonomik ve metabolik imzalar, majör depresif bozukluğu hafif, orta ve şiddetli semptom kategorilerine ayırmak için bir biyobelirteç olarak önerilmiştir [379]. Zihinsel olarak sağlıklı kişiler ile anksiyete ve/veya depresyon gibi zihinsel sağlık bozuklukları olan kişiler arasındaki mikrobiyota farklılıklarını inceleyen çeşitli çalışmalar, doğumdan önce ve sonra mikrobiyal kolonizasyonun yaşamın ilerleyen dönemlerinde önemli bir rol oynadığını öne sürmektedir. Örneğin, annedeki stres, yavrularda Bifidobacterium spp.'nin önemli ölçüde azalmasıyla belirgin olan anormal nörolojik gelişime neden olabilir. [380]. Üstelik sezaryenle doğan yenidoğanlarda, vajinal doğumun aksine, yaşamın ilerleyen dönemlerinde psikoz gelişme riski daha yüksektir [377,381]. Etkileyici bir şekilde, yaşamın erken döneminde oksitosin tedavisi, sezaryenle doğan yavrularda görülen davranış bozukluklarını en aza indirebilir [382]. Özellikle doğum sonrası ve sütten kesme aşamalarında geniş spektrumlu, bağırsak mikrobiyotasını tüketen antibiyotiklerden oluşan bir kokteyl, anksiyete ile ilişkili davranışsal sonuçların ergenlik ve yetişkinlikte uzun süreli etkilerine neden olabilir [383]. Li ve arkadaşları tarafından yakın zamanda yapılan zarif bir çalışma. bebeklerin antibiyotiklere maruz kalmasının, artan inflamatuar ortamla eş zamanlı olarak anksiyete ve depresyon benzeri davranışlara ve hafıza bozukluklarına yol açtığını açıkladı; farelerde ergenlik ve yetişkinlik aşamalarında uzun süreli antibiyotik tedavisinin ardından benzer bulgular görülmüştür [384]. Bağırsak mikrobiyotasının erken yaşta bozulması aynı zamanda cinsiyete özgü kaygı benzeri davranışlara da neden olabilir; burada Wistar sıçanlarında LPS tedavisi, sosyal davranışta artış olan dişilere kıyasla erkeklerde daha az sosyal etkileşimle sonuçlandı [385]. 'Yaşlı bir mikrobiyomdan' mikropsuz farelere kadar FMT'nin SCFA'ları azalttığı dikkat çekicidir ve bu, bilişsel gerileme ile ilişkilidir [386]. Bağırsak mikrobiyotası-bağışıklık-beyin ekseni henüz başlangıç aşamasındadır ve davranışsal anormallikler ve nörolojik bozukluklardan sorumlu olan bağışıklık düzenlemesinde yer alan mekanizmaların kurulması için araştırma yapılması gerekmektedir. Bununla birlikte, bakterilerin yanı sıra diğer mikroorganizmalara da bakmanın önemi vurgulanmalıdır çünkü mukozal mantarların tamamlayıcı Th17 bağışıklık mekanizmaları yoluyla sosyal davranışı teşvik ettiği bulunmuştur [387].
8. İmmünoterapide Bağırsak Mikrobiyotası ve Metabolitleri Arasındaki İlişki
Şu anda ön saf immünoterapi tedavileri arasında T hücreleri (kontrol noktası inhibitörleri, ortak uyarıcı reseptör agonistleri), T hücresi modifikasyonu, uyarlayıcı T hücresi transferi, otolog sitokin kaynaklı öldürücü hücreler, kimerik antijen reseptör terapisi, sitokinler, onkolitik virüsler ve aşılar yer almaktadır [388,389]. Son yıllarda, CTLA-4'ya karşı antikorlar, programlanmış hücre ölümü proteini 1 (PD-1) ve programlanmış ölüm ligandı 1 (PD-L1) dahil olmak üzere bağışıklık kontrol noktası inhibitörlerinin (ICI'ler) uygulanmasına dayanan immünoterapi ), çeşitli tümörlerde birinci veya ikinci basamak tedavi olarak onaylanmıştır [390]. Özellikle PD-1'yi ve onun ligandı PD-L1'i hedef alan ICI'ler, 10 farklı kanser türünün tedavisi için ABD Gıda ve İlaç İdaresi (FDA) tarafından onaylanmıştır [391]. Son çalışmalar, bazı klinik öncesi ve klinik çalışmalarda bağırsak mikrobiyotasının kanser immünoterapisine yanıtın önemli bir belirleyicisi olabileceğini düşündürmektedir [392-394]. Matson ve ark. Bifidobacterium longum, Collinsella aerofaciens ve Enterococcus faecium'un PD-1 inhibitörlerine yanıt veren hastalarda daha yüksek bolluğa sahip olduğunu gösterdi [395]. Çeşitli çalışmalar, PD-1 inhibitörlerine yanıt verenlerle yanıt vermeyenlerin mikrobiyomlarında, yanıt verenlerde Faecalibacterium, Ruminococcus ve Akkermansia artışları ve yanıt vermeyenlerde Bacteroides artışları dahil olmak üzere önemli farklılıklar bulmuştur [392,396,397]. Ek olarak, karaciğer kanseri hastalarına yönelik anti-PD-1 tedavisi, Faecalibacterium bolluğunun artmasına ve daha iyi ilerlemesiz sağkalıma yol açtı [398]. Ek çalışmalar ayrıca bağırsak bakterilerinin bileşiminin bazı immünoterapötik ilaçların metabolizmasını etkileyebileceğini göstermiştir. PD{30}}tedavisine yanıt veren hastalardan mikropsuz farelere dışkı transferi, T hücresi yanıtlarını arttırdı ve PD{33}} inhibitör tedavisinin etkinliğini arttırdı [395]. Bifidobacterium pseudolongum ve Akkermansia muciniphila tarafından üretilen inozin ayrıca T hücrelerini aktive ederek anti-CTLA-4 ve anti-PD-L1 tedavisini destekledi [213]. Karşılaştırmalı olarak, Coutzac ve ark. bütirat ve propiyonatın CTLA-4 inhibitörlerinin etkinliğini sınırladığını, bunun da daha yüksek Treg popülasyonu ve daha düşük hayatta kalma ile ilişkili olduğunu gösterdi [399]. Yeni izole edilmiş bir probiyotik Lactobacillus suşu (L. paracasei sh2020), tümörlerdeki CXCL10 ekspresyonunu yukarı doğru düzenleyerek ve ardından CD8+ T'yi artırarak, CRC tümörü taşıyan farelerde anti-PD-1 etkilerini destekledi. hücre alımı [400]. Dikkat çekici bir şekilde, bu anti-tümör etkileri bağırsak mikrobiyota disbiyozunun varlığında bile meydana geldi. Bu klinik öncesi ve klinik kanıtlar, immünoterapilerin maksimum etkinliğini sağlamak için bağırsak mikrobiyotasının gerekliliğini belirlemek amacıyla devam eden araştırmayı desteklemektedir (Şekil 3). Bu, muhtemelen ICI ile ilişkili kardiyotoksisite gibi immünoterapilerin olumsuz yan etkilerini sınırlamak için bağırsak mikrobiyotasının kullanılmasını içerir. Chen ve diğerleri. PD-1/PD-L1 inhibitörünün Prevotellaceae ve Rikenellaceae mikrobiyota popülasyonlarını tükettiğini, bütirat seviyelerini azalttığını ve PPAR -CYP4 × 1 ekseninin aşağı regülasyonu yoluyla proinflamatuar makrofaj M1 polarizasyonunu desteklediğini zarif bir şekilde tanımlamıştır [401]. Terapötik açıdan anlamlı olarak, Prevotella loescheii'nin yeniden kolonileştirilmesi ve bütirat takviyesi, PD-1/PD-L1 inhibitörüne bağlı kardiyotoksisiteyi hafifletmiştir [401]. İmmün kontrol noktaları genellikle heterojen olduğundan ve kalıcı olmadığından, tedaviye yanıt oranı, ilaç direnci ve advers reaksiyonlarla sonuçlanabileceğinden [402-404], bağırsak mikrobiyotasını hedef alan tedaviler önemli adjuvanlar olabilir (Şekil 3). Şu anda onaylanmış ve mevcut IBD tedavileri, anti-TNF ajanları, anti-integrin ajanları, anti{74}} monoklonal antikorlar ve Janus kinaz (JAK) inhibitörleridir. JAK inhibitörleri (örneğin, baricitinib), yüksek yağ-yüksek şekerle beslenmeyi takiben insülin sinyalini düzeltmede ve miyosteatozu iyileştirmede başarılı olmuştur, ancak farelerde bağırsak mikrobiyotasında diyetin neden olduğu değişiklikleri tersine çevirmemişlerdir [405]. Anti-TNF inhibitörleri hem ÇH hem de ÜK'de klinik sonuçları iyileştirmiştir, ancak yine de daha fazla randomize klinik çalışmaya ihtiyaç vardır [402]. Bununla birlikte, FMT'nin yakın zamanda anti-TNF tedavisine (yani infliksimab) önceden yanıt kaybı veya intoleransı olan ÇH hastaları için potansiyel bir alternatif tedavi olduğunun bulunması dikkate değerdir [406]. Etkileyici bir şekilde, probiyotik Bifidobacterium longum (B. longum) CECT 7894, Enterococcus ve Pseudomonas gibi fırsatçı patojenlerin bolluğunu azaltarak ve ikincil safra asitlerini artırarak bir fare kolit modelinde infliksimabın etkinliğini arttırmıştır [407]. Yakın zamanda yapılan başka bir çalışma da benzer şekilde hem anti-TNF hem de anti-IL{87}}/23 tedavilerinin bağırsak mikrobiyotasını ikincil safra asidi üretimi yapabilen mikrobiyal türleri destekleyecek şekilde değiştirdiğini buldu [408]. İkincil safra asitlerindeki yükselme, Clostridia spp.'nin çoğalmasını teşvik eden anti-TNF tedavisine bağlı olabilir. bağırsak mikrobiyotasının restorasyonunun bir parçası olarak [409]. Safra asitlerinin, anti-TNF tedavi yanıtı için potansiyel bir metabolik biyobelirteç olduğu düşünülmektedir [410], ancak safra asitlerinin immünoterapi etkinliğini arttırıp artırmadığını belirlemek için daha fazla araştırmaya ihtiyaç vardır (Şekil 3). NF-κB sinyalini inhibe ederek KRK'nin yeniden ortaya çıkmasını önlemek için UDCA tedavisine ilişkin kanıtlar dikkate alındığında ikincil safra asitlerinin faydalı olabileceğine dair bir ipucu vardır [411,412]. Ayrıca UDCA'nın, tümör taşıyan farelerde kanserin ilerlemesini engellemek için anti-PD1 etkileriyle sinerji oluşturduğu bulunmuştur [413]. Genel olarak, bağırsak mikrobiyotasının immünoterapi yanıtını iyileştirmek için hem biyobelirteç hem de terapötik hedef olarak kullanılabileceği görülmektedir.
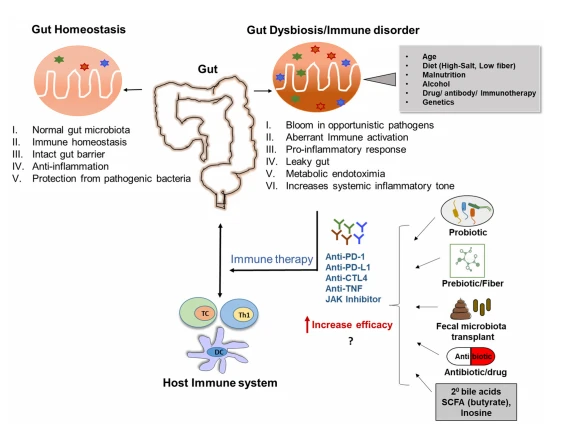
Şekil 3. Bağırsak mikrobiyota popülasyonunun bolluğunu değiştirmek immünoterapinin sonuçlarını etkileyebilir. Sağlıklı bir bağırsak mikrobiyomu, konakçıdaki ilaçların biyoyararlanımını ve etkinliğini artırabilir. Tanımlanan çeşitli faktörlerin neden olduğu disbiyoz, terapötik ilaçların etkinliğini azaltarak kötü terapötik sonuçlara yol açabilir. Bağırsak mikrobiyotasını değiştirmek, anti-PD-1 antikorları, anti-PD-L1 antikorları ve anti-CTL4 antikor tedavileri gibi bazı immünoterapötik ilaçların etkinliğini artırabilir. Bağırsak mikrobiyotası, antibiyotikler, probiyotikler, prebiyotikler, ikincil safra asitleri, kısa zincirli yağ asitleri (örneğin, bütirat), inozin veya dışkı nakli ile desteklenerek değiştirilebilir.
9. Bağışıklık-Mikrobiyom Araştırmalarında Vaatler, Zorluklar ve Riskler
Mikrobiyota ile bağışıklık sistemleri arasındaki etkileşim ve bunların İBH, otoimmün artrit ve kanser gibi hastalıklar üzerindeki etkisi inanılmaz derecede karmaşıktır. Karmaşıklığın bir katmanı, belirli bir tek veya bakteri grubunun hastalığın başlangıcında veya genel konakçı fizyolojisindeki kesin etkisini gösterme zorluğunu içerir. Mikropların mikropsuz modellere kolonizasyonu, bağırsak mikroorganizmalarının konak sağlığı ve hastalığındaki potansiyel etkilerini daha iyi anlamak için uygun bir stratejidir [414]. Ancak bağırsak mikrobiyotası sadece seçilmiş birkaç türden çok daha fazlasıdır. Türlerin birbirini dışladığı veya kaynaklar için rekabetçi olduğu ve birçok mikropun büyüme için birbirine bağımlı olduğu mikrobiyom ortamında güçlü bir dinamik vardır [415]. Karmaşıklığın başka bir katmanı, beslenme, sigara içme, uyuşturucular ve ilaçlar gibi birbiriyle etkileşim halinde olan diğer genetik ve çevresel faktörleri içerir (Şekil 2). Bu, bireyler için kentsel ve kırsal alanlar arasındaki mikrobiyotadaki (ve potansiyel olarak bağışıklık yanıtlarındaki) farklılıkları içerir [416]. Ancak kemirgen modellerinde görülen gözlemler her zaman insanlara aktarılamaz. Belirli patojen içermeyen ortamlarda yaşayan araştırma kemirgenleriyle karşılaştırıldığında, insanların ve diğer memelilerin 'daha kirli' bir ortamda yaşadıkları genel olarak ifade edilebilir. Bu nedenle hijyen hipotezini yansıtan çevrenin temizliği mikrobiyota kompozisyonunu ve hastalık duyarlılığını etkileyebilir. Bu fikir, döllenmiş farelerin (sürekli olarak hayvan çiftliği tipi bir ortama maruz kalan hayvanlar) hijyenik olarak doğmuş farelerle karşılaştırıldığında daha stabil bir bağırsak mikrobiyotasına sahip oldukları ve mutajen ve kolit kaynaklı neoplaziye karşı dirençli kaldıklarına dair son bulgularla desteklenmektedir [417].
Mikrobiyom-bağışıklık araştırmalarına odaklanan birçok çalışma, mikrobiyomu karakterize etmek için 16S rRNA dizilimini kullanmıştır, ancak bu yöntemin, cinsi başarılı bir şekilde tanımlayabilmesi ancak tür düzeyinde ayrım sağlayamaması nedeniyle sınırlamaları vardır [418]. Bu nedenle, mikrobiyomlarla ilgili daha kapsayıcı bir çalışma elde etmek için metagenomiklerin diğer -omik yaklaşımlarla birleştirilmesi tavsiye edilir [419]. Son zamanlarda metatranskriptomikler ve metabolomikler mikrobiyom çalışmaları için hızla önem kazanmaktadır. Metagenomik numunenin taksonomik profilini oluşturur, metatranskriptomik fonksiyonel bir profil elde eder ve metabolomik, mikrobiyota tarafından çevreye hangi yan ürünlerin salındığını belirleyerek tasviri sonlandırır [419]. Bu -omik yaklaşımların her biri kendi başına değerli bilgiler sağlasa da, birleştirilmiş -omiklerden daha eksiksiz bir tablo elde edilmesi önerilmektedir. Bu -omik yaklaşımların önemli bir faydası, ham dosyaların veritabanlarına kaydedilebilmesi ve daha sonra diğer araştırma grupları tarafından analiz edilmek üzere çıkarılabilmesidir. Birden fazla veri tabanını karşılaştırmak için makine öğrenimi uygulandığında ortaya çıkabilecek bir sınırlama, örneklem boyutundaki eşitsizliktir [420]. Ayrıca, araştırma ve/veya klinik çalışmalar arasında bağırsak mikrobiyotası değişikliklerinin örtüşen modellerini bulmak zor olabileceğinden, -omik sonuçları çalışmaya özel olarak değerlendirilebilir. Bunun nedeni, insanlarda bağırsak mikrobiyotasının (artı metabolitlerinin) ve hastalık duyarlılığının coğrafi kökene bağlı olarak değişebilmesidir [421] ve hatta yaygın laboratuvar kemirgenlerindeki bakteri bileşiminin bile araştırma tesisleri ve satıcıları arasında farklı olabilmesidir [422]. Genel olarak, -omikler potansiyel teşhis ve tedavi hedeflerini belirlemek için biyomedikal alanı kesinlikle ilerletmektedir, ancak hâlâ aşılması gereken bazı sınırlamalar vardır.
10. Sonuçlar
Özetle, konakçı bağışıklık sistemi ve bağırsak mikrobiyomu, konağın normal fonksiyonu ve refahı için büyük ölçüde birbirine bağımlıdır (Grafik Özetinde özetlenmiştir). Bu inceleme, fetal bağışıklık uygunluğunun çevresel olarak anne mikrobiyotasına (sağlıklı ve disbiyoz veya stresli) nasıl bağımlı olduğu da dahil olmak üzere yeni bulguları kapsıyordu. Treg hücrelerini ve IL-10 salgısını indükleyerek bağırsak homeostazisini modüle eden SCFA ve ikincil safra asitleri gibi yeni mekanik yollar tartışılmıştır (Şekil 1A, B). İnceleme boyunca, bütirat ve onun öncül diyet lifinin bağışıklık tepkilerini etkilediği ve birçok hastalık için potansiyel terapötik maddeler olarak hareket ettiği defalarca dile getirildi, ancak bazı kanıtlar bunların klinik uygulamalarının hastalık bağlamına oturtulması gerekebileceğini gösteriyor. Karşılaştırmalı olarak, probiyotikler ve FMT, bağırsak mikrobiyotasındaki öbiyotiklerin onarılmasında ve inflamatuar hastalıkların hafifletilmesinde daha umut verici görünmektedir. Üstelik bağırsak mikrobiyotası, mevcut immünoterapilerin iyileştirilmesi ve bunların olumsuz yan etkilerinin azaltılması için önemli bir hedef gibi görünmektedir (Şekil 3). Ayrıca, her mikrobiyotayı insanlar arasında benzersiz kılan ve tür modellerini karşılaştırırken temel olarak genetik ve çevresel faktörlere (Şekil 2) dayanan mikrobiyom araştırmalarındaki mevcut zorlukları da tartıştık. Epigenomik, meta-genomik, meta-proteomik, metabolomik, kültüromik ve tek hücreli transkriptomik dahil çoklu omik yöntemlerdeki son gelişmelerin, sağlık ve hastalıkta bağırsak mikrobiyomu ile bağışıklık sistemi arasındaki etkileşimleri aydınlatacağını varsayıyoruz [423] . Bu nedenle, immünolojik hastalıklar için 'kişiselleştirilmiş mikrobiyom hedefli' tedavinin geliştirilmesini destekleyecek olan bağırsak mikrobiyom profillerine dayalı 'spesifik' konakçı bağışıklık tepkilerini tahmin etmek heyecan verici olacaktır.
Referanslar
1. Donne, J. No Man Is an Island; Paul Peter Piech'in çizdiği; Taurus Press: Willow Dene, İngiltere, 1975.
2. Kiriş, A.; Clinger, E.; Hao, L. Diyet ve Diyet Bileşenlerinin Bağırsak Mikrobiyotasının Bileşimi Üzerindeki Etkisi. Besinler 2021, 13, 2795. [CrossRef] [PubMed]
3. Shanahan, F.; Ghosh, TS; O0 Toole, PW Sağlıklı Mikrobiyom-Sağlıklı Bağırsak Mikrobiyomunun Tanımı Nedir? Gastroenteroloji 2021, 160, 483–494. [CrossRef] [PubMed]
4. Valdes, AM; Walter, J.; Segal, E.; Spector, TD Beslenme ve sağlıkta bağırsak mikrobiyotasının rolü. BMJ 2018, 361, k2179. [CrossRef] [PubMed]
5. Bull, MJ; Plummer, NT Bölüm 1: Sağlık ve Hastalıkta İnsan Bağırsak Mikrobiyomu. İntegr. Med. 2014, 13, 17–22.
6. Çuval, D.; Baxter, B.; Campbell, BC; Marangoz, JS; Cognard, C.; Dippel, D.; Eesa, M.; Fischer, U.; Hausegger, K.; Hirsch, JA Çok Toplumlu Konsensüs Kalite İyileştirmesi Akut İskemik İnmenin Endovasküler Tedavisi için Gözden Geçirilmiş Konsensus Beyanı. Uluslararası J. Stroke 2018, 13, 612–632. [ÇaprazRef]
7. Matijasic, M.; Mestroviç, T.; Paljetak, HC; Peric, M.; Baresic, A.; Verbanac, D. IBD'de Bakteri-Mikobiyom, Virom, Arkeom ve Ökaryotik Parazitlerin ötesinde Gut Mikrobiyota. Uluslararası J. Mol. Bilim. 2020, 21, 2668. [CrossRef]
8. Giuffre, M.; Campigotto, M.; Campisciano, G.; Comar, M.; Croce, LS Karaciğer ve bağırsak mikroplarının hikayesi: Bağırsak florası karaciğer hastalığını nasıl etkiler? Literatürün gözden geçirilmesi. Am. J. Physiol. Mide testi. Karaciğer Fizyolü. 2020, 318, G889–G906. [ÇaprazRef]
9. Gomaa, EZ Sağlık ve hastalıklarda insan bağırsağı mikrobiyotası/mikrobiyomu: Bir inceleme. Antonie Van Leeuwenhoek 2020, 113, 2019–2040. [ÇaprazRef]
10. Mills, S.; Stanton, C.; Lane, JA; Smith, GJ; Ross, RP Hassas Beslenme ve Mikrobiyom, Bölüm I: Bilimin Güncel Durumu. Besinler 2019, 11, 923. [CrossRef]
11. Adak, A.; Khan, MR Bağırsak mikrobiyotası ve işlevlerine dair bir bakış. Hücre. Mol. Hayat Bilimi 2019, 76, 473–493. [ÇaprazRef]
12. Gensollen, T.; Iyer, SS; Kasper, DL; Blumberg, RS Yaşamın erken döneminde mikrobiyotanın kolonizasyonu bağışıklık sistemini nasıl şekillendiriyor. Bilim 2016, 352, 539–544. [CrossRef] [PubMed]
13. Giuffre, M.; Moretti, R.; Campisciano, G.; da Silveira, ABM; Monda, VM; Comar, M.; Di Bella, S.; Antonello, RM; Luzzati, R.; Croce, LS Benimle mi konuşuyorsun? Mikroba Enterik Sinir Sistemi (ENS) diyor. Bağırsak Mikropları ENS ile Nasıl Etkileşime Girer? J. Clin. Med. 2020, 9, 3705. [CrossRef]
14.Ço, Y.; Shore, SA Obezite, Astım ve Mikrobiyom. Fizyoloji 2016, 31, 108–116. [CrossRef] [PubMed]
15. McComb, S.; Thiriot, A.; Akache, B.; Krishnan, L.; Stark, F. Bağışıklık Sistemine Giriş. Yöntemler Mol. Biyol. 2019, 2024, 1–24. [CrossRef] [PubMed]
16. Chan, L.; Karimi, N.; Morovati, S.; Alizadeh, K.; Kakish, JE; Vanderkamp, S.; Fazel, F.; Napolyon, C.; Alizadeh, K.; Mehrani, Y.; ve ark. Sitokin Fırtınalarında Nötrofillerin Rolleri. Virüsler 2021, 13, 2318. [CrossRef]
17. Dominguez-Bello, MG; Costello, EK; Contreras, M.; Magris, M.; Hidalgo, G.; Fierer, N.; Knight, R. Doğum modu, yenidoğanlarda çoklu vücut habitatlarında ilk mikrobiyotanın edinimini ve yapısını şekillendirir. Proc. Natl. Acad. Bilim. ABD 2010, 107, 11971–11975. [ÇaprazRef]
18. Mitchell, CM; Mazzoni, C.; Hogstrom, L.; Bryant, A.; Bergerat, A.; Cher, A.; Pochan, S.; Herman, P.; Carrigan, M.; Keskin, K.; ve ark. Dağıtım Modu Erken Bebek Bağırsak Mikrobiyotasının Stabilitesini Etkiler. Hücre Rep. Med. 2020, 1, 100156. [CrossRef]
19. Selma-Royo, M.; Calatayud Arroyo, M.; Garcia-Mantrana, I.; Parra-Llorca, A.; Escuriet, R.; Martinez-Costa, C.; Collado, MC Perinatal ortam, mikrobiyota kolonizasyonunu ve bebek büyümesini şekillendirir: Konak tepkisi ve bağırsak fonksiyonu üzerindeki etki. Mikrobiyom 2020, 8, 167. [CrossRef]
20. Subramanian, S.; Geng, H.; Du, C.; Chou, Başbakan; Bu, HF; Wang, X.; Swaminathan, S.; Tan, SC; Ridlon, JM; De Plaen, IG; ve ark. Besleme modu, dinamik bağırsak mikrobiyota imzalarını etkiler ve yenidoğan farelerde anti-CD3 mAb'nin neden olduğu bağırsak hasarına duyarlılığı etkiler. Am. J. Physiol. Mide testi. Karaciğer Fizyolü. 2022, 323, G205–G218. [ÇaprazRef]
21. Wampach, L.; Heintz-Buschart, A.; Fritz, Ortak Girişim; Ramiro-Garcia, J.; Haberer, J.; Herold, M.; Narayanasamy, S.; Kaysen, A.; Hogan, AH; Bindl, L.; ve ark. Doğum modu, suşun sağladığı en erken bağırsak mikrobiyomu fonksiyonları ve immün sistemi uyarıcı potansiyel ile ilişkilidir. Nat. İletişim 2018, 9, 5091. [CrossRef] 22. Negi, S.; Hashimoto-Hill, S.; Alenghat, T. Enfeksiyonu etkileyen neonatal mikrobiyota-epitelyal etkileşimler. Ön. Mikrobiyol. 2022, 13, 955051. [CrossRef] [PubMed]
23. Senn, V.; Bassler, D.; Choudhury, R.; Scholkmann, F.; Righini-Grunder, F.; Vuille-Dit-Bile, RN; Restin, T. Fetustan Erken Çocukluğa Mikrobiyal Kolonizasyon-Kapsamlı Bir İnceleme. Ön. Hücre. Bulaştırmak. Mikrobiyol. 2020, 10, 573735. [CrossRef] [PubMed]
24. Rackaityte, E.; Halkias, J.; Fukui, EM; Mendoza, VF; Hayzelden, C.; Crawford, ED; Fujimura, KE; Burt, TD; Lynch, SV Rahimdeki insan bağırsağında canlı bakteri kolonizasyonu oldukça sınırlıdır. Nat. Med. 2020, 26, 599–607. [ÇaprazRef]
25. Li, Y.; Toothaker, JM; Ben-Simon, S.; Özeri, L.; Schweitzer, R.; McCourt, BT; McCourt, CC; Werner, L.; Snapper, SB; Shouval, DS; ve ark. Utero insan bağırsağı, bakteriyel metabolitler de dahil olmak üzere benzersiz bir metabolomu barındırır. JCI Insight 2020, 5, e138751. [CrossRef] [PubMed]
26. Jain, N. Bağışıklık sisteminin erken yaşam eğitimi: Anneler, mikroplar ve (kaçırılan) fırsatlar. Bağırsak Mikropları 2020, 12, 1824564. [CrossRef]
27. Gierynska, M.; Szulc-Dabrowska, L.; Struzik, J.; Mielcarska, MB; Gregorczyk-Zboroch, KP Bağırsak Bariyerinin Bütünlüğü: Epitel Hücrelerinin ve Mikrobiyota-A Karşılıklı İlişkisinin Katılımı. Hayvanlar 2022, 12, 145. [CrossRef]
28. Westrom, B.; Arevalo Sureda, E.; Pierzynowska, K.; Pierzynowski, SG; Perez-Cano, FJ Olgunlaşmamış Bağırsak Bariyeri ve Yeni Doğan Memelilerde Bağışıklık Oluşturmadaki Önemi. Ön. İmmünol. 2020, 11, 1153. [CrossRef]
29. Rabe, H.; Lundell, AC; Sjoberg, F.; Ljung, A.; Strombeck, A.; Gio-Batta, M.; Maglio, C.; Nordstrom, I.; Andersson, K.; Nookaew, I.; ve ark. Bifidobacterium'un neonatal bağırsak kolonizasyonu, daha yüksek çocukluk sitokin tepkileri ile ilişkilidir. Bağırsak Mikropları 2020, 12, 1847628. [CrossRef]
30. Henrick, BM; Rodriguez, L.; Lakshmikanth, T.; Pou, C.; Henckel, E.; Arzoomand, A.; Olin, A.; Wang, J.; Mikes, J.; Tan, Z.; ve ark. Bifidobakterilerin aracılık ettiği bağışıklık sistemi yaşamın erken döneminde damgalanıyor. Hücre 2021, 184, 3884–3898. [ÇaprazRef]
31. Çene, N.; Mendez-Lagares, G.; Taft, DH; Laleau, V.; Kieu, H.; Narayan, NR; Roberts, SB; Mills, DA; Hartigan-O0 Connor, DJ; Flaherman, VJ Bebek Maması Takviyesinin Bağırsak Mikrobiyotası Üzerindeki Geçici Etkisi. Besinler 2021, 13, 807. [CrossRef]
32. Al Nabhani, Z.; Dulauroy, S.; Marques, R.; Kuusu, C.; Al Bounny, S.; Dejardin, F.; Sparwasser, T.; Berard, M.; Cerf-Bensussan, N.; Eberl, G. Yetişkinlerde İmmünopatolojilere Direnç İçin Mikrobiyotaya Sütten Kesme Reaksiyonu Gereklidir. Bağışıklık 2019, 50, 1276–1288. [CrossRef] [PubMed]
33. Roubaud-Baudron, C.; Ruiz, VE; Swan, AM, Jr.; Vallance, BA; Özkul, C.; Pei, Z.; Li, J.; Battaglia, TW; Perez-Perez, GI; Blaser, MJ Erken Yaşamda Antibiyotiğe Maruz Kalmanın Sonraki Bakteriyel Enfeksiyona Direnç Üzerindeki Uzun Dönemli Etkileri. mBio 2019, 10, e02820-19. [CrossRef] [PubMed]
34. Cahenzli, J.; Koller, Y.; Wyss, M.; Geuking, MB; McCoy, KD Erken yaşam kolonizasyonu sırasındaki bağırsak mikrobiyal çeşitliliği, uzun vadeli IgE seviyelerini şekillendirir. Hücre Konağı Mikrobu 2013, 14, 559–570. [CrossRef] [PubMed]
35. El Aidy, S.; Hooiveld, G.; Tremaroli, V.; Backhed, F.; Kleerebezem, M. Bağırsak mikrobiyotası ve mukozal homeostazis: Doğumda veya yetişkinlikte kolonize olmak önemli mi? Bağırsak Mikropları 2013, 4, 118–124. [ÇaprazRef]
36. Wang, C.; Li, Q.; Ren, J. Bağırsak Kaynaklı Enfeksiyonun Patogenezinde Mikrobiyota-İmmun Etkileşimi. Ön. İmmünol. 2019, 10, 1873. [CrossRef]
37. McGuckin, MA; Linden, SK; Sutton, P.; Florin, TH Müsin dinamikleri ve enterik patojenler. Nat. Rev. Mikrobiyol. 2011, 9, 265–278. [ÇaprazRef]
38. Mogensen, TH Doğuştan gelen bağışıklık savunmasında patojen tanıma ve inflamatuar sinyalleşme. Klin. Mikrobiyol. Rev. 2009, 22, 240–273. [ÇaprazRef]
9. Minarrieta, L.; Ghorbani, P.; Sparwasser, T.; Berod, L. Metabolitler: DC'ler ve çevreleri arasındaki moleküler dilin çözülmesi. Semin. İmmünopatol. 2017, 39, 177–198. [ÇaprazRef]
40. Levy, M.; Kolodziejczyk, AA; Thaiss, Kaliforniya; Elinav, E. Disbiyoz ve bağışıklık sistemi. Nat. Rev. Immunol. 2017, 17, 219–232. [ÇaprazRef]
41. Morikawa, M.; Tsujibe, S.; Kiyoshima-Shibata, J.; Watanabe, Y.; Kato-Nagaoka, N.; Şida, K.; Matsumoto, S. İnce Bağırsak Mikrobiyotası, Lamina Propria ve Peyer0 Yamalarındaki Fagositler Tarafından Seçici Olarak Yutulur. PLoS ONE 2016, 11, e0163607. [ÇaprazRef]
42. Kohler, A.; Delbauve, S.; Smout, J.; Torres, D.; Flamand, V. Yaşamın çok erken dönemlerinde mikrobiyota kaynaklı TNF'ye maruz kalma, yenidoğan öncesi cDC1'in olgunlaşmasını sağlar. Bağırsak 2021, 70, 511–521. [CrossRef] [PubMed]
43. Johansson, ME; Hansson, GC Bağırsak mukus ve müsinlerinin immünolojik yönleri. Nat. Rev. Immunol. 2016, 16, 639–649. [CrossRef] [PubMed]
44. Humayun, M.; Ayuso, JM; Park, Kent; Martorelli Di Genova, B.; Skala, MC; Kerr, SC; Knoll, LJ; Beebe, DJ İnsan bağırsak dokusu mikrofizyolojik sisteminde konakçı-parazit etkileşimine doğuştan gelen bağışıklık hücresi tepkisi. Bilim. Av. 2022, 8, eabm8012. [CrossRef] [PubMed]
45. Artis, D.; Spits, H. Doğuştan lenfoid hücrelerin biyolojisi. Doğa 2015, 517, 293–301. [CrossRef] [PubMed]
46. Lankelma, JM; van Vught, Los Angeles; Belzer, C.; Schultz, MJ; van der Poll, T.; de Vos, WM; Wiersinga, WJ Kritik hastalar, bağırsak mikrobiyota düzensizliğinde kişilerarası büyük farklılıklar göstermektedir: Bir pilot çalışma. Yoğun Bakım Med. 2017, 43, 59–68. [ÇaprazRef]
47. Fournier, BM; Parkos, CA Bağırsak iltihabı sırasında nötrofillerin rolü. Mukozal İmmünol. 2012, 5, 354–366. [ÇaprazRef]
48. Loh, JT; Lee, KG; Lee, AP; Teo, JKH; Lim, HL; Kim, SS; Tan, AH; Lam, KP DOK3, nötrofillerde JAK2/STAT3 sinyalini ve S100a8/9 üretimini baskılayarak bağırsak homeostazisini korur. Hücre Ölümü Dis. 2021, 12, 1054. [CrossRef]
49. Seo, DH; Che, X.; Kim, S.; Kim, DH; Ma, HW; Kim, JH; Kim, TI; Kim, WH; Kim, SW; Cheon, JH Miyeloid Hücrelerde Eksprese Edilen Tetikleyici Reseptör-1 Agonist, Cd177(+) Nötrofiller Yoluyla Bağırsak Enflamasyonunu Düzenler. Ön. İmmünol. 2021, 12, 650864. [CrossRef]
50. Vong, L.; Yeung, CW; Pinnell, LJ; Sherman, PM Yapışkan-invaziv Escherichia coli, Antibiyotikle ilişkili Bağırsak Disbiyozunu ve Nötrofil Hücre Dışı Tuzak Aktivasyonunu Şiddetlendiriyor. Enflamasyon. Bağırsak Dis. 2016, 22, 42–54. [ÇaprazRef]
51. Delano, MJ; Ward, PA Bağışıklık sisteminin sepsisin ilerlemesi, çözümü ve uzun vadeli sonuçlarındaki rolü. İmmünol. Rev. 2016, 274, 330–353. [ÇaprazRef]
52. Apostolov, AK; Hamani, M.; Hernandez-Vargas, H.; Igalouzene, R.; Guyennon, A.; Fesneau, O.; Marie, JC; Soudja, SM Bağırsak İntraepitelyal gammadelta T Hücreleri ve Diğer gammadelta T Hücresi Alt Kümelerinin Ortak ve Ayrıcalıklı Özellikleri. Immunhorizons 2022, 6, 515–527. [CrossRef] [PubMed]
53. İsmail, AS; Severson, KM; Vaişnava, S.; Behrendt, CL; Yu, X.; Benjamin, JL; Ruhn, KA; Hou, B.; DeFranco, AL; Yarovinsky, F.; ve ark. Gammadelta intraepitelyal lenfositler, bağırsak mukoza yüzeyinde konakçı-mikrobiyal homeostazın temel aracılarıdır. Proc. Natl. Acad. Bilim. ABD 2011, 108, 8743–8748. [ÇaprazRef]
54. Holtmeier, W.; Kabelitz, D. Gammadelta T hücreleri, doğuştan gelen ve uyarlanabilir bağışıklık tepkilerini birbirine bağlar. Kimya İmmünol. Alerji 2005, 86, 151–183. [ÇaprazRef]
55. Tyler, CJ; McCarthy, NE; Lindsay, JO; Stagg, AJ; Moser, B.; Eberl, M. Antijen Sunan İnsan gammadelta T Hücreleri, IL-22'nin Bağırsak CD4(+) T Hücresi İfadesini ve Kalprotektin'in Mukozal Salınımını Destekler. J. Immünol. 2017, 198, 3417–3425. [CrossRef] [PubMed]
56. Li, Y.; Wang, Y.; Şi, F.; Zhang, X.; Zhang, Y.; Bi, K.; Chen, X.; Küçük.; Diao, H. Bağırsak mikrobiyotasının fosfolipit metabolitleri, CD1d'ye bağımlı gama delta T hücreleri yoluyla hipoksi kaynaklı bağırsak hasarını teşvik eder. Bağırsak Mikropları 2022, 14, 2096994. [CrossRef] [PubMed]
57. Tomasello, E.; Bedoui, S. Bağırsak homeostazisinde ve immün gözetimde bağırsakta doğuştan gelen bağışıklık hücreleri. İmmünol. Hücre Biol. 2013, 91, 201–203. [CrossRef] [PubMed]
58. Grimaldi, D.; Le Bourhis, L.; Sauneuf, B.; Dechartres, A.; Rousseau, C.; Ouaaz, F.; Daha hafif, M.; Louis, D.; Chiche, JD; Mira, JP; ve ark. Ciddi enfeksiyonları olan kritik hastalarda doğuştan gelen T lenfositleri arasında spesifik MAIT hücre davranışı. Yoğun Bakım Med. 2014, 40, 192–201. [ÇaprazRef]
59.Andreu-Balester, JC; Tormo-Calandin, C.; Garcia-Ballesteros, C.; Perez-Griera, J.; Amigo, V.; Almela-Quilis, A.; Ruiz del Castillo, J.; Penarroja-Otero, C.; Ballester, F. Septik hastalarda gama delta T hücrelerinin hastalık şiddeti ve mortalite ile ilişkisi. Klin. Aşı İmmunol. 2013, 20, 738–746. [ÇaprazRef]
60. Soylu, A.; Pring, ET; Durant, L.; Adam, R.; Dilke, SM; Hoyles, L.; James, SA; Taraklama, SR; Jenkins, JT; Knight, SC Kolorektal kanserde mikrobiyotaya karşı değişen bağışıklık, B hücresi aktivasyonu ve tükenmiş gama-delta/yerleşik hafıza T hücreleri. Kanser İmmunol. Bağışıklık. 2022, 71, 2619–2629. [ÇaprazRef]
61. Suzuki, H.; Jeong, KI; Itoh, K.; Doi, K. Mikropsuz ve spesifik patojen içermeyen farelerde ince bağırsak intraepitelyal lenfositlerinin dağılımındaki bölgesel farklılıklar. Tecrübe. Mol. Pathol. 2002, 72, 230–235. [ÇaprazRef]
62. Bedoui, S.; Heath, WR; Mueller, SN CD4(+) T hücresi, birincil CD8(+) T hücresi bağışıklığı için doğuştan gelen sinyallerin güçlendirilmesine yardımcı olur. İmmünol. Rev. 2016, 272, 52–64. [CrossRef] [PubMed]
63. Belz, GT; Shortman, K.; Bevan, MJ; Heath, WR CD8alfa+ dendritik hücreler, MHC sınıf I ile sınırlı, sitolitik olmayan viral ve hücre içi bakteriyel antijenleri in vivo olarak seçici olarak sunar. J. Immünol. 2005, 175, 196–200. [CrossRef] [PubMed]
64. Szstein, MB; Bafford, AC; Salerno-Goncalves, R. Salmonella enterica serovar Typhi'ye maruz kalma, insan bağırsak hücrelerinde ex vivo hücre tipine özgü epigenetik değişiklikleri ortaya çıkarır. Bilim. Temsilci 2020, 10, 13581. [CrossRef]
65. Becattini, S.; Littmann, Acil Servis; Seok, R.; Amoretti, L.; Fontana, E.; Wright, R.; Gjonbalaj, M.; Leiner, IM; Plitas, G.; Hohl,TM; ve ark. Geçici mikrobiyota tükenmesi yoluyla mukozal bağışıklığın arttırılması. Nat. İletişim 2020, 11, 4475. [CrossRef]
66. De Wit, J.; Souwer, Y.; Jorritsma, T.; Klaasse Bos, H.; ten Brinke, A.; Neefjes, J.; van Ham, SM Antijene özgü B hücreleri, çapraz sunum yoluyla fagositozlu Salmonella'ya karşı etkili bir sitotoksik T hücresi tepkisini yeniden etkinleştirir. PLoS ONE 2010, 5, e13016. [CrossRef] [PubMed]
67. Schnell, A.; Huang, L.; Şarkıcı, M.; Singaraju, A.; Barilla, RM; Regan, BML; Bollhagen, A.; Thakore, PI; Dionne, D.; Delorey,TM; ve ark. Kök benzeri bağırsak Th17 hücreleri, otoimmünite sırasında patojenik efektör T hücrelerine yol açar. Hücre 2021, 184, 6281–6298.e23. [ÇaprazRef]
68. Omenetti, S.; Bussi, C.; Metidji, A.; Iseppon, A.; Lee, S.; Tolaini, M.; Li, Y.; Kelly, G.; Chakravarty, P.; Shoaie, S.; ve ark. Bağırsak, İşlevsel Olarak Farklı Homeostatik Doku Yerleşik ve İnflamatuar Th17 Hücrelerini Barındırır. Bağışıklık 2019, 51, 77–89. [CrossRef] 69. Ivanov, II; Atarashi, K.; Manel, N.; Brodie, EL; Şima, T.; Karaöz, U.; Wei, D.; Goldfarb, KC; Santee, CA; Lynch, SV; ve ark. Bağırsak Th17 hücrelerinin bölümlenmiş filamentli bakteriler tarafından uyarılması. Hücre 2009, 139, 485–498. [ÇaprazRef]
70.Tan, TG; Şefik, E.; Geva-Zatorsky, N.; Kua, L.; Naskar, D.; Teng, F.; Pasman, L.; Ortiz-Lopez, A.; Jupp, R.; Wu, HJ; ve ark. İnsan bağırsağından tek başına farelerde bağırsak Th17 hücrelerini indükleyebilen simbiyont bakteri türlerinin belirlenmesi. Proc. Natl. Acad. Bilim. ABD 2016, 113, E8141–E8150. [ÇaprazRef]
71. Sano, T.; Kageyama, T.; Fang, V.; Kedmi, R.; Martinez, CS; Talbot, J.; Chen, A.; Cabrera, I.; Gorshko, O.; Kurakake, R.; ve ark. Lenf düğümlerinin boşaltılmasında bağırsak mikrobiyotasının neden olduğu Th17 hücre farklılaşması için yedek sitokin gereksinimi. Hücre Temsilcisi 2021, 36, 109608. [CrossRef]
72. Ütüler, EE; Cortes Gomez, E.; Andersen, VL; Lau, JTY Bakteriyel kolonizasyon ve TH17 bağışıklığı, yenidoğan farelerde bağırsak sialilasyonuyla şekillenir. Glikobiyoloji 2022, 32, 414–428. [CrossRef] [PubMed]
73.Alexander, M.; Ang, QY; Nayak, RR; Bustion, AE; Sandy, M.; Zhang, B.; Upadhyay, V.; Pollard, KS; Lynch, SV; Turnbaugh, PJ İnsan bağırsak bakteriyel metabolizması Th17 aktivasyonunu ve koliti tetikler. Hücre Konağı Mikrobu 2022, 30, 17–30. [CrossRef] [PubMed]
74.Brennan, Kaliforniya; Kil, SL; Lavoie, SL; Bae, S.; Lang, JK; Fonseca-Pereira, D.; Rosinski, KG; Ou, N.; Glickman, JN; Garrett'a göre, WS Fusobacterium nucleatum, IL-17 ifadesinin metabolit reseptörüne bağımlı modülasyonu yoluyla proinflamatuar bir bağırsak mikro ortamını harekete geçirir. Bağırsak Mikropları 2021, 13, 1987780. [CrossRef] [PubMed]
75. Malchow, S.; Leventhal, DS; Lee, V.; Nishi, S.; Socci, ND; Savage, PA Aire, Otoreaktif T Hücrelerini Düzenleyici T Hücresi Soyuna Yönlendirerek Bağışıklık Toleransını Güçlendiriyor. Bağışıklık 2016, 44, 1102–1113. [ÇaprazRef]
76.Yang, S.; Fujikado, N.; Kolodin, D.; Benoist, C.; Mathis, D. Bağışıklık toleransı. Yaşamın erken döneminde üretilen düzenleyici T hücreleri, öz toleransın sürdürülmesinde belirgin bir rol oynar. Bilim 2015, 348, 589–594. [ÇaprazRef]