

Kök Hücre Homeostazı ve Yaşlanma Sırasında Mitokondriyal-endoplazmik Retikulum Karışmasının Dinamik Düzenlemesi
Jul 14, 2023
Hücresel terapi, geniş bir hastalık yelpazesini iyileştirmek için derin terapötik potansiyel uygular. Yetişkin kök hücreler, soy seçimi ile kendi kendini yenilemeyi dengeleyerek sürekli doku homeostatik bakımı için gerekli olan in vivo olarak belirli bir dinamik niş içinde bulunur. Bu arada, yetişkin kök hücreler multipotent veya unipotent olabilir ve memelilerde in vivo olarak hem sakin hem de aktif olarak bölünen durumlarda bulunurlar; bu hücreler, mitokondriyal solunumdaki değişiklikler gibi mitokondri aracılı mekanizmalar yoluyla biyofiziksel işaretlere yanıt olarak birbirlerine geçebilirler. ve metabolizma. Genel olarak kök hücreler, yerel mikroçevrenin immünomodülasyonu, fonksiyonel hücrelere farklılaşma, parakrin salgılama yoluyla hücre "güçlendirmesi", immünoregülasyon ve hücreler arası mitokondriyal transfer dahil olmak üzere çeşitli mekanizmalar aracılığıyla dokuya özgü homing sonrasında doku onarımını kolaylaştırır. İlginç bir şekilde, in vivo farklı mikro ortamlar nedeniyle farklı fonksiyonel özelliklere sahip farklı doku kaynaklı yetişkin kök hücreler arasında hücre kaynağına özgü özelliklerin yanı sıra farklı doku kaynaklı kök hücre kaynaklı hücre dışı araçlarda, mitokondriyal farklı fonksiyonel özelliklere sahip olduğu bildirilmiştir. metabolizma ve mitokondriyal transfer kapasitesi. Burada, kök hücre homeostazı ve yaşlanması sırasında mitokondriyal dinamiklerin rollerine ve soya özgü farklılaşmaya ilişkin mevcut anlayışı özetledik. Ayrıca, farklı kaynaktan türetilen kök hücreler arasındaki potansiyel benzersiz mitokondriyal moleküler imza özellikleri ve kök hücre yaşlanması ile mitokondri-endoplazmik retikulum (ER) iletişimi arasındaki potansiyel ilişkilerin yanı sıra yaşlanma karşıtı müdahale ve sağlıklı yaşlanma için potansiyel yeni stratejiler önerdik.
Cistanche glikozidi ayrıca kalp ve karaciğer dokularında SOD aktivitesini artırabilir ve her dokudaki lipofuscin ve MDA içeriğini önemli ölçüde azaltabilir, çeşitli reaktif oksijen radikallerini (OH-, H₂O₂, vb.) etkili bir şekilde temizleyerek ve neden olduğu DNA hasarına karşı koruma sağlayabilir. OH radikalleri tarafından. Cistanche feniletanoid glikozitler, serbest radikalleri güçlü bir şekilde süpürme yeteneğine, C vitamininden daha yüksek bir indirgeme kabiliyetine sahiptir, sperm süspansiyonunda SOD aktivitesini geliştirir, MDA içeriğini azaltır ve sperm zarı işlevi üzerinde belirli bir koruyucu etkiye sahiptir. Cistanche polisakkaritleri, D-galaktozun neden olduğu deneysel olarak yaşlanmış farelerin eritrositlerinde ve akciğer dokularında SOD ve GSH-Px aktivitesini artırabilir, ayrıca akciğer ve plazmadaki MDA ve kollajen içeriğini azaltabilir ve elastin içeriğini artırabilir. DPPH üzerinde iyi bir temizleme etkisi, yaşlanmış farelerde hipoksi süresini uzatır, serumdaki SOD aktivitesini geliştirir ve deneysel olarak yaşlanmış farelerde akciğerin fizyolojik dejenerasyonunu geciktirir. Hücresel morfolojik dejenerasyonla, deneyler Cistanche'nin iyi antioksidan yeteneğe sahip olduğunu göstermiştir ve cilt yaşlanması hastalıklarını önleyen ve tedavi eden bir ilaç olma potansiyeline sahiptir. Aynı zamanda, Cistanche'deki ekinacoside, DPPH serbest radikallerini temizleme konusunda önemli bir yeteneğe sahiptir ve reaktif oksijen türlerini temizleme ve serbest radikal kaynaklı kollajen bozulmasını önleme yeteneğine sahiptir ve ayrıca timin serbest radikal anyon hasarı üzerinde iyi bir onarım etkisine sahiptir.
Cistanche Tubulosa Eki'ne tıklayın
【Daha fazla bilgi için:george.deng@wecistanche.com / WhatApp:86 13632399501】
GERÇEKLER
● Kök hücre nişi, kök hücre homeostazının ve mitokondriyal füzyon ve fisyon dinamiklerinin düzenlenmesi yoluyla, kendi kendini yenileme ve soya özgü farklılaşmanın yanı sıra kök hücre sessizliği ve aktivasyonunu dengeleyerek hücre-kader kararları için esastır.
● Periferik kanda dolaşan hücresiz mitokondriler çeşitli patofizyolojik süreçlerde yer alabilir.
● Mitokondriler, hücresel sinyallere ve farklılaşma durumlarına yanıt olarak morfolojilerini değiştiren oldukça dinamik organellerdir.
● Mitokondri–endoplazmik retikulum karışması, yaşlanmanın ilerlemesinde rol oynar.
● Yaşlı ve genç mitokondrilerin asimetrik olarak sınıflandırılması ve dağılımı, kök hücrelerin köklük düzenlemesinde kritik bir rol oynar.
AÇIK SORULAR
●Mitokondriyal işlevsel düşüş, yaşa bağlı hücre altı yerleşimi ve mitokondrinin yeniden dağılımı yoluyla kök hücrelerin yaşlanma ilerlemesinde yer alıyor ve böylece kök hücre özelliklerinin kaybına neden oluyor mu?
● Fonksiyonel kök hücrelerden hasarlı dokuların enerjik ve genç mitokondri hücrelerinin paylaşımı ve alınması yoluyla hücre bazlı terapilerde mitokondriyal bağlantılar ve transferler yer alıyor mu?
● Endoplazmik retikulum (ER) stresi ve hücre farklılaşmasının eşleşmesi, mitokondriyal-ER karışması arasındaki etkileşimle ilişkili midir?
● Uzun süreli veya aşırı endoplazmik retikulum (ER) stresini mitokondriyal fonksiyonun ve kök hücre nişinin düzenlenmesi yoluyla adaptif ER stresine çevirerek kök hücre yaşlanmasını hafifletmek veya yaşlanan kök hücrelerin gençleşmesini sağlamak mümkün müdür?
GİRİİŞ
Kök hücre bazlı tedaviler, geniş bir hastalık yelpazesini iyileştirmek için derin terapötik potansiyele sahiptir [1, 2]. Yetişkin kök hücreler, soy seçimi ile kendi kendini yenilemeyi dengeleyerek sürekli doku homeostatik bakımı için gerekli olan belirli bir dinamik niş içinde bulunur [3, 4]. Bu arada, yetişkin kök hücreler multipotent veya unipotent olabilir ve memelilerde in vivo olarak hem sakin hem de aktif olarak bölünen durumlarda bulunur; bu hücreler, değişiklikler gibi mitokondri aracılı mekanizmalar yoluyla çeşitli içsel veya dışsal sinyallere yanıt olarak birbirlerine geçebilirler. mitokondriyal solunum ve metabolizmada [4-9]. Ek olarak, endoplazmik retikulum (ER) ve mitokondrinin birlikte görülmesi ve bunların dinamik ara bağlantıları ve karışması, füzyon ve fisyonda mitokondriyal homeostaz, otofaji ve enflamasyon oluşumu dahil olmak üzere bir dizi hücresel süreçte yer alır [10, 11].
Belirli hücresel süreçlerin uzamsal ve zamansal dönüşümünün analizi için tek hücreli transkriptomikler gibi son yıllarda ortaya çıkan yeni teknikler, kök hücre nişi, kök hücre aktivasyonu ve mobilizasyonu, soy içinde kök hücre bakımında dinamik gen düzenleme anlayışımızı ilerletmeyi sağlayabilir. spesifikasyon, yetişkin kök hücrelerde dokuya özgü moleküler fenotipler, ana hücre tiplerinin tanımlanması ve bunların lokalizasyonunun yanı sıra anahtar büyüme faktörleri ve sitokinlerin hücresel ve mekansal kaynakları [12-18].
Mitokondri çeşitliliği ve heterojenliği
Mitokondri, kök hücrelerin pluripotensinin ve farklılaşma kapasitesinin sürdürülmesi için çok önemli olan fisyon ve füzyon yoluyla sürekli morfolojik dinamik değişikliklere uğrayan bir ağda bulunan karmaşık organellerdir [19-24]. Mitokondri genellikle, mitokondriyal fonksiyon için önemli olan büyük GTPazlar Drp1, Mfn1, Mfn2 ve Opa1 (füzyon) tarafından kontrol edilen fisyon ve füzyon olayları yoluyla sürekli morfolojik dinamik değişikliklere uğrar ve dengesizlikleri hücre disfonksiyonuna ve çeşitli hastalıklara neden olur [25–28 ]. Mitokondriyal morfoloji ve dinamiklerdeki değişikliklerin eşlik ettiği mezenkimal kök hücre farklılaşması sırasında hücre soyu taahhüdü için metabolik değişiklikler gereklidir [21, 22, 29]. Mezenkimal kök hücre mitokondrisinin belirgin morfolojik özellikleri, farklı soy spesifikasyon durumları sırasında ortaya çıkar (Şekil 1).
Genel olarak kök hücreler, yerel mikroçevrenin immünomodülasyonu, fonksiyonel hücrelere farklılaşma [30, 31], parakrin salgılama yoluyla hücre "güçlendirmesi" [32-34], immünomodülasyon [ 35, 36] ve hücreler arası mitokondriyal transfer [37-40]. Son çalışmalar, osteosit-dendritik ağ içinde hücreler arası mitokondriyal aktarımı göstermiştir [41]. Şaşırtıcı bir şekilde, birlikte kültürlenmiş olgun kondrositler ve ex vivo kök hücreler arasında potansiyel mitokondriyal bağlantılar ve iletişimler de gözlendi (Şekil 2A). Bu arada, farklı fonksiyonel özelliklere [5, 42] sahip farklı doku kaynaklı yetişkin kök hücreler arasında hücre kaynağına özgü özelliklerin yanı sıra farklı doku kaynaklı kök hücre kaynaklı hücre dışı araçlarda farklı fonksiyonel özelliklere sahip [43, 44] bildirilmiştir. , mitokondriyal metabolizma [45] ve mitokondriyal transfer kapasitesi [46]. Çarpıcı bir şekilde, son araştırmalar periferik kanda dolaşan hücresiz mitokondri varlığını bildirmiştir, bu da mevcut mitokondri formlarının çeşitliliğini düşündürmektedir [47, 48]. Bu nedenle, kök hücrelerin heterojenliği ve çeşitli mitokondriyal DNA (mt-DNA) popülasyonları nedeniyle, farklı doku kaynaklı kök hücreler arasında farklı mitokondriyal gen ekspresyon modelleri mevcut olabilir [48-55]. Eşzamanlı olarak, kopyalanan mt-DNA nükleoidlerinin görselleştirilmesi, ER ve mitokondri arasındaki fiziksel bağlantıyı önermiştir (Şekil 2B) [56-58]. Bu nedenle, mt-DNA'nın hücreler içinde manipülasyonu, mitokondriyal hastalıkları tedavi etmek için terapötik müdahalelerin geliştirilmesi için güçlü bir yaklaşımı temsil edebilir.

Kök hücre kaderi üzerinde mitokondriyal metabolik düzenleme
Genellikle kök hücrelerin doku gelişimini ve doku onarımını beslediğine ve bu aktivitelerin yerel kök hücre mikroçevresi veya nişi tarafından kontrol edildiğine inanılır. Yerleşik kök/progenitör hücrelerin oldukça heterojen popülasyonlarının yetişkin organ ve dokularında ikamet ettiği gösterilmiştir [55, 59-62]. Hem gelişim sırasında hem de yaşam boyunca doku homeostazı sırasında kök hücre işlevi için kendini yenileme ve farklılaşma arasında uygun bir denge gereklidir [63]. Kararlı bir durumda, yetişkin kök hücreler bir niş içindeki hareketsiz hücrelerdir. Mitokondriyal dinamik ilişkili sinyalleşme gibi hem hücre içi hem de dışsal sinyal ağlarının, kök hücrelerin kendi kendini yenilemesine ve farklılaşmasına ince ayar yaptığı ve doku homeostazı ve doku onarımında yer aldığı bildirilmiştir [64, 65].
Özellikle, mitokondriyal metabolizma ve mitokondriyal solunum zinciri gibi mitokondriyal plastisite, hücre kaderi kararları ve kök hücrelerin işlevi için hayati öneme sahiptir [66-69]. Mitokondrinin metabolik değişimi, kök hücre aktivasyonu ve hücre döngüsü aktivitesi için gereklidir [70]. Bu arada, biriken kanıtlar, mitokondriyal işlev bozukluğu ile yaşlanma ile ilişkili ana fenotipler arasında nedensel bir ilişki olduğunu öne sürdü. Yaşlanan organizmalarda doku ve organların kendi kendini yenilemesi, asimetrik olarak kök hücre özelliklerini koruyan bir yavru hücreye ve belirli bir doku tipine farklılaşan başka bir yavru hücreye bölünme gibi alışılmadık bir yeteneğe sahip kök hücreler gerektirir. Ayrıca, mitokondrilerin mitoz sırasında mikrotübüllerden salınmaları üzerine pasif olarak dağıldığı bildirilmiştir [71]. Daha da önemlisi, genç ve yaşlı mitokondrilerin hücre altı lokalizasyonu ve dağılımı, asimetrik hücre bölünmeleri sırasında soy kök hücrelerdeki köklük özelliklerini belirler. Daha sonra, bir kök hücre doğasını koruyan yavru hücreler, genç mitokondriyi miras alırken, daha yaşlı mitokondri daha farklılaşmış hücreler tarafından miras alınır [72]. Yaşlı mitokondri birikimi, hücre yaşlanmasına ve hücresel fonksiyonel düşüşe yol açacaktır [70, 73]. Mohrin ve ark. [74], kök hücrelerde hücresel enerji metabolizması ve proliferasyon ile bağlantılı olan mitokondriyal katlanmamış protein yanıtının (UPRmt) düzenleyici bir dalını daha da aydınlatmıştır. Mitokondriyal protein katlama stresi, hücre döngüsünü düzenleyen bir metabolik kontrol noktasını tetiklerken, bu yolun deregülasyonu kök hücre sessizliğine müdahale etti ve rejeneratif potansiyeli tehlikeye attı [74]. Bu nedenle mitokondriyal fonksiyon, kök hücrelerin rejeneratif potansiyelinin önemli bir belirleyicisini temsil edebilir.

Kök hücreler, çeşitli hücre tiplerine çoklu farklılaşma potansiyeline sahiptir, bu da onları tıbbi olarak çeşitli hastalık ve yaralanmaların tedavisi için uygun hale getirir. Bununla birlikte, kliniklerde kök hücre tedavisinin büyük bir engeli, yani tamamen işlevsel ve özelleşmiş terminal olarak farklılaşmış hücreler yaratmanın sınırlı etkinliği olmaya devam etmektedir. Mitokondriyal dinamikler, kök hücrelerin hücre kaderini belirlemesi için çok önemlidir [75, 76]. Daha da önemlisi, farklı hücre durumları, özelleşmiş işlevleri desteklemek için özel metabolik talepler gerektirir [77]. Bu nedenle, verimli spesifik soy taahhüdü için verimli mitokondriyal oksidatif metabolizma ve dinamikler gereklidir [21, 78-83].
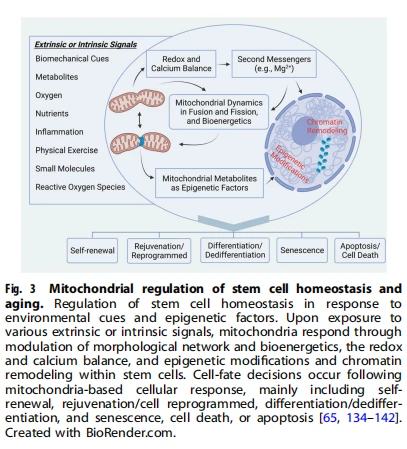
Çarpıcı bir şekilde, son araştırmalar, kendi kendini yeme süreci olarak da bilinen embriyonik kök hücrelerde şaperon aracılı otofaji ve ilgili bir metabolitin, hasarlı doku ve organların rejenerasyonu için umut verici yeni terapötikler olarak ortaya çıktığını bildirmektedir [84]. Eşzamanlı olarak, biriken kanıtlar mitokondriyal metabolizma ile kök hücre farklılaşması arasında sıkı ilişkiler olduğunu göstermiştir [85, 86]. Çalışmalar, düşük ve yüksek dinlenme mitokondriyal membran potansiyeli (ΔΨmL ve ΔΨmH) için sıralanan fare embriyonik kök hücrelerinin, pluripotens belirteçlerinin morfolojisi ve ekspresyon seviyeleri açısından ayırt edilemezken, metabolik hızlarda belirgin bir şekilde farklılık gösterdiğini göstermiştir. parametreler ve kök hücre kaderi, kök hücre tedavisinin yeni zenginleştirme stratejileri ve terapötik yaklaşımları için ipuçları sağlayabilir [87, 88]. Ayrıca, yakın zamanda yapılan bir çalışma, hücre içi Mg2 plus'ın laktat mobilizasyonunu gösterdi; bu, mitokondriyal Mg2 artı majör metabolik geri besleme devreleri ve mitokondriyal biyoenerjetik ile taşıma arasındaki potansiyel bağlantıları gösterir (Şekil 3) [89].
Mitokondriyal fonksiyonlar ve yaşlanma arasındaki korelasyonlar
Yetişkin kök hücreler, doku homeostazı ve rejenerasyonu için gereklidir, ancak yaşlanma sırasında yaşlanmaya karşı hassastır [90-92], buna yetişkin kök hücrelerin etrafındaki yaşlanan mikro ortamlar eşlik eder [93, 94]. Memeli organizmalarda yaşlanmanın ana ayırt edici özellikleri arasında genomik istikrarsızlık, telomer aşınması, epigenetik değişiklikler, proteostaz kaybı, düzensiz besin algılama, mitokondriyal işlev bozukluğu, hücresel yaşlanma, kök hücre tükenmesi ve değişmiş hücreler arası iletişim yer alır [95]. Yaşlanan doku ve organların dejenerasyonu veya disfonksiyonu, erişkin kök hücrelerin bozulmasına bağlanır [95-97], bu bozuk mitokondriyal dinamikler ve azalmış mitokondriyal fonksiyonlardan kaynaklanabilir [98-100]. Mitokondriyal aktivite ve metabolizma, kök hücre kaderinin spesifikasyonu için önemli belirleyicilerdir [87, 101].
Çalışmalar, kas yetişkin kök hücre yaşlanmasını modüle etmek için önemli bir anahtar olarak mitokondriyal aktivite üzerinde hücresel nikotinamid adenin dinükleotidin oksitlenmiş formunun önemini göstermiştir [102, 103]. Mitokondriyal proteinlerin küresel asetilasyon manzarasını düzenleyen ve oksidatif stresi azaltan bir memeli sirtuini olan SIRT3, yaşlanma sırasında baskılanır. Ek olarak, yaşlı hematopoietik kök hücrelerde (HSC'ler) SIRT3'ün yukarı regülasyonu, HSC'lerin rejeneratif kapasitesini iyileştirmiştir [104]. Ayrıca, saflaştırılmış bir Tie2 artı HSC popülasyonunun kendini yenilemesinin sürdürülmesi mitokondriyal temizliğe dayanır [105]. Daha ileri çalışmalar, hücresel enerji metabolizması ve çoğalmasına bağlanan SIRT7 ve NRF1 arasındaki etkileşime aracılık eden UPRmt'nin düzenleyici bir dalını tanımlamıştır. HSC yaşlanması için tersine çevrilebilir bir ana faktör olarak bir UPRm aracılı metabolik kontrol noktasının kuralsızlaştırılması [74]. Ayrıca, sistemik kronik inflamasyonun, kök hücre yaşlanması sürecinde kritik bir şekilde yer alan, yaşlanmanın önemli bir özelliği olduğu bildirilmiştir [106-108]. Yakın zamanda yapılan bir çalışma, HSC yaşlanması sırasında fonksiyonel düşüşün geri dönüşümlü bir itici gücü olarak NLRP3 iltihaplanmasının mitokondriyal stresle başlatılan anormal aktivasyonunu ortaya çıkardı [109]. Bu arada, çalışmalar, PTPMT1'in (bir PTEN benzeri mitokondriyal fosfataz) HSC'lerin kendini yenilemesi ve farklılaşmasının metabolik regülasyonundaki önemli rollerini belgelemiştir [110].
Mitokondri-ER karışması ve yaşlanma
Özellikle, hayatta kalan ER stresinin, kondrodisplazinin patofizyolojisi sırasında adaptif katlanmamış protein tepkisi (UPR) aracılığıyla hayatta kalmayı ve iyileşmeyi kolaylaştıran, değiştirilmiş kondrosit farklılaşması ve işleyişiyle birleştiği gösterilmiştir [111, 112]. Ayrıca, araştırmalar stres adaptasyonu ile yaşlanma süreci arasında yakın bir bağlantı olduğunu ileri sürmüştür [113]. Stres tepkileri ve yaşlanma süreci, başlangıçta insülin/insülin benzeri büyüme faktörü de dahil olmak üzere yaşlanma sürecinin ilerlemesinde rol oynayan çeşitli moleküler yolların gösterildiği model organizmalardaki [114, 115] çalışmalardan kaynaklanan ortak özellikleri ve mekanizmaları paylaşabilir. , sirtuinler, rapamisin hedefleri (TOR'ler) ve AMP ile aktive olan kinaz. Bu nedenle, stres savunma programlarının özünde uyarılması ve sonuçta ortaya çıkan uyum, yaşam beklentisini artırmak için potansiyel bir strateji haline gelebilir [114]. Genellikle, hafif ER stresi bir yandan adaptif UPR'yi aktive eder. Adaptif UPR, son zamanlarda inositol gerektiren enzim 1 /X-box bağlayıcı protein 1 sinyali yoluyla hematopoietik ve prelösemik HSC'lerin kendi kendini yenilemesini koruduğu bildirilen hücresel strese yanıt olarak stresin hafifletilmesine yardımcı olur [116]. Öte yandan, belirli bir ER hasarının ötesinde, yani uzun süreli UPR yanıtı, apoptotik yolları tetikleyecektir (Şekil 4) [117-120]. Çalışmalar, memeli TOR gibi mitokondriyal-ER karışmasının düzenlenmesinde yer alan proteinlerin tükenmesinin, artan apoptoz, otofaji ve hücresel işlev bozukluğuna yol açacağını ileri sürmüştür [121, 122]. Aksine, hücrelerde yapay olarak artan ER-mitokondri temasları, hücre canlılığını eski haline getirecektir [89, 119, 123, 124]. Çalışmalar ayrıca, çevresel stres koşullarına [127] hücresel adaptasyonda önemli roller oynayabilen mitokondriyal türevli bölmelerin [125-127] biyogenezinde ER-mitokondri temaslarının kritik rollerini tanımlamıştır.
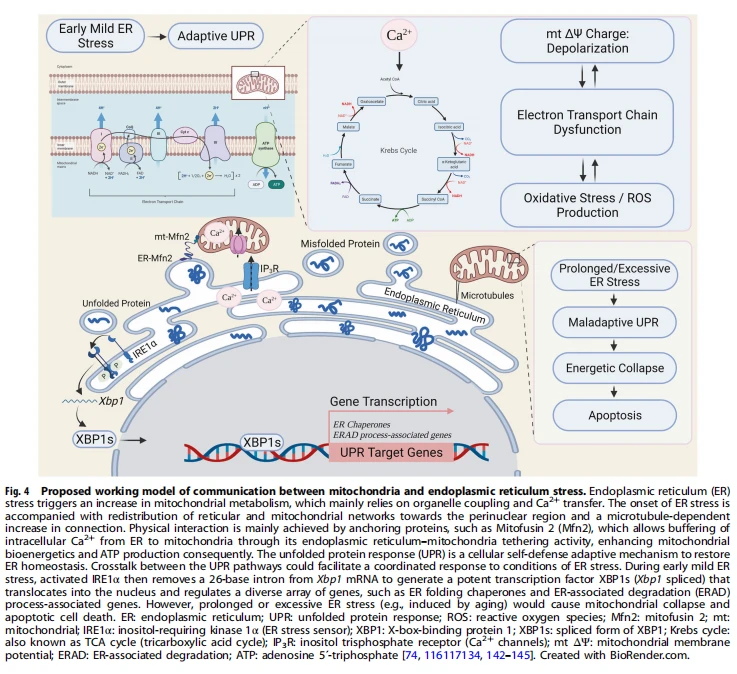
Önemli olarak, yaşlanma, sonuç olarak mitokondriyal disfonksiyonun eşlik ettiği, uzun süreli ER stresinin artmasına neden olan ana faktörlerden biridir [128]. Bu nedenle, ER stresinin zayıflaması, yaşlanan organizmalarda mitokondriyal fonksiyonun iyileştirilmesi ve restorasyonu için potansiyel bir yaklaşımdır. Ek olarak, araştırmalar, mitokondrinin uzaysal yeniden organizasyonu ile artan ATP seviyeleri, oksijen tüketimi, indirgeyici güç ve artan mitokondriyal Ca2 artı alımı arasındaki ilişkiyi önermiştir [129, 130]. Bununla birlikte, organellerin ayrılması veya Ca2'nin bloke edilmesi artı transfer, metabolik yanıtı bozarak hücreleri ER stresine karşı daha savunmasız hale getirdi [129, 131]. Sonuç olarak, ER stresi, önemli ölçüde organel eşleşmesine ve Ca2 artı transferine bağlı olan mitokondriyal metabolizmada erken bir artışı indükler; Yaşlanma, artan ER stresine ve mitokondriyal disfonksiyona neden olan ana faktörlerden biri olduğundan, ER stresinin zayıflaması, yaşlanmayı geciktirmeye yardımcı olur [128]. Bu nedenle, reaktif oksijen türlerinin birikimini bloke etmek ve ER stresinin hafifletilmesi yoluyla hücre sağkalımını teşvik etmek için potansiyel bir terapötik anti-aging yaklaşımı haline gelebilecek elektron taşıma zincirinin gelişmiş etkinliği ile ilişkili gelişmiş mitokondriyal biyogenez bildirilmiştir [133].
SONUÇLAR
Toplamda, mitokondriyal plastisite, kök hücrelerin aktivite ve fonksiyonlarının düzenlenmesinde merkezi bir rol oynar. İçsel ve dışsal sinyal ağları, mitokondriyal fonksiyondaki dinamik düzenlemeden ve nihai hücre kaderi kararları için içsel ve dışsal sinyallere adaptasyondan sorumludur. Yaşlanan mikro ortamlar, ER stresi ve hücreler arası ve hücre içi mitokondriyal dinamikler arasındaki etkileşim ve karışma, kök hücre yaşlanmasının ve işlevsel olarak azalan doku ve organların ilerlemesinde rol oynar. Mitokondri-ER iletişimi ile ilişkili kök hücre yaşlanması ve rejeneratif niş içindeki kromatin durumlarındaki ve mitokondriyal dinamiklerdeki değişiklikler hakkında daha kapsamlı araştırmalar, yalnızca mitokondri-ER- hedefleyerek yaşa bağlı bozuklukların tedavisi için yeni farmasötik hedeflerin geliştirilmesini hızlandırmakla kalmayacaktır. ilişkili sinyal yolları değil, aynı zamanda doku rejenerasyonu sırasında mitokondri aracılı kök hücre aktivasyonuna ilişkin yeni bilgiler sağlar. Farklı kaynaktan türetilen kök hücreler arasındaki spesifik mitokondriyal moleküler imzaların tanımlanması, kök hücre biyolojisi anlayışımızı ilerletebilir ve sağlıklı uzun ömür ve hücresel tedavinin iyileştirilmiş terapötik sonuçları için yeni stratejilere ışık tutabilir.

REFERANSLAR
1. Kablo J, Fuchs E, Weissman I, Jasper H, Glass D, Rando T, et al. Yetişkin kök hücreler ve rejeneratif tıp — bir sempozyum raporu. Ann. NY Acad. bilim 2020;1462:27.
2. Yamanaka S. Pluripotent kök hücre bazlı hücre tedavisi-vaat ve zorluklar. Hücre Kök Hücre. 2020;27:523–31.
3. Adam RC, Yang H, Rockowitz S, Larsen SB, Nikolova M, Oristian DS, et al. Öncü faktörler, kök hücre plastisitesi ve soy seçiminde süper güçlendirici dinamikleri yönetir. Doğa. 2015;521:366–70.
4. Li L, Clevers H. Memelilerde hareketsiz ve aktif yetişkin kök hücrelerin bir arada bulunması. Bilim. 2010;327:542–5.
5. Visvader JE, Clevers H. Kök hücre hiyerarşilerinin dokuya özgü tasarımları. Nat. Hücre Biol. 2016;18:349–55.
6. Bond AM, Ming GL, Song H. Yetişkin memeli nöral kök hücreleri ve nörojenez: elli yıl sonra. Hücre Kök Hücre. 2015;17:385–95.
7. Ransom RC, Carter AC, Salhotra A, Leavitt T, Marecic O, Murphy MP, et al. Mekano-duyarlı kök hücreler, çene rejenerasyonunda nöral krest kaderini kazanır. Doğa. 2018;563:514–21.
8. Zheng M, Kim SK, Joe Y, Back SH, Cho HR, Kim HP, et al. Protein kinaz RNA benzeri endoplazmik retikulum kinaz tarafından endoplazmik retikulum stresinin algılanması, adaptif mitokondriyal DNA biyogenezini ve heme oksijenaz-1/karbon monoksit aktivitesi yoluyla hücre hayatta kalmasını destekler. FASEB J. 2012;26:2558–68.
9. Feng J, Lu S, Ding Y, Zheng M, Wang X. Homosistein, endoplazmik retikulum-mitokondri eşleşmesini güçlendirerek ve mitokondriyal solunumu artırarak T hücrelerini aktive eder. Protein Hücresi. 2016;7:391–402.
10. Marchi S, Patergnani S, Pinton P. Endoplazmik retikulum-mitokondri bağlantısı: tek dokunuş, çoklu fonksiyonlar. Biochim Biyofiz. Açta. 2014;1837:461–9.
11. Genovese I, Vezzani B, Danese A, Modesti L, Vitto VAM, Corazzi V, et al. Mitokondri, kanser hücresi kaderi için karar vericiler olarak: sinyal yollarından terapötik stratejilere. Hücre Kalsiyumu. 2020;92:102308.
12. Cheng JB, Sedgewick AJ, Finnegan AI, Harirchian P, Lee J, Kwon S ve ark. Tek hücre çözünürlüğünde normal ve iltihaplı insan epidermisinin transkripsiyonel programlaması. Hücre Temsilcisi 2018;25:871–83.
13. Feng C, Chan WCW, Lam Y, Wang X, Chen P, Niu B ve diğerleri. Lgr5 ve Col22a1, jüvenil artiküler kondrositlere doğru soydaki progenitör hücreleri işaretler. Kök Hücre Temsilcisi 2019;13:713–29.
14. Pallafacchina G, Francois S, Regnault B, Czarny B, Dive V, Cumano A ve diğerleri. Nişinde yetişkin bir dokuya özgü kök hücre: in vivo sakin ve aktif kas uydu hücrelerinin bir gen profil analizi. Kök Hücre Arş. 2010;4:77–91.
15. Hussenet T, Dembele D, Martinet N, Vignaud JM, du Manoir S. Yetişkin bir dokuya özgü kök hücre moleküler fenotipi, epitelyal kanser kök hücrelerinde aktive edilir ve hasta sonucuyla ilişkilendirilir. Hücre döngüsü. 2010;9:321–7.
16. Kök hücre homeostazında Liang R, Ghaffari S. Mitokondri ve FOXO3, hematopoietik kök hücre kaderinin belirlenmesine bir pencere. J. Bioenerg. Biyomembr. 2017;49:343–6.
17. Baccin C, Al-Sabah J, Velten L, Helbling PM, Grunschlager F, HernandezMalmierca P, et al. Kombine tek hücreli ve uzaysal transkriptomikler, moleküler, hücresel ve mekansal kemik iliği niş organizasyonunu ortaya çıkarır. Nat. Hücre Biol. 2020;22:38–48.
18. Finnegan A, Cho RJ, Luu A, Harirchian P, Lee J, Cheng JB, et al. Tek hücreli transkriptomikler, keratinosit farklılaşma düzenleyicilerinin mekansal ve zamansal cirosunu ortaya çıkarır. Ön Gene. 2019;10:775.
19. Xu X, Duan S, Yi F, Ocampo A, Liu GH, Izpisua Belmonte JC. Pluripotent kök hücrelerde mitokondriyal düzenleme. Hücre Metab. 2013;18:325–32.
20. Okçu SL. İnsan hastalıklarında mitokondriyal dinamikler-mitokondriyal fisyon ve füzyon. İngilizce J.Med. 2013;369:2236–51.
21. Forni MF, Peloggia J, Trudeau K, Shirihai O, Kowaltowski AJ. Murin mezenkimal kök hücrenin farklılaşmaya bağlılığı mitokondriyal dinamikler tarafından düzenlenir. Kök hücreler. 2016;34:743–55.
22. Lin W, Xu L, Pan Q, Lin S, Feng L, Wang B ve diğerleri. Lgr5-fazla eksprese eden mezenkimal kök hücreler, Wnt/ERK sinyal yollarının ve mitokondriyal dinamiklerin düzenlenmesi yoluyla kırık iyileşmesini artırır. FASEB J. 2019;33:8565–77.
23. Liu X, Weaver D, Shirihai O, Hajnoczky G. Mitokondriyal 'öp ve kaç': mitokondriyal hareketlilik ve füzyon-bölünme dinamikleri arasındaki etkileşim. EMBO J. 2009;28:3074–89.
24. Kasahara A, Cipolat S, Chen Y, Dorn GW, Scorrano L. Mitokondriyal füzyon, kalsinörin ve Notch sinyali yoluyla kardiyomiyosit farklılaşmasını yönlendirir. Bilim. 2013;342:734–7.
25. Wang X, Su B, Siedlak SL, Moreira PI, Fujioka H, Wang Y, et al. Amiloid-beta aşırı üretimi, mitokondriyal fisyon/füzyon proteinlerinin diferansiyel modülasyonu yoluyla anormal mitokondriyal dinamiklere neden olur. İşlem Natl Acad. bilim AMERİKA BİRLEŞİK DEVLETLERİ. 2008;105:19318–23.
26. Walter J, Bolognin S, Antony PMA, Nickels SL, Poovathingal SK, Salamanca L, et al. Parkinson hastalığı hastalarının nöral kök hücreleri, anormal mitokondriyal morfoloji ve işlevsellik sergiler. Kök Hücre Rep. 2019;12:878–89.
27. Korobova F, Ramabhadran V, Higgs HN. ER ile ilişkili formin INF2'nin aracılık ettiği mitokondriyal fisyonda aktine bağımlı bir adım. Bilim. 2013;339:464–7.
28. Angelova PR, Barilani M, Lovejoy C, Dossena M, Vigano M, Seresini A, et al. Parkinson mezenkimal kök hücrelerinde mitokondriyal disfonksiyon farklılaşmayı bozar. Redox Biol. 2018;14:474–84.
29. Guo J, Ren R, Yao X, Ye Y, Sun K, Lin J ve diğerleri. PKM2 osteogenezi baskılar ve beta-katenin sinyalini ve mitokondriyal füzyon ve fisyonu düzenleyerek adipogenezi kolaylaştırır. Yaşlanma (Albany NY). 2020;12:3976–92.
30. Gojo S, Gojo N, Takeda Y, Mori T, Abe H, Kyo S ve diğerleri. İzole yetişkin mezenkimal kök hücrelerin doğrudan enjeksiyonu ile in vivo kardiyovaskülojenez. Tecrübe. Hücre Res. 2003;288:51–9.
31. Su J, Guo L, Wu C. Mekanik tepkili bir PINCH-1-Notch2 etkileşimi, insan plasental mezenkimal kök hücrelerinin düz kas farklılaşmasını düzenler. Kök Hücreler 2021;39:650–68.
32. Mirotsou M, Zhang Z, Deb A, Zhang L, Gnecchi M, Noiseux N, et al. Salgılanan kıvrımlı ilişkili protein 2 (Sfrp2), miyokardiyal hayatta kalma ve onarıma aracılık eden anahtar Akt-mezenkimal kök hücre tarafından salınan parakrin faktördür. İşlem Natl Acad. bilim AMERİKA BİRLEŞİK DEVLETLERİ. 2007;104:1643–8.
33. Roefs MT, Sluijter JPG, Vader P. Doku onarımında hücre dışı vezikülle ilişkili proteinler. Trendler Hücre Biol. 2020;30:990–1013.
34. Hou Y, Lin W, Li Y, Sun Y, Liu Y, Chen C, et al. De-osteojenik-farklılaşmış mezenkimal kök hücreler, kırık iyileşmesini mir-92b ile hızlandırır. J. Ortop. çeviri 2021;27:25–32.
35. Akiyama K, Chen C, Wang D, Xu X, Qu C, Yamaza T ve ark. Mezenkimal kök hücre kaynaklı immünoregülasyon, FAS-ligand-/FAS-aracılı T-hücresi apoptozunu içerir. Hücre Kök Hücre. 2012;10:544–55.
36. Shi Y, Wang Y, Li Q, Liu K, Hou J, Shao C ve ark. Enflamatuar hastalıklarda mezenkimal kök ve stromal hücrelerin immün düzenleyici mekanizmaları. Nat. Rahip Nefrol. 2018;14:493–507.
37. Acquistapace A, Bru T, Lesault PF, Figeac F, Coudert AE, le Coz O, et al. İnsan mezenkimal kök hücreleri, kısmi hücre füzyonu ve mitokondri transferi yoluyla yetişkin kardiyomiyositlerini progenitör benzeri bir duruma doğru yeniden programlar. Kök hücreler. 2011;29:812–24.
38. Ahmad T, Mukherjee S, Pattnaik B, Kumar M, Singh S, Rehman R, et al. Miro1, hücreler arası mitokondriyal taşımayı düzenler ve mezenkimal kök hücre kurtarma etkinliğini artırır. EMBO J. 2014;33:994–1010.
39. Paliwal S, Chaudhuri R, Agrawal A, Mohanty S. Mitokondriyal transfer yoluyla mezenkimal kök hücrelerin rejeneratif yetenekleri. J. Biomed. bilim 2018;25:31.
40. Luz-Crawford P, Hernandez J, Djouad F, Luque-Campos N, Caicedo A, CarrereKremer S, et al. Th17 hücrelerinin mezenkimal kök hücre baskısı, mitokondriyal transfer ile tetiklenir. Kök Hücre Arş. orada. 2019;10:232.
41. Gao J, Qin A, Liu D, Ruan R, Wang Q, Yuan J ve diğerleri. Endoplazmik retikulum, osteosit dendritik ağ içinde mitokondriyal transfere aracılık eder. bilim Av. 2019;5:eaaw7215.
42. Xu LL, Liu YM, Sun YX, Wang B, Xiong YP, Lin WP ve diğerleri. Doku kaynağı, mezenkimal kök hücrelerin farklılaşma potansiyellerini belirler: kemik iliği ve yağ dokusundan insan mezenkimal kök hücrelerinin karşılaştırmalı bir çalışması. Kök Hücre Arş. orada. 2017;8:1–11.
43. Katsuda T, Ochiya T. Mezenkimal kök hücreden türetilen hücre dışı vezikül aracılı doku onarımının moleküler imzaları. Kök Hücre Arş. orada. 2015;6:212.
44. Wang ZG, He ZY, Liang S, Yang Q, Cheng P, Chen AM. İnsan kemik iliği, yağ dokusu ve göbek kordonu mezenkimal kök hücrelerinden türetilen eksozomların kapsamlı proteomik analizi. Kök Hücre Arş. orada. 2020;11:511.
45. Wanet A, Caruso M, Domelevo Entfellner JB, Najar M, Fattaccioli A, Demazy C, et al. 7-Peroksizom proliferatörü ile aktive edilen reseptör gama koaktivatörü-1 alfa ekseni gibi transkripsiyon faktörü, mitokondriyal biyogenez ve hepatik farklılaşmaya kök hücre taahhüdü ile metabolik kaymayı birbirine bağlar. Kök hücreler. 2017;35:2184–97.
46. Paliwal S, Chaudhuri R, Agrawal A, Mohanty S. İnsan dokusuna özgü MSC'ler, rejeneratif yeteneklerini belirleyebilecek farklı mitokondri transfer yetenekleri sergiler. Kök Hücre Arş. orada. 2018;9:298.
47. Chiu RW, Chan LY, Lam NY, Tsui NB, Ng EK, Rainer TH, et al. Plazmada dolaşan mitokondriyal DNA'nın kantitatif analizi. klinik kimya 2003;49:719–26.
48. Al Amir Dache Z, Otandault A, Tanos R, Pastor B, Meddeb R, Sanchez C, et al. Kan, dolaşımdaki hücresiz solunumla yetkin mitokondri içerir. FASEB J. 2020;34:3616–30.
49. Nombela-Arrieta C, Ritz J, Silberstein LE. Mezenkimal kök hücrelerin zor doğası ve işlevi. Nat. Rahip Mol. Hücre Biol. 2011;12:126–31.
50. Parker DJ, Iyer A, Shah S, Moran A, Hjelmeland AB, Basu MK, et al. Drp1 tarafından düzenlenen yeni bir mitokondriyal siklin E havuzu, hücre yoğunluğuna bağlı hücre proliferasyonu ile bağlantılıdır. J. Hücre Bilimi 2015;128:4171–82.
51. St John JC, Facucho-Oliveira J, Jiang Y, Kelly R, Salah R. Mitokondriyal DNA aktarımı, replikasyonu ve kalıtımı: gametten embriyoya ve yavrulara ve embriyonik kök hücrelere bir yolculuk. Hımm. Üreme Güncelleme. 2010;16:488–509.
52. Kelly RD, Rodda AE, Dickinson A, Mahmud A, Nefzger CM, Lee W, et al. Mitokondriyal DNA haplotipleri, pluripotent ve farklılaşan embriyonik kök hücrelerde gen ekspresyon modellerini tanımlar. Kök hücreler. 2013;31:703–16.
53. Lin W, Xu L, Li G. İnsan idrarından multipotent progenitör hücrelerin izolasyonu ve kültürü için yeni bir protokol. J. Ortop. çeviri 2019;19:12–7.
54. Wilson A, Hodgson-Garms M, Frith JE, Genever P. Mezenkimal stromal hücrelerin çokluğu: tedaviye giden doğru yolu bulmak. Ön Bağışıklık. 2019;10:1112.
55. Morita Y, Ema H, Nakauchi H. En ilkel hematopoetik kök hücre kompartımanında heterojenlik ve hiyerarşi. J. Uzm. Med. 2010;207: 1173–82.
56. Ban-Ishihara R, Ishihara T, Sasaki N, Mihara K, Ishihara N. Mitokondriyal fisyon tarafından düzenlenen nükleoid yapının dinamikleri, cristae reformasyonuna ve sitokrom c'nin salınmasına katkıda bulunur. İşlem Natl Acad. bilim AMERİKA BİRLEŞİK DEVLETLERİ. 2013;110:11863–8.
57. Friedman JR, Lackner LL, West M, DiBenedetto JR, Nunnari J, Voeltz GK. ER, tübüller mitokondriyal bölünme bölgelerini işaretler. Bilim 2011;334:358–62.

58. Lewis SC, Uchiyama LF, Nunnari J. ER-mitokondri, insan hücrelerinde mitokondriyal bölünme ile mtDNA sentezini birleştirir. Bilim. 2016;353:aaf5549.
59. Gherghiceanu M, Popescu LM. Epikardiyal kök hücre nişindeki kardiyomiyosit öncüleri ve telositler: elektron mikroskobu görüntüleri. J. Hücre Mol. Med. 2010;14:871–7.
60. Russell KC, Phinney DG, Lacey MR, Barrilleaux BL, Meyertholen KE, O'Connor KC. Mezenkimal kök hücrelerin trilineage potansiyelindeki klonal heterojenliği ölçmek için in vitro, yüksek kapasiteli analiz, karmaşık bir soy taahhüdü hiyerarşisini ortaya koymaktadır. Kök hücreler. 2010;28:788–98.
61. Godwin S, Ward D, Pedone E, Homer M, Fletcher AG, Marucci L. Fare embriyonik kök hücrelerinde kültüre bağlı heterojen gen ekspresyonu ve proliferasyon dinamikleri için genişletilmiş bir model. NPJ Sist. Biol. Uygulama 2017;3:19.
62. Rennert RC, Januszyk M, Sorkin M, Rodrigues M, Maan ZN, Duscher D, et al. Mikroakışkan tek hücreli transkripsiyonel analiz, hücre bazlı tedavileri geliştirmek için yeni yüzey işaretleyici profillerini rasyonel olarak tanımlar. Nat. komün. 2016;7:11945.
63. Bigarella CL, Liang R, Ghaffari S. Kök hücreler ve ROS sinyalinin etkisi. Geliştirme 2014;141:4206–18.
64. Bölge LI. Hematopoietik kök hücre kendini yenilemesinin içsel ve dışsal kontrolü. Doğa 2008;453:306–13.
65. Lisowski P, Kannan P, Mlody B, Prigione A. Mitokondri ve kök hücre homeostazının dinamik kontrolü. EMBO Temsilcisi 2018;19:e45432. 66. Campello S, Scorrano L. Mitokondriyal şekil değişiklikleri: orkestrasyon hücre patofizyolojisi. EMBO Temsilcisi 2010;11:678–84.
67. Bahat A, Gross A. Hücre kaderi düzenlemesinde mitokondrial plastisite. J. Biol. kimya 2019;294:13852–63.
68. Maryanovich M, Zaltsman Y, Ruggiero A, Goldman A, Shachnai L, Zaidman SL, et al. Mitokondri metabolizmasını baskılayan bir MTCH2 yolu, hematopoetik kök hücre kaderini düzenler Nat. komün. 2015;6:7901.
69. Anso E, Weinberg SE, Diebold LP, Thompson BJ, Malinge S, Schumacker PT, et al. Mitokondriyal solunum zinciri, hematopoietik kök hücre fonksiyonu için gereklidir. Nat. Hücre Biol. 2017;19:614–25.
70. Menteşe A, He J, Bartram J, Javier J, Xu J, Fjellman E, et al. Asimetrik olarak ayrılmış mitokondri, hematopoietik kök hücre replikatif geçmişinin hücresel hafızasını sağlar ve HSC yıpranmasını sağlar. Hücre Kök Hücre. 2020;26:420–30 e6.
71. Chung JY, Steen JA, Schwarz TL. Mitokondrinin uygun dağılımı ve pasif kalıtımı için mitozda fosforilasyona bağlı motor dökülme gereklidir. Hücre Temsilcisi 2016;16:2142–55.
72. Katajisto P, Dohla J, Chaffer CL, Pentinmikko N, Marjanovic N, Iqbal S, et al. Kök hücreler. Yaşlı mitokondrinin yavru hücreler arasında asimetrik paylaştırılması köklük için gereklidir. Bilim. 2015;348:340–3.
73. Yamashita YM, Mahowald AP, Perlin JR, Fuller MT. Kök hücre bölünmesinde anne ve kızı sentrozomunun asimetrik kalıtımı. Bilim. 2007;315:518–21.
74. Mohrin M, Shin J, Liu Y, Brown K, Luo H, Xi Y, et al. Kök hücre yaşlanması. Bir mitokondriyal UPR aracılı metabolik kontrol noktası, hematopoietik kök hücre yaşlanmasını düzenler. Bilim. 2015;347:1374–7.
75. Iwata R, Casimir P, Vanderhaeghen P. Postmitotik hücrelerde mitokondriyal dinamikler nörojenezi düzenler. Bilim. 2020;369:858–62.
76. Ren L, Chen X, Chen X, Li J, Cheng B, Xia J. Mitokondriyal dinamikler: mezenkimal kök hücrelerin kader belirlemesinde fisyon ve füzyon. Ön Hücre Geliştirme Biol. 2020;8:580070.
77. Agathocleous M, Love NK, Randlett O, Harris JJ, Liu J, Murray AJ, et al. Embriyonik retinada metabolik farklılaşma. Nat. Hücre Biol. 2012;14:859–64.
78. Chen CT, Shih YRV, Kuo TK, Lee OK, Wei YH. İnsan mezenkimal kök hücrelerinin osteojenik farklılaşması sırasında mitokondriyal biyogenez ve antioksidan enzimlerdeki koordineli değişiklikler. Kök hücreler. 2008;26:960–8.
79. Chung S, Dzeja PP, Faustino RS, Perez-Terzic C, Behfar A, Terzic A. Kök hücrelerin kardiyak farklılaşması için mitokondriyal oksidatif metabolizma gereklidir. Nat. klinik Pratik Kardiyovasküler Med. 2007;4:S60–S7.
80. Folmes CD, Dzeja PP, Nelson TJ, Terzic A. Kök hücre homeostazı ve farklılaşmasında metabolik plastisite. Hücre Kök Hücre. 2012;11:596–606.
81. Mandal S, Lindgren AG, Srivastava AS, Clark AT, Banerjee U. Mitokondriyal fonksiyon, embriyonik kök hücrelerin çoğalmasını ve erken farklılaşma potansiyelini kontrol eder. Kök hücreler. 2011;29:486–95.
82. Khacho M, Clark A, Svoboda DS, Azzi J, MacLaurin JG, Meghaizel C, et al. Mitokondriyal dinamikler, bir nükleer transkripsiyon programını düzenleyerek kök hücre kimliğini ve kader kararlarını etkiler. Hücre Kök Hücre. 2016;19:232–47.
83. Hoque A, Sivakumaran P, Bond ST, Ling NXY, Kong AM, Scott JW, et al. Mitokondriyal fisyon proteini Drp1 inhibisyonu, insan pluripotent kök hücrelerinin kardiyak mezodermal farklılaşmasını destekler Hücre Ölümü Keşfi 2018;4:39.
84. Xu Y, Zhang Y, Garcia-Canaveras JC, Guo L, Kan M, Yu S, et al. Şaperon aracılı otofaji, embriyonik kök hücrelerin pluripotensini düzenler. Bilim. 2020;369:397–403.
85. TeSlaa T, Chaikovsky AC, Lipchina I, Escobar SL, Hochedlinger K, Huang J, et al. alfa-Ketoglutarat, hazırlanmış insan pluripotent kök hücrelerinin ilk farklılaşmasını hızlandırır. Hücre Metab. 2016;24:485–93.
86. Lu V, Dahan P, Ahsan FM, Patananan AN, Roy IJ, Torres A Jr, et al. Mitokondriyal metabolizma ve glutamin, insan pluripotent kök hücrelerinin mezoderm farklılaşması için gereklidir. Hücre Res. 2019;29:596–8.
87. Schieke SM, Ma M, Cao L, McCoy JP Jr, Liu C, Hensel NF, et al. Mitokondriyal metabolizma, fare embriyonik kök hücrelerinde farklılaşmayı ve teratom oluşum kapasitesini modüle eder. J. Biol. kimya 2008;283:28506–12.
88. Ma MS, Kannan V, de Vries AE, Czepiel M, Wesseling EM, Balasubramaniyan V, et al. Fare embriyonik kök hücrelerinden ve indüklenmiş pluripotent kök hücrelerden türetilen osteoblastların karakterizasyonu ve karşılaştırılması. J. Kemik Min. Metab. 2017;35:21–30.
89. Daw CC, Ramachandran K, Enslow BT, Maity S, Bursic B, Novello MJ, et al. Laktat, hücresel metabolizmayı entegre etmek için ER-mitokondriyal Mg(2 plus) dinamiklerini ortaya çıkarır. Hücre. 2020;183:474–89 e17.
90. Alt EU, Senst C, Murthy SN, Slakey DP, Dupin CL, Chaffin AE, et al. Yaşlanma, dokuda yerleşik mezenkimal kök hücre özelliklerini değiştirir. Kök Hücre Arş. 2012;8:215–25.
91. Berger E, Rath E, Yuan D, Waldschmitt N, Khaloian S, Allgauer M, et al. Mitokondriyal fonksiyon, bağırsak epitel köklüğünü ve proliferasyonunu kontrol eder. Nat. komün. 2016;7:13171.
92. Zong Z, Zhang X, Yang Z, Yuan W, Huang J, Lin W, et al. Tavşanlarda ameliyatla indüklenen osteoartriti iyileştiren aşamalı önkoşullama ile gençleştirilmiş yaşlanan mezenkimal kök hücreler. Kemik Jt. Res. 2021;10:10–21.
93. Chakkalakal JV, Jones KM, Basson MA, Brack AS. Yaşlı niş, kas kök hücre sessizliğini bozar. Doğa. 2012;490:355–60.
94. Maryanovich M, Zahalka AH, Pierce H, Pinho S, Nakahara F, Asada N, et al. Kemik iliğinde adrenerjik sinir dejenerasyonu, hematopoietik kök hücre nişinin yaşlanmasına neden olur. Nat. Med. 2018;24:782–91.
95. Lopez-Otin C, Blasco MA, Partridge L, Serrano M, Kroemer G. Yaşlanmanın ayırt edici özellikleri. Hücre. 2013;53:1194–217.
96. Oh J, Lee YD, Bahisler AJ. Kök hücre yaşlanması: mekanizmalar, düzenleyiciler ve terapötik fırsatlar. Nat. Med. 2014;20:870–80.
97. Baker N, Boyette LB, Tuan RS. Yaşlanmada kemik iliği kaynaklı mezenkimal kök hücrelerin karakterizasyonu. Kemik 2015;70:37–47.
98. Chen C, Liu Y, Liu R, Ikenoue T, Guan KL, Zheng P. TSC-mTOR, mitokondriyal biyogenezi ve reaktif oksijen türlerini baskılayarak hematopoietik kök hücrelerin hareketsizliğini ve işlevini korur. J. Uzm. Med. 2008;205: 2397–408.
99. Jaiswal S, Fontanillas P, Flannick J, Manning A, Grauman PV, Mar BG, et al. Olumsuz sonuçlarla ilişkili yaşa bağlı klonal hematopoez. İngilizce J.Med. 2014;371:2488–98.
100. Shyh-Chang N, Daley GQ, Cantley LC. Doku gelişimi ve yaşlanmada kök hücre metabolizması. Geliştirme 2013;140:2535–47.
101. Vannini N, Girotra M, Naveiras O, Nikitin G, Campos V, Giger S, et al. Mitokondriyal aktivitenin modülasyonu yoluyla hematopoietik kök hücre kaderinin belirlenmesi. Nat. komün. 2016;7:13125.
102. Zhang H, Ryu D, Wu Y, Gariani K, Wang X, Luan P ve diğerleri. NAD( artı ) replesyonu, mitokondriyal ve kök hücre fonksiyonunu iyileştirir ve farelerde yaşam süresini uzatır. Bilim. 2016;352:1436–43.
103. Jin C, Li J, Green CD, Yu X, Tang X, Han D, et al. Histon demetilaz UTX-1, insülin/IGF-1 sinyal yolunu hedef alarak C. elegan'ın yaşam süresini düzenler. Hücre Metab. 2011;14:161–72.
104. Brown K, Xie S, Qiu X, Mohrin M, Shin J, Liu Y ve ark. SIRT3, yaşlanmayla ilişkili dejenerasyonu tersine çevirir. Hücre Temsilcisi 2013;3:319–27.
105. Ito K, Turcotte R, Cui J, Zimmerman SE, Pinho S, Mizoguchi T, et al. Saflaştırılmış bir Tie2 artı hematopoietik kök hücre popülasyonunun kendini yenilemesi, mitokondriyal temizliğe dayanır. Bilim. 2016;354:1156–60.
106. Chen Z, Amro EM, Becker F, Holzer M, Rasa SMM, Njeru SN, et al. Kohezin aracılı NF-kappaB sinyali, yaşlanma ve iltihaplanmada hematopoietik kök hücrenin kendi kendini yenilemesini sınırlar. J. Uzm. Med. 2019;216:152–75.
107. Youm YH, Grant RW, McCabe LR, Albarado DC, Nguyen KY, Ravussin A, et al. Kanonik Nlrp3 iltihabı, sistemik düşük dereceli iltihabı yaşlanmadaki fonksiyonel düşüşe bağlar. Hücre Metab. 2013;18:519–32.
108. Youm YH, Kanneganti TD, Vandanmagsar B, Zhu X, Ravussin A, Adijiang A, et al. Nlrp3 iltihabı, yaşa bağlı timik ölümü ve immün yaşlanmayı teşvik eder. Hücre Temsilcisi 2012;1:56–68.
109. Luo H, Mu WC, Karki R, Chiang HH, Mohrin M, Shin JJ, et al. NLRP3 iltihaplanmasının mitokondriyal stresle başlatılan anormal aktivasyonu, hematopoetik kök hücre yaşlanmasının fonksiyonel bozulmasını düzenler. Hücre Temsilcisi 2019;26:945–54 e4.
110. Yu WM, Liu X, Shen J, Jovanovic O, Pohl EE, Gerson SL, et al. Hematopoietik kök hücre farklılaşması için mitokondriyal fosfataz PTPMT1 tarafından metabolik düzenleme gereklidir. Hücre Kök Hücre. 2013;12:62–74.
111. Tsang KY, Chan D, Cheslett D, Chan WC, So CL, Melhado IG, et al. Hayatta kalan endoplazmik retikulum stresi, değiştirilmiş kondrosit farklılaşması ve işleviyle birleştirilir. PLoS Biol. 2007;5:e44.
112. Hetz C. Katlanmamış protein tepkisi: ER stresi ve ötesinde hücre kaderi kararlarının kontrol edilmesi. Nat. Rahip Mol. Hücre Biol. 2012;13:89–102.
113. Kourtis N, Tavernarakis N. Hücresel stres yanıt yolları ve yaşlanma: karmaşık moleküler ilişkiler. EMBO J. 2011;30:2520–31.
114. Haigis MC, Yankner BA. Yaşlanma stres tepkisi. Mol. Hücre. 2010;40:333–44.
115. Taormina G, Ferrante F, Vieni S, Grassi N, Russo A, Mirisola MG. Uzun ömür: model organizmalardan alınan ders. Genler (Basel). 2019;10:518.
116. Liu L, Zhao M, Jin X, Ney G, Yang KB, Peng F ve diğerleri. IRE1alpha-XBP1 aracılığıyla adaptif endoplazmik retikulum stres sinyali, hematopoietik ve lösemi öncesi kök hücrelerin kendi kendini yenilemesini korur. Nat. Hücre Biol. 2019;21:328–37.
117. Bravo R, Gutierrez T, Paredes F, Gatica D, Rodriguez AE, Pedrozo Z, et al. Endoplazmik retikulum: ER stresi mitokondriyal biyoenerjetiği düzenler. Int. J. Biochem. Hücre Biol. 2012;44:16–20.
118. Chan WCW, Tsang KY, Cheng YW, Ng VCW, Chik H, Tan ZJ, et al. Osteositlerde katlanmamış protein tepkisini aktive etmek, kraniodiyafiz displazisi ile uyumlu hiperostoza neden olur. Hımm. Mol. Genet. 2017;26:4572–87.
119. Abdullahi A, Barayan D, Vinaik R, Diao L, Yu N, Jeschke MG. ER stres sinyalinin aktivasyonu, büyük travmadan sonra mortaliteyi arttırır. J. Hücre Mol. Med. 2020;24:9764–73.
120. Ricci D, Marrocco I, Blumenthal D, Dibos M, Eletto D, Vargas J, et al. IRE1alpha'nın kümelenmesi, ER stresinin algılanmasına bağlıdır, ancak RNaz aktivitesine bağlı değildir. FASEB J. 2019;33:9811–27.
121. Bravo-Sagua R, Parra V, Ortiz-Sandoval C, Navarro-Marquez M, Rodriguez AE, Diaz-Valdivia N, et al. Caveolin-1, ER stresinin erken safhasında ERmitokondri iletişiminin PKA-DRP1-aracılı yeniden modellenmesini bozar. Hücre Ölüm Farkı. 2019;26:1195–212.
122. Hamasaki M, Furuta N, Matsuda A, Nezu A, Yamamoto A, Fujita N, et al. ER-mitokondri temas bölgelerinde otofagozomlar oluşur. Doğa. 2013;495:389–93.
123. Cortez L, Sim V. Protein katlama hastalıklarında kimyasal şaperonların terapötik potansiyeli. Prion 2014;8:97–202.
124. Friedman JR, Webster BM, Mastronarde DN, Verhey KJ, Voeltz GK. ER kayma dinamikleri ve ER-mitokondriyal temaslar, asetillenmiş mikrotübüllerde meydana gelir. J. Hücre Biol. 2010;190:363–75.
125. İngilizce AM, Schuler MH, Xiao T, Kornmann B, Shaw JM, Hughes AL. ERmitokondri temasları, mitokondriyal kaynaklı bölme biyogenezini destekler. J. Hücre Biol. 2020;219:e202002144.
126. Goodrum JM, Lever AR, Coody TK, Gottschling DE, Hughes ALRsp5. ve Mdm30, yaşa bağlı vakuol stresine yanıt olarak mitokondriyal ağı yeniden şekillendirir. Mol. Biol. Hücre. 2019;30:2141–54.
127. Schuler MH, English AM, Campbell TJ, Shaw JM, Hughes AL. Mitokondriyal kaynaklı bölmeler, amino asit stresine hücresel adaptasyonu kolaylaştırır. [Ön baskı]. 2020. https://doi.org/10.1101/2020.03.13.991091 adresinden erişilebilir.
128. Chen Q, Samidurai A, Thompson J, Hu Y, Das A, Willard B ve ark. Yaşlı kalplerde endoplazmik retikulum stres aracılı mitokondriyal disfonksiyon. Biyokimya. biyografiler. Açta Mol. Temel Dis. 2020;1866:165899.
129. Bravo R, Vicencio JM, Parra V, Troncoso R, Munoz JP, Bui M, et al. Artan ERmitokondriyal eşleşme, ER stresinin erken evrelerinde mitokondriyal solunum ve biyoenerjetiği teşvik eder. J. Hücre Bilimi 2011;124:2143–52.
130. Bakış B, Balaban RS. Hücresel enerjinin düzenlenmesinde mitokondriyal Ca2 plus'ın rolü. Biyokimya 2012;51:2959–73.
131. Honrath B, Metz I, Bendridi N, Rieusset J, Culmsee C, Dolga AM. Glikozla düzenlenen protein 75, ER-mitokondriyal eşleşmeyi ve nöronal hücrelerde oksidatif strese duyarlılığı belirler. Hücre Ölümü Keşfi 2017;3:17076.
132. Liu X, Hajnoczky G. Ca2 artı Miro-Milton kompleksi tarafından mitokondriyal dinamiklerin bağımlı düzenlenmesi. Int. J. Biochem. Hücre Biol. 2009;41:1972–6.
133. Knupp J, Arvan P, Chang A. Artan mitokondriyal solunum, endoplazmik retikulum stresinden hayatta kalmayı destekler. Hücre Ölüm Farkı. 2019;26:487–501.
134. Mironov SL, Ivannikov MV, Johansson M. [Ca2 plus ] Nöronlarda mitokondri ve endoplazmik retikulum arasındaki I sinyali mikrotübüller tarafından düzenlenir. Mitokondriyal geçirgenlik geçiş gözeneklerinden Ca2 artı kaynaklı Ca2 artı salınımına. J. Biol. kimya 2005;280:715–21.
135. Shan X, Roberts C, Lan Y, Percec I. Yaş, insan adipozdan türetilen kök hücrelerde stres koşulları altında SUMO proteinlerinin kromatin yapısını ve ekspresyonunu değiştirir. bilim 2018;8:11502.
136. Liu H, Huang B, Xue S, U KP, Tsang LL, Zhang X, ve diğerleri. MSC'lerin strese bağlı yaşlanmasında mTORC1/p70S6K yolu ile heterokromatin organizasyonu arasındaki fonksiyonel karışma. Kök Hücre Arş. orada. 2020;11:279.
137. Zhu D, Wu X, Zhou J, Li X, Huang X, Li J ve ark. NuRD, asetil-CoA seviyesine yanıt olarak kromatin yeniden modellemesi yoluyla mitokondriyal stres kaynaklı uzun ömürlülüğe aracılık eder. bilim Av. 2020;6:eabb2529.
138. Pietrangelo L, D'Incecco A, Ainbinder A, Michelucci A, Kern H, Dirksen RT, et al. Mitokondrilerin Ca2(artı)'dan yaşa bağlı olarak ayrılması, iskelet kasındaki birimleri serbest bırakır. Oncotarget. 2015;6:35358–71.
139. Miyamoto K, Tajima Y, Yoshida K, Oikawa M, Azuma R, Allen GE, et al. Totipotensiye doğru yeniden programlama, küçük moleküllerin sinerjistik etkileriyle büyük ölçüde kolaylaştırılır. Biol. Açık. 2017;6:415–24.
140. Oliverio S, Beltran JSO, Occhigrossi L, Bordoni V, Agrati C, D'Eletto M, et al. Transglutaminaz tip 2, hematopoietik kök hücre homeostazında yer alır. Biyokimya. 2020;85:1159–68.
141. Cakouros D, Gronthos S. Yaşlanma sırasında mezenkimal kök/stromal hücrelerin değişen epigenetik manzarası. Kemik 2020;137:115440.
142. Betto RM, Diamante L, Perrera V, Audano M, Rapelli S, Lauria A, et al. Saf pluripotent hücrelerde DNA metilasyonunun metabolik kontrolü. Nat. Genet. 2021;53:215–29.
143. Terasaki M, Chen LB, Fujiwara K. Mikrotübüller ve endoplazmik retikulum birbirine oldukça bağımlı yapılardır. J. Hücre Biol. 1986;103:1557–68.
144. Choi GE, Oh JY, Lee HJ, Chae CW, Kim JS, Jung YH ve diğerleri. Glukokortikoid aracılı ER-mitokondri temasları, AMPA reseptörünü ve mikrotübül istikrarsızlaştırma yoluyla hücre terminaline mitokondri kaçakçılığını azaltır. Hücre Ölüm Dis. 2018;9:1137.
145. Liu X, Zhang Y, Ni M, Cao H, Signer RAJ, Li D, et al. mTORC1-aracılı protein çevirisiyle eritropoezde mitokondriyal biyogenezin düzenlenmesi. Nat. Hücre Biol. 2017;19:626–38.
YAZAR KATKILARI
GL, XJ ve WY-WL: kavramsallaştırma, çerçeve tasarımı, metin düzenleme ve finansman desteği. WL, SC, YW ve MW: ilgili literatür ve araştırma verilerinin toplanması, taslak yazımı ve şekil hazırlama. Tüm yazarlar, içeriğin önemli ölçüde tartışılmasına ve nihai versiyonun onaylanmasına katkıda bulunmuştur.
FİNANSMAN
Bu çalışma, Hong Kong Hükümeti Araştırma Bağışları Konseyi, İşbirliğine Dayalı Araştırma Fonu (C7030-18G to GL), Genel Araştırma Fonu (19-093- GRF, 14120118, 9054014, N_CityU102/) tarafından finanse edilmiştir. 15 ve 14119115 - GL), Hong Kong İnovasyon Teknoloji Komisyonu Fonları (PRP/050/19FX ve ITS/448/18 - GL ve XJ), Natural Science Foundation of Guang Dong (2018B030311065 - XJ), National Natural Science Foundation of China (NSFC No. 31970815 - XJ), Hong Kong UGC/GRF (14165217 - XJ), Start-up Fund of The Chinese University of Hong Kong, Hong Kong ÖİB (Referans numarası 4930991 - WY-WL). Bu çalışma aynı zamanda Hong Kong ÖİB Yenilik Teknoloji Komisyonu, Çin Halk Cumhuriyeti ve Spor Hekimliği ve Rejeneratif Teknoloji Programı, Lui Che Woo Yenilikçi Tıp Enstitüsü, Çin Üniversitesi tarafından başlatılan Health@InnoHK Programının araştırma fonları tarafından da desteklenmiştir. Hong Kong.
ETİK BEYANI
Uygulanamaz.
REKABETÇİ ÇIKARLAR
Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.
EK BİLGİLER
Yazışmave malzeme talepleri WL veya GL'ye yönlendirilmelidir.
yayıncının notuSpringer Nature, yayınlanan haritalardaki ve kurumsal bağlantılardaki yetki iddiaları konusunda tarafsız kalır.
【Daha fazla bilgi için:george.deng@wecistanche.com / WhatApp:86 13632399501】


