

Gastrointestinal Epitelyal Doğuştan Bağışıklık—Yeni Model Olarak Bölgeselleşme ve Organoidler
Jun 20, 2023
İnsan gastrointestinal sistemi mikrobiyal uyaranlarla sürekli temas halindedir. Bariyerleri, izinsiz giren patojenlerin gözetimini sağlarken, komensal bakterilerle bir arada var olmayı sağlamalıdır. Etkileşimin merkezinde, vücudun sınırlarını belirleyen epitel tabakası bulunur. Mikroplara karşı enflamatuar tepkiler oluşturmak için Toll benzeri reseptörler gibi çok sayıda farklı doğuştan gelen bağışıklık sensörleri ile donatılmıştır. Bu karmaşık sistemin işlev bozukluğu, inflamatuar barsak hastalığı gibi inflamasyonla ilişkili patolojilere yol açar. Bununla birlikte, hücresel etkileşimlerin karmaşıklığı, moleküler temelleri ve gelişimleri tam olarak anlaşılamamıştır. Son yıllarda, kök hücre türevli organoidler, hem gelişim hem de bulaşıcı hastalıklar da dahil olmak üzere çok çeşitli patolojiler için umut verici modeller olarak artan ilgi gördü. Ek olarak, organoidler in vitro olarak epitelyal doğuştan gelen bağışıklığın incelenmesini sağlar. Bu derlemede, doğuştan gelen bağışıklık algısı ve gelişimini tartışmak için gastrointestinal epitel bariyeri ve bölgesel organizasyonuna odaklanıyoruz.
Mikrobiyal uyaranlara maruz kalmak bağışıklığı artırabilir, çünkü mikrobiyal uyaranlar vücudu bağışıklık hücreleri ve bağışıklık molekülleri üretmesi için uyarabilir ve böylece vücudun bağışıklık yanıtını uyarabilir. Spesifik olarak, mikrobiyal uyaranlara maruz kalma, makrofajlar, dendritik hücreler ve doğal öldürücü hücreler gibi bağışıklık hücrelerini aktive edebilir, bağışıklık hücrelerinin çoğalmasını ve farklılaşmasını hızlandırabilir ve bağışıklık hücrelerinin canlılığını ve hastalık direncini geliştirebilir. Ek olarak, mikrobiyal uyaranlar ayrıca enflamatuar tepkileri ve bağışıklık düzenlemesini destekleyebilir ve vücudun patojenlere karşı bağışıklık savunmasını geliştirebilir. Bu nedenle, mikrobiyal uyaranlara makul düzeyde maruz kalma, insan bağışıklığının gelişimini destekleyebilir. Bağışıklığı geliştirmemiz gerektiği görülebilir. Cistanche, bağışıklığı önemli ölçüde artırabilir. Et külü, polisakkaritler, iki mantar, Huang Li, vb. gibi çeşitli biyolojik olarak aktif bileşenler içerir. Bu bileşenler, bağışıklık sisteminde çeşitli et türlerini uyarabilir. hücreler, bağışıklık canlılığını arttırır.

Cistanche'nin sağlığa faydalarına tıklayın
anahtar kelimeler
Gastrointestinal sistem. Bağışıklık. Bölgeselleşme ve organoidler.
giriiş
Gastrointestinal (GI) sistem, yiyeceklerin sindirilmesi için gereklidir ve ağız boşluğundan yemek borusu, mide, ince bağırsak ve kalın bağırsak yoluyla anüse kadar uzanır. GI lümeni, çok çeşitli kommensaller, simbiyontlar ve nadiren patojenler tarafından kolonize edilir. Mikrobiyal kolonizasyon, midede 103 mikrop/ml'den daha az, ince bağırsakta 103-107 mikrop/ml ve kolonda 1011-1012 mikrop/ml'ye kadar olan bir eğimi takip eder ([1-3]'te gözden geçirilmiştir). Glandüler mideden itibaren, GI yolu tek bir sütunlu epitel hücreleri tabakası ile kaplanmıştır. Bu epitel tabakası, fiziksel bariyeri zorlayan bağlantısal protein kompleksleri tarafından sıkı bir şekilde birbirine kenetlenmiş farklı özelleşmiş hücreler içerir (Şekil 1).
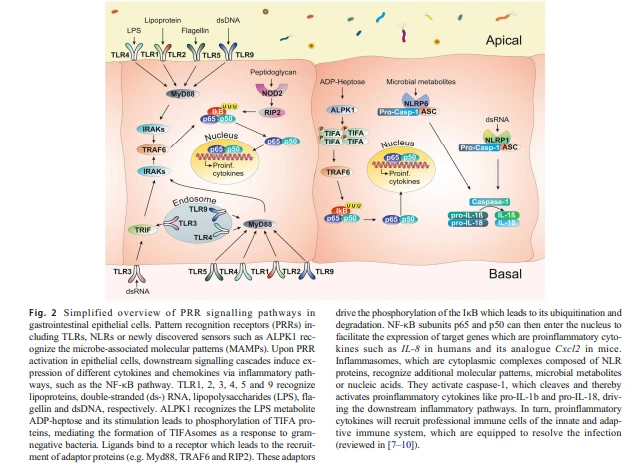
Bağırsak mikrobiyotasının yanı sıra sindirilen patojenler ve epitel hücreleri arasındaki etkileşime, Toll benzeri reseptörler (TLR'ler), nükleotit bağlayıcı oligomerizasyon alanı (NOD) benzeri reseptörler (NLR'ler) dahil olmak üzere örüntü tanıma reseptörleri (PRR'ler) ve diğerleri aracılık eder. sitozolik reseptörler (Şekil 2, [7, 11]'de gözden geçirilmiştir). Bu PRR'ler, mikropla ilişkili moleküler modellerin (MAMP'ler) ve hasarla ilişkili moleküler modellerin (DAMP'ler) tanınmasında önemli bir rol oynar. Epitel hücrelerinde PRR aktivasyonu üzerine, akış aşağı sinyal kaskadları, profesyonel bağışıklık hücrelerini yönlendirmek için NF-κB yolu gibi enflamatuar yollar yoluyla farklı sitokinlerin ve kemokinlerin ekspresyonunu indükler ([8, 12-16]'da gözden geçirilmiştir). Klasik PRR'lere ek olarak, yakın zamanda alfa kinaz 1 (ALPK1) gibi başka bakteriyel aktivite sensörleri keşfedilmiştir [17-19]. NLR proteinlerinden oluşan sitoplazmik kompleksler olan enflamasyonlar, bakteriyel metabolitler gibi ek moleküler kalıpları tanır ([7, 9]'da gözden geçirilmiştir).
PRR algılaması da dahil olmak üzere gastrointestinal doğuştan gelen bağışıklık yanıtları, çeşitli lümen mikrobiyomlarına maruz kalmayı tolere edebilme ile potansiyel olarak zararlı patojenlerden korunma ihtiyacını dengelemelidir. Bu nedenle, PRR sinyalinin ifadesinin ve işlevinin yalnızca patojen algılama üzerinde değil, aynı zamanda doku homeostazı (Kutu 1) ve akut gastroenterit, gastrit ve inflamatuar bağırsak hastalıkları (IBD'ler) dahil olmak üzere inflamatuar hastalıklar üzerinde de önemli bir etkiye sahip olması beklenmektedir (['de gözden geçirilmiştir] 12, 13, 20, 21]). Bu hastalıkların her biri tamamen farklı patogenezler gösterse de, kritik bir özelliği paylaşırlar: çevre ile vücut arasındaki arayüz önemli ölçüde bozulur. Bununla birlikte, bağırsak epitel tabakasındaki değişikliklerin, özellikle doğuştan gelen bağışıklık fonksiyonunu etkileyenlerin, yukarıda bahsedilen hastalıkların bir nedeni mi yoksa sonucu mu olduğu konusunda süregelen bir tartışma vardır.
PRR sinyali ile ilgili çoğu bilgi, hematopoietik hücreler üzerine yapılan araştırmalardan toplanmıştır. Epitelyal hücrelerde PRR sinyalinin fonksiyonlarını, sızan bağışıklık hücrelerininkinden ayırt etmek bir zorluk olmuştur. Başlıca engeller, saf epitel hücrelerinin izole edilmesindeki ve PRR'lere karşı güvenilir antikorların yükseltilmesindeki zorlukları içerir. Bağırsak epitel kök hücrelerinden türetilen organoidlerin ilerlemesiyle birlikte, artık birincil epitel hücrelerinin doğuştan gelen bağışıklık yanıtının araştırılmasına olanak tanıyan indirgemeci bir deneysel model mevcuttur. Organoidler, kendi kendini organize etme kapasitesine sahip olan ve orijinal organın bazı işlevlerini (örneğin salgılama, süzme, emme, kasılma) koruyan, kök hücreden türetilen, 3- boyutlu hücre kültürleri olarak tanımlanır. Organoidler, dokuda yerleşik yetişkin kök hücrelerden (ASC'ler) veya pluripotent kök hücrelerden (PSC'ler) büyütülebildiğinden, hücreler dönüştürülmez. Birlikte, iki tür organoid, taklit edilebilecek geniş bir organ repertuarını kapsar ([4, 22, 23]'te gözden geçirilmiştir). Her iki teknolojinin de avantajları vardır ([4, 22, 23]'te gözden geçirilmiştir). Örneğin, ASC'den türetilmiş organoidlerin kültürleri muazzam genişleme potansiyeline sahiptir ve nispeten homojendir ve PSC'den türetilmiş organoidler, çok farklı gelişimsel kökenlere sahip hücreleri (örneğin epitel ve mezenkimal hücreler) birleştirmeleri anlamında daha karmaşıktır. PSC'den türetilen organoidler, gelişim adımlarının analizine izin verir, ancak in vivo olarak bulunduğu gibi epitel tabakasında tam farklılaşma düzeyine ulaşamayabilir [24]. Fetal dokulardan üretilen ASC'den türetilen organoidler, kültürde yaşlandıklarından fetal epitelyumun olgunlaşmasının araştırılmasına da izin verebilir [24, 25].

Bu inceleme, organoidleri kullanan çalışmalardan elde edilen içgörüleri vurgulayacak ve bu teknolojinin epitelyal doğuştan gelen bağışıklık çalışması için potansiyelini tartışacaktır. Gastrointestinal sistemdeki bölgesel organizasyona odaklanıyoruz.
GI sisteminde bölgesel kimlik ve doğuştan gelen bağışıklık sinyali
Gastrointestinal hastalıklara bakıldığında, bazılarının gastrointestinal sistemin belirli bir bölümüyle sınırlı olduğuna dikkat etmek önemlidir. IBD, farklı ve hastalığa özgü bir enflamasyon paterni gösteren Crohn hastalığı (CD) ve ülseratif koliti (UC) içerir: UC rektumda başlar ve kolonda bulunurken, CD, gastrointestinal sistemin tüm kısımlarını etkileyebilir. anüse ağız boşluğu. Ayrıca, CD, GI yolu içinde segmental, süreksiz enflamasyon ile karakterize edilirken, UC genellikle kolonun sürekli bir enflamasyonu olarak tanımlanır ([26, 27]'de gözden geçirilmiştir). Yemek borusu, mide ve kolonda kanser insidansı yüksektir ve enfeksiyon ve inflamasyon bu kanserlerin gelişimini ve ilerlemesini destekleyebilir ([28, 29]'da gözden geçirilmiştir). Aksine, ince bağırsakta malign transformasyon çok nadirdir ([30]'da gözden geçirilmiştir). Bu hastalıkların GI kanalındaki belirgin segment özgüllüğü muamma olmaya devam ediyor, ancak bölgeye özgü kökenlerinin, sıkı bir şekilde dengelenmiş epitelyal bariyer fonksiyonu, doğuştan gelen bağışıklık ve mukozal rejenerasyon sisteminin bölgeye özgü rahatsızlıklarına dayandığını tahmin etmek cazip geliyor. . Bu nedenle, GI yolu içindeki segmentlerdeki farklılıkları vurgulamak ilginçtir.

GI yolu, çok farklı fiziksel işlevlere sahip anatomik olarak tanımlanmış birkaç segment içerir ([31]'de gözden geçirilmiştir). Midenin ana işlevi, yiyeceklerin sindirilmesi ve gelen patojenlerin mide asidi ile ortadan kaldırılmasıdır. Besinlerin midenin epitel tabakasına ulaşması gerekmez; bu nedenle vücut, epitel hücrelerini yalnızca asidinden değil aynı zamanda lümen içeriğinden de koruyan koruyucu bir mukus bariyerine yoğun bir şekilde yatırım yapar ([32, 33]'te gözden geçirilmiştir). Buna karşılık, ince bağırsağın ana işlevi sadece sindirim değil, aynı zamanda besin maddelerinin alınmasıdır. Buna uygun olarak, ince bağırsak, hücre yüzeylerinin besinlerle yakın temasa geçtiği bağırsak lümenine çıkıntı yapan villuslar nedeniyle önemli ölçüde genişlemiş bir yüzey alanına sahiptir. Sindirimin çoğu, villusların uzun ve ince olduğu proksimal ince bağırsak, duodenum ve jejunumda gerçekleşir. Jejunum, oldukça gevşek mukusu süsleyen, böylece epitel tabakasını koruyan ve kriptleri steril tutan ([35]'te gözden geçirilmiştir) antimikrobiyal peptitleri [34] salgılayan Paneth hücrelerinin en yüksek oranına sahiptir.
Villi ileuma doğru giderek kısalır ve genişler ([36]'da gözden geçirilmiştir), burada yine mukus korumanın önemli bir bölümünü üstlenir: goblet hücrelerinin en yüksek oranı ile ileum daha kalın bir mukus tabakasına ve daha düşük bir mukus tabakasına sahiptir. jejunumdan [34] ([31]'de gözden geçirilmiştir) sindirim ve emilim hızı. Son olarak, kolon suyu yeniden emer ve trilyonlarca kommensal bakteriyi güvenli bir şekilde barındırabilmek için geniş, kalın ve iki katmanlı bir mukus örtüsüne yatırım yapar. Kolonda villus yoktur ve kriptler ince bağırsağınkinden daha küçüktür. Paneth hücreleri yoktur ve goblet hücre oranı epitel tabakasının yüzde 25'ine kadar çıkabilir [37]. Bu nedenle, üç bağırsak segmenti, epitel hücreleri ile mikrobiyota arasında güvenli bir mesafeyi korumak için farklı stratejilere sahiptir. MAMP tanıma ve bağışıklık yollarının aktivasyonu, bu etkileşimin başka bir katmanıdır ve bu nedenle, bunların da GI yolu boyunca yapılandırılmaları mantıklıdır ([38]'de gözden geçirilmiştir). Bununla birlikte, PRR organizasyonunun yapısını tam olarak neyin şekillendirdiği konusunda büyüleyici bir bilmece olmaya devam ediyor.
Sindirim ve besin alımı gibi bölgesel işlevler için önemli olan genlerin sefalokaudal eksen boyunca uzamsal bölümlendirmeyi takip etmesi sezgisel olsa da ([39]'da gözden geçirilmiştir), böyle bir organizasyonun epitelyal doğuştan gelen bağışıklık sinyali için beklenmiyordu. Önceki çalışmalar, MAMP'lerle stimülasyona yanıt olarak PRR sinyalinin düzenlendiğini bildirmişti. Örneğin, TLR4 yanıtı doğumdan sonra, muhtemelen doğum sırasında LPS'ye maruz kalma ve ardından bağırsağın kolonizasyonu nedeniyle azalır [40]. Ayrıca, TLR9'un ligandı CpG-DNA ile uyarılması, Tlr4 ekspresyonunda bir azalmaya yol açar ve TLR4 sinyalini inhibe eder [41]. Bu nedenle, GI kanalındaki mikroorganizmalar, onların molekülleri ve metabolitleri ile temasın, bağırsak lümenine doğru PRR ekspresyonunun susturulmasına yol açması bekleniyordu ([14]'te gözden geçirildi). Ancak, TLR'leri hedefleyen güvenilmez antikorlar gibi teknik güçlüklerin neden olduğu çelişkili sonuçlar, sahada karışıklığa yol açtı ve belirli bir PRR'nin ifade edilip edilmediği net değildi ([42]'de gözden geçirildi). Ex vivo izole edilmiş epitel hücrelerinde Tlr2 ve Tlr4'ün mRNA'sı için erken Northern lekeleri, bu iki Tlr molekülünün ekspresyon seviyelerinin segmente özgü olduğunu gösterdi: Tlr2 esas olarak kolonda eksprese edilirken, Tlr4 esas olarak mide ve kolonda eksprese edildi. Yazarlar bunu " bu TLR'lerin stratejik bölümlendirmesi" [43]. Son çalışmalar, bu segmente özgü ifade ilkesinin bu iki TLR'nin ötesine uzandığını ve her zaman mikrobiyal yükü takip etmeyen oldukça karmaşık bir bölgesel PRR sinyalizasyon organizasyonunu çözdüğünü keşfetmiştir [44, 45].
İki çalışmanın ilki Barton grubundan geldi ve TLR ifadesinin çeşitli düzeylerde organizasyonunu ortaya çıkardı. Grup, sırasıyla TLR2, 4, 5, 7 ve 9'un ekspresyon analizini sağlayan beş raportör fare suşu üretti. TLR2 ve 5 ince bağırsakta ve proksimal kolonda eksprese edildi, TLR4 kolonda eksprese edildi ve TLR7 ve 9 eksprese edilmedi. Bu farelerden alınan organoidlerdeki raportör ekspresyonu, in vivo ekspresyonu yakından taklit ederek, ekspresyonun mikrobiyota veya immün hücrelerle temastan bağımsız olduğunu gösterir [45].
İkinci çalışma, GI yolunun farklı bölümlerini kapsayan taze üretilmiş insan ve murin organoidlerinden oluşan bir biyo-banka kullandı: korpus, pilor, duodenum, jejunum, ileum ve kolon. Organoidlerin transkripsiyonel analizi, Barton grubu tarafından bildirilen TLR'ler için ifade modellerini doğruladı, ancak buna ek olarak, TLR'lerin, NLR'lerin, iltihaplı bileşenlerin ve diğer doğuştan gelen bağışıklıkla ilgili genlerin geniş ölçüde farklı ifadesini ortaya çıkardı (Şekil 3 ve [44] ]). Örneğin, Nod2 esas olarak midede ifade edilirken, Nlrp1b, Nlrp6 ve Aim2 gibi birkaç iltihaplı yol bileşeninin ifadeleri bağırsakla sınırlıydı. Çeşitli reseptörler tek biçimli olarak ifade edildi; örneğin, murin GI yolunun her segmentinde Tlr3 ekspresyonu yüksek miktarlarda tespit edilirken, Tlr5 her segmentte ancak düşük miktarlarda eksprese edildi [44]. Sonuç olarak, her bir segmentin doğuştan gelen bağışıklık reseptörleri ve sinyal bileşenlerinden oluşan kendine özgü bir tamamlayıcısı olduğu görülmektedir.
Sıçangil ile insan gastrointestinal organoidlerinin karşılaştırılması, her iki türde de PRR sinyalleme bileşenlerinin karmaşık organizasyonu ilkesinin aynı olduğunu, ancak bireysel PRR ekspresyon profillerinin farklı olabileceğini gösterdi. TLR4 ve NLRP6 gibi bazı PRR'ler, her iki türün GI yolu boyunca benzer şekilde modellenmiştir. TLR4, ağırlıklı olarak mide ve kolonda eksprese edildi ve NLRP6 ekspresyonu, bağırsak segmentleriyle sınırlıydı. Öte yandan, TLR1 ve TLR2 gibi birkaç PRR, her iki tür arasında farklılık gösteren modeller gösterdi. Fare organoidlerinde, her ikisinin de ifadesi GI yolu boyunca artmış ve kolonda en yüksek iken, insan organoidlerinde ifadesi midede en yüksek ve GI yolu boyunca azalmıştır [44]. Ayrıca, TLR5 ekspresyonu insan organoidlerinde daha yüksekti ve en yüksek seviyeler midede gözlendi [44].
Yukarıda bahsedildiği gibi, organoidler aynı zamanda belirli bir yolun fonksiyonel olup olmadığının ligandın eklenmesi ve ardından akış aşağı hedef gen ekspresyonunun analizi ile test edilmesine olanak tanır. Bölgeye özgü ekspresyon analizini tamamlayan çalışma, insan ve fare organoidlerinin bölgeye özgü işlev gösterdiğini de buldu: fare midesi, TLR4 ligandı LPS'ye yanıt verdi, ancak TLR2 ligandı PAM3CSK4 veya TLR5 ligandı flagellini NF- κB hedef geni Cxcl2. Murin jejunum, Cxcl2'yi PAM3CSK4 ve flagelline yanıt olarak artırdı, ancak LPS'ye yanıt olarak düzenlemedi. Ek olarak, kolon, test edilen bu 3 ligandın hepsine yanıt olarak Cxcl2'yi eksprese etti [44]. Buna karşılık, tüm bölgelerdeki insan organoidleri, flagelline yanıt olarak insan Cxcl2 analoğu IL-8 ifade etti, ancak LPS ve PAM3CSK'ye yanıt olarak ifade etmedi [44]. Bu nedenle, PRR'lerin bağırsaktaki ifadesinin yanı sıra işlevi de oldukça organize ve segmente özgüdür. Bu deneyler, organoid ortama uyarıcı eklenerek gerçekleştirildi, böylece apikal taraf organoidlerin kapalı lümenine baktığından, yalnızca bazal taraf uyarıldı. Diğer deneyler, bir segment içindeki PRR ifadesinin belirli hücre tipleriyle veya hatta yalnızca bazal bölme gibi hücre altı konumlarla sınırlandırılabileceğinden, daha da yüksek bir organizasyon seviyesi olduğunu göstermiştir. Bunlar aşağıda daha ayrıntılı olarak özetlenmiştir.
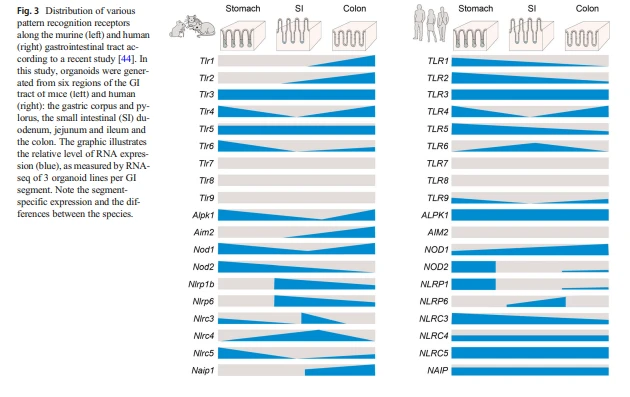
GI yolunun her bölgesi, kendine özgü doğuştan gelen bağışıklık genleri setini ifade eder. Bir genelleme yapmak zor olsa da, mevcut veriler, TLR'lerin en yüksek oranda mide ve kolonda eksprese edildiğini, ince bağırsağın ise enflamasyon bileşenlerinin ekspresyonu ile karakterize edildiğini göstermektedir. Şu anda, altta yatan moleküler mekanizma ve evrimsel fayda belirsizdir.
Farklı bağırsak segmentlerindeki epitel katmanlarını kaplayan fiziksel ve kimyasal engellerin her birinin belirli tehditlerin izlenmesini gerektirdiğinden şüpheleniyoruz. Örneğin, mide ve kolonun her ikisi de iki katmanlı, kalın bir mukus tabakasına sahiptir ve iç mukus tabakası epitel tabakasına sıkıca tutunurken, ince bağırsak ince, viskoz bir mukus tabakası ile kaplıdır [46]. Mukus katmanlarının farklı yapıları, ilgili bağırsak segmentlerinin farklı işlevlerinden kaynaklanmaktadır (sindirim, besin alımı ve su emilimi). Mukus kalınlığının, belirli bölgelerde gerekli olan PRR tipini etkilediği düşünülebilir.
Epitelde bağışıklık fonksiyonuna sahip özelleşmiş hücreler
Epitelyal doğal bağışıklıkta uzun süredir devam eden bir kavram, hücre tipine özgü doğal bağışıklık tanımanın varlığıdır. Savunma işlevine sahip özelleşmiş epitel hücrelerinin prototipleri, mikrokat (M) hücreleri ve Paneth hücreleridir - yakın zamanda özel bir goblet hücresi olan sentinel goblet hücresi ile tamamlanmıştır. Bu tür özel hücrelerin varlığı, besin alımının dengesini, mikrobiyota ile bir arada yaşamayı ve olası istilacıların izlenmesini sağlayan karmaşık ve gereksiz sistemlerin altını çizer. Organoidlerin yönlendirilmiş farklılaşması artık bu hücrelerin hücre kültüründe incelenmesine de izin veriyor.
M hücreleri, Peyer yamalarını örten folikülle ilişkili epitelde bulunur. Düzensiz fırça kenarları ve azaltılmış mikrovillus yapıları ile benzersiz bir morfolojiye sahiptirler. Rolleri, immün yanıtların düzenlenmesi için bağırsak lümenindeki antijenleri epitel tabakası boyunca altta yatan lenfoid dokuya taşımaktır [47]. M hücrelerinin kendilerinin yanı sıra folikülle ilişkili epitelin birkaç TLR ifade ettiği gösterilmiştir [48] ([14]'te gözden geçirilmiştir). Bununla birlikte, epitel dokusunda çok fazla bulunmadığından ve sadece Peyer'in yamalarının karmaşık yapısının yakınında bulunduğundan, M hücrelerinin çalışılması zor olmuştur [47]. Bununla birlikte, M hücreleri, yönlendirilmiş farklılaşma kullanılarak organoid kültürlerde üretilebilir. Bunun için, NF-κB ligandının (RANKL) reseptör aktivatörü, M hücre farklılaşmasının özelliği olan SpiB transkripsiyon faktörünü yukarı regüle eden ortama eklenir [49]. NF-κB alt birimi RelB için genetik olarak eksik olan farelerden üretilen organoidler, RANKL ile stimülasyondan sonra M hücreleri üretemez, bu da NF-κB aktivasyonunun M hücrelerinin gelişimi için gerekli olduğunu gösterir [50]. İnsan organoid kültüründe, RANKL'ye ek olarak, lenfotoksin ve retinoik asit, M hücrelerine doğru farklılaşmayı tetiklemek için çok önemlidir. Bu M hücreleri spesifik olarak rotavirüs ve reovirüs gibi enterik virüsleri alır, bu da organoid kültürlerde de doğal M hücre fonksiyonunun doğru fenokopiye uğradığını gösterir [51]. Gelecekteki organoid çalışmaları, epitelyal NF-κB sinyalinin, M hücre gelişiminin ve bağışıklık hücreleriyle iletişimin ara bağlantısını çözmeye devam etmek zorunda kalacak.
Paneth hücreleri, mahzenin tabanında bağırsak kök hücreleriyle karışır ve antimikrobiyal peptidler salgıladıkları için uzun süredir kök hücre bölmesinin koruyucuları olarak kabul edilirler. Örneğin, Paneth hücreleri, mikrobiyal modeller ve doğuştan gelen bağışıklık mekanizmaları tarafından düzenlendiği gösterilen bir süreç olan alfa-defensinleri salgılar [52, 53]. Ek olarak, ilk olarak murin ince bağırsağının kript bölgesinde saptanan NOD2 [54], Paneth hücreleri tarafından çeşitli alfa-defensinlerin salgılanmasını düzenler ve bu da adaptif bağışıklığın aktivasyonuna yol açar. Paneth hücreleri ayrıca TLR5'i ifade eder ve Paneth hücresi bakımından zenginleştirilmiş organoidler, özellikle yüksek seviyelerde TLR5 ifade eder. Stimülasyondan sonra RNA dizilimi, normal ince bağırsak organoidlerinin, NF-kB ile indüklenen sitokinler gibi flagellin ile stimülasyona yanıt olarak TLR5 aşağı akış hedef genlerini yalnızca orta düzeylerde ifade ederken, yüksek sayıda Paneth hücresi içerecek şekilde yönlendirilen organoidlerin çok daha güçlü bir bağ oluşturduğunu ortaya koymaktadır. Paneth hücrelerinin ince bağırsakta flagelline ana yanıt verenler olduğunu gösterir [44, 45]. Hedef gen ekspresyonunun aksine, Paneth hücrelerinin en dramatik tepkisi (degranülasyon, ekstrüzyon ve hücre ölümü), TLR ligandları ile stimülasyon tarafından tetiklenmez, bunun yerine profesyonel immün hücre türevli sitokin interferon-gama ile stimülasyon gerektirir [55]. Organoidlerden elde edilen bu sonuçlar, in vivo interferon-gama stimülasyonundan sonra Paneth hücre degranülasyonunu ve ekstrüzyonunu gösteren gözlemlerle uyum içindedir [55]. Bu, epitel tabakasındaki kontrol ve denge sisteminin altını zarif bir şekilde çizer.

Goblet hücreleri, epitelyal savunma için önemlidir, çünkü epitelyal tabaka üzerinde bir mukus bariyerinin oluşumu için çok önemli olan glikosile müsinleri üretirler ([56]'da gözden geçirilmiştir). Farelerde MUC2 eksikliği spontan enflamasyona neden olur ve enfeksiyona yatkınlığı artırır [57, 58]. Son zamanlarda, fare kolonunda koruyucu goblet hücreleri olarak adlandırılan goblet hücrelerinin bir alt kümesi tanımlanmıştır. Doku eksplantlarını kullanan çalışma, önceki bir Tlr 2 raporuna uygun olarak, TLR1/2, 4 ve 5 ligandlarına maruz kalmaya yanıt olarak mukus tabakasının kalınlaştığını ancak TLR9, NOD1 ve NOD2 ligandlarına [59] maruz kalmadığını belirledi. ,4 ve 5 goblet hücrelerinde ifade edilmektedir [60]. Yazarlar, yanıtın Nlrp6 enflamazomunun varlığına da bağlı olduğunu ve bir dizi nakavt fareden alınan dokuları kullanarak mukozal lenfositlerden bağımsız olduğunu belirlediler [59]. Ayrıca, önceki bir rapor goblet hücreleri tarafından mukus salgılanması için NLRP6 enflamasomunun önemini göstermiştir [61]. Görüntüleme, crypt'in apikal bölgelerinde yer alan spesifik goblet hücrelerinin LPS'yi floresan olarak işaretlediğini [59] ortaya çıkardı. Bu yeni adlandırılan sentinel goblet hücreleri, TLR ligandları ile tedaviden sonra yalnızca hızlı degranülasyona ve epitelyal atılmaya uğramakla kalmaz, aynı zamanda boşluk bağlantılarının oluşturduğu hücreler arası sitoplazmik köprüler aracılığıyla komşu hücrelere bir kalsiyum sinyali iletir ve muhtemelen mukus salgısını artırmak için diğer goblet hücrelerini uyarır [59]. . Hem goblet hücreleri hem de Paneth hücreleri salgı soyuna aittir. Organoidler, her iki hücre kimliğine yönelik yönlendirilmiş farklılaşmaya izin vererek, goblet hücrelerinde veya Paneth hücrelerinde büyük ölçüde zenginleştirilmiş organoidler verir [62]. Bu çarpık organoidlerin transkriptomlarının karşılaştırılması, farklılaşma yolunun ana düzenleyicilerinin belirlenmesine yardımcı oldu [63]. Bu organoidlerin fonksiyonel analizinin yanı sıra omik verilerinin daha fazla analizi, her iki hücre tipinin doğuştan gelen bağışıklık savunmasındaki rolünün daha iyi anlaşılmasını sağlayacaktır.
Son olarak, kök hücrelerin kendilerinin de TLR4 [64, 65] gibi spesifik PRR'leri eksprese ettiği bildirilmiştir, bunlar murin ince bağırsak villuslarında veya Paneth hücrelerinde bulunmaz [66]. Ek olarak, murin mahzenindeki Nod2 ifadesinin çoğunluğunun kök hücrelerle sınırlı olduğu görülmektedir [67]. NOD2 ligandı ile stimülasyon, kök hücrelerin hayatta kalmasını ve organoidlerin oluşumunu arttırdı; bu, PRR'lerin stimülasyonunun bağırsak epitelyal rejenerasyonunu da doğrudan düzenleyebileceğini gösterir.
Hiç şüphesiz, her hücre tipini daha ayrıntılı olarak kapsayan gen ekspresyonu atlasları oluşturmaya yönelik mevcut çabalar, yakında tüm vücutta olduğu gibi bağırsakta da doğuştan gelen immün sinyallemenin hücresel organizasyonunun daha eksiksiz bir resmini verecektir [68-71 ].
Hücre polaritesi ve tarafa özgü doğuştan gelen bağışıklık tepkileri
Son olarak, gastrointestinal epitel hücrelerinin, mikrobiyotası ile bağırsağın lümenine bakan özel bir apikal tarafı ve dokuya bakan bazolateral tarafı ile oldukça polarize olduğunu düşünmek de önemlidir. Homeostaz altında, MAMP'ler yalnızca apikal tarafa ulaşır. Bununla birlikte, epitel bariyeri aşıldığında, mikroorganizmalar bazolateral tarafa da meydan okuyabilir. Bu nedenle, epitel hücrelerinin, sinyalin oluşturduğu tehdide uyması için yalnızca bazolateral taraftan uyarıldıklarında seçici olarak bir proinflamatuar yanıt oluşturabileceği varsayılmıştır. Örneğin, TLR9'un kanser hücre hatlarında apikal veya bazolateral taraftan uyarıldığında farklı sinyal yollarını indüklediği gösterilmiştir [72] ve TLR5, bazal taraftan uyarıldığında yalnızca NF-κB yanıt geni IL-8'i indüklemiştir [73 ].
TLR'lere karşı antikor etiketleme kullanan daha önceki çalışmalar, yalnızca bir tarafta spesifik ekspresyon bildirirken ([14, 16]'da gözden geçirildi), bir HA etiketinin boyanması kullanılarak TLR raportör farelerin analizi bunu doğrulamadı, bunun yerine TLR2, 4 ve 5'i gösterdi. proksimal kolonun hem apikal hem de bazal taraflarındaki reseptörlerin yanı sıra bazı hücre içi TLR4 [45]. Bu belirgin farklılıklar muhtemelen farklı teknik yaklaşımlardan kaynaklanmaktadır.
Hücresel polarizasyon organoidlerde tutulduğu için organoidler artık tarafa özgü bağışıklık tepkilerinin doğrudan fonksiyonel testine izin veriyor. Standart koşullar altında, organoidler hücre dışı bir matriste büyüdüğünde, apikal taraf organoidin lümenine ve bazal taraf hücre dışı matrise bakar [74-76]. Hücre dışı bir matrisin dışında büyüdüğünde, polarite tersine dönebilir [77, 78]. Organoidlerden gelen hücreler, kültür tabakları veya transwelller gibi standart hücre kültürü yüzeylerine ekildiğinde, apikal taraf kuyunun lümenine bakar [44, 79-82].
Birkaç çalışma, apikal ve bazal stimülasyon arasındaki belirli farklılıkları ele almadan belirli PRR'lerin genel işlevini test etmek için organoidleri kullandı. Bu çalışmalar, standart koşullar altında hücrenin bazal tarafını uyaran organoidlerin ortamındaki uyarıyı içeriyordu. Bu teknik kullanılarak, midede TLR4, ince bağırsakta TLR2 ve 3 ve fare kolonunda TLR2, 3, 4 ve 5 ligandları ile bazal stimülasyondan sonra NF-κB aşağı akış hedef genlerinin yukarı regülasyonu tanımlandı [44, 45, 83] ve midede TLR2 ve 5 ligandlarına ve insanın ince bağırsağı ve kolonunda TLR5'e [44]. Ayrıca, kemirgen kolon organoidlerinin TLR4 agonistleri ile bazal stimülasyonu, özellikle salgı soyuna doğru hücresel farklılaşmayı indükler [64], NOD2 agonistleri ise kök hücrelerin hayatta kalma oranını arttırır [67, 84] ve taurin, NLRP6-bağımlı yukarı regülasyonu uyarır enflamasyon aşağı akış hedef geni IL-18 [85]. Tüm bu çalışmalarda apikal stimülasyon test edilmedi.
Sadece birkaç çalışma, PRR'lerin yan-spesifik fonksiyonlarını ele almıştır. Şimdiye kadar polarize kanser hücre hatları kullanan çalışmaların aksine, organoid kullanan çalışmaların hiçbirinin tipik bir NF-κB bağımlı proinflamatuar genin yan spesifik aktivasyonunu tanımlamamış olması dikkat çekicidir. İnsan kolon organoidlerinden türetilen Transwell tek tabakaları, TLR 1/2, 3, 4, 5, 7/8 ve 9 ligandları ile apikal veya bazal taraftan uyarıldığında benzer seviyelerde NF-κB hedef geni IL-6 ifade eder [82]. Murin gastrik organoidleri ayrıca, transwell'ler ve organoidlerin lümenine LPS'nin mikroenjeksiyonu dahil olmak üzere çeşitli analizlerde TLR4 ligandı LPS ile apikal bir stimülasyona yanıt verdi [44]. Mürin ince bağırsak epitel hücreleri, bozulmamış organoidlere eklenip bazal tarafı uyarmalarına veya tek, ayrışmış hücrelere eklenip böylece hepsini uyarmalarına bakılmaksızın, bir dizi ligandlara yanıt olarak NF-κB hedef geni icam1'i ifade etmedi. yanlar [55].
Bununla birlikte, NF-κB yanıtının ötesine bakıldığında, yeni bir çalışma TLR3'ün tarafa özgü bir işlevini ve bunun viral enfeksiyondaki önemini tanımlamıştır [82]. İnsan kolon organoid-türevli tek katmanlarla yapılan deneylerin sonuçları, kritik virüs savunma genleri tip I ve tip III interferonun ekspresyonunun, TLR3 agonisti ile bazal stimülasyondan sonra yukarı regüle edildiğini, ancak diğer TLR agonistleri ile stimülasyondan sonra olmadığını gösterdi. Benzer şekilde, bir virüs bulaştığında, organoidlerin interferon tepkisi, apikal taraftan enfeksiyona kıyasla bazal taraftan enfekte edildiğinde çok daha güçlüydü. Bu, virüsle mikroenjekte edilmiş organoidlerde olduğu kadar organoid türevli tek tabakalarda da görüldü. Çalışma ayrıca klatrin sıralama adaptörü AP-1B'yi TLR3'ün polarize ifadesinden sorumlu molekül olarak tanımladı. Buna karşılık olarak, Ap-1b'den yoksun fareler, viral enfeksiyondan sonra şiddetli bağışıklık tepkileri gösterdi [82]. Bu, PRR'lerin polarize işlevini doğrular ve patojen tanıma ve savunmayı daha fazla modüle etmede bu düzenleme seviyesinin önemini vurgular.
Şimdiye kadar, polarite sorusuna "herkese uyan tek bir boyut" yanıtı yoktur ve PRR sinyalinin bölgeye özgü doğasını çözmek, gelecek için teknik olarak zorlu bir görev olmaya devam etmektedir.
Kolonizasyona bir yanıt ve varsayılan bir gelişim programı olarak hoşgörü
Epitelyal doğal bağışıklığın organizasyonuna katkıda bulunan mekanizmalar hala belirsizdir. Bu konudaki ana kavram, fırsat penceresi olarak adlandırılan doğum sırasında steril bağırsağın kolonizasyonundan sonra toleransın başlatılması olmuştur ([86–88]'de gözden geçirilmiştir). Bu kavram, doğumdan sonra doğuştan gelen ve adaptif bağışıklık sisteminin, bağışıklık homeostazı ve ardından konakçı-mikrobiyal etkileşimler için zemin hazırlayan bir hazırlık dönemini varsayar.
Neonatal bağışıklık sistemi ve epitelyal doğuştan gelen bağışıklık, kısırlıktan mikrobiyota ile bir arada yaşama geçişine hakim olmak için benzersiz bir donanıma sahiptir. Doğumda, insan yenidoğan bağırsağı, bağırsak villusları ve Paneth hücreleri içeren kriptlerle tamamen olgunlaşmıştır. Murin neonatal bağırsak epitel tabakası daha olgunlaşmamıştır ve farklı gelişim aşamalarını karşılaştıran transkriptom düzeyinde ölçülebilir [89] ve doku yapısında ve hücre farklılaşmasında görülebilen dramatik bir değişime uğrar: Kript-villus ekseni henüz oluşmamıştır ve hücre proliferasyonu devam etmektedir. daha düşük, hücre göçü veya pul pul dökülme olmadan. Olgun Paneth hücreleri içermez; bununla birlikte, enterositler katelisidin benzeri antimikrobiyal peptidi (CRAMP) üretir [90]. Paneth hücreleri, doğumdan 2 hafta sonra kriptler oluştuğunda ortaya çıkar [91]. Sütten kesme sırasında, epitel tamamen kriptler ve villuslar, enterositler, goblet hücreleri ve enteroendokrin hücreler ile oluşur; Paneth hücreleri, antimikrobiyal peptit üretimini devraldı; ve goblet hücreleri, mukus tabakasını oluşturmak için müsin üretimini arttırmıştır ([92]'de gözden geçirilmiştir).
Epitelin bu yaşa bağlı geçişi, ince bağırsak epitelindeki TLR5 ekspresyonunun kademeli olarak azalmasıyla el ele gider. Aynı zamanda, yenidoğan döneminde TLR3'ün ifadesi artar. TLR2, 4 ve 9 gibi diğer PRR'ler, yenidoğan ve yetişkin farelerde benzer seviyelerde ifade edilir [45, 93].
Doğumdan sonra PRR ifadesinin ve işlevinin düzenlenmesine yol açan mekanizmalar belirsizliğini koruyor. Yukarıda bahsedildiği gibi, birkaç çalışma çevrenin, özellikle mikrobiyal kolonizasyonun doğumdan sonra PRR ifadesinin düzenlenmesine katkısını önermiştir [40, 41] ([14]'te gözden geçirilmiştir). Bununla birlikte, mikropsuz ve spesifik patojensiz fareler, ince bağırsakta veya kolonda TLR ekspresyonunda farklılıklar göstermedi; bu, bu erken dönemde TLR3'ün yukarı regülasyonunun veya TLR5'in regülasyonunun mikrobiyotaya bağlı olmadığını gösterir [45, 93]. Ayrıca, organoidlerde, PRR sinyal bileşenlerinin hepsinin olmasa da birçoğunun ifadesi, mikrobiyal ürünlerle hiç temas etmemiş dokulardan alınan organoidlerde zaten tanımlanmıştı [44]. Bu, doğuştan gelen bağışıklık sinyal yollarının organizasyonunun büyük bir bölümünün mikrobiyota ile temastan bağımsız olarak tanımlandığını ve yukarıda ana hatları çizilenler gibi, GI yolu boyunca genel doku kimliğini şekillendiren varsayılan gelişimsel süreçler tarafından belirlendiğini gösterir. . Bu, yetişkinlik döneminde çevresel faktörler tarafından PRR ifadesinin daha fazla ince ayarını dışlamaz.
Epitelyal mikrobiyal etkileşimlerin zamanında düzenlenmesinin önemi, olgunlaşmamış epitel mikrobiyal kolonizasyonla erken karşılaştığında netleşir: preterm bebekler, bağırsak nekrozu, sistemik sepsis ve çoklu organ ile karakterize edilen nekrotizan enterokolit (NEC) gelişimine yatkındır. arıza. Patogenezin çok faktörlü olduğu düşünülse de, birkaç çalışma erken bağırsakta proinflamatuar sinyalleme ve onarım mekanizmaları arasındaki bir dengesizliğe yanıt olarak geliştiğini göstermiştir ([94]'te gözden geçirilmiştir) ve PRR'lerin katkısı önerilmiştir [41, 65, 95 –97]. Birçok çalışmada insan fetal organoidleri [24, 98, 99], NEC'yi modellemek için bakteri ve hipoksiye maruz kalan normal fare organoidleri [100] veya NEC hastalarının yanı sıra fare NEC modelinden organoidler kullanılmıştır [101]. Gelecekteki çalışmalar, epitelin NEC'ye katkısını daha fazla tanımlamak için bu yerleşik ve yeni organoid modelleri kullanacaktır.
IBD'nin epitel bağımlı yönlerini organoidlerle modelleme
Bağırsak epitel bariyer bütünlüğünün kaybı, IBD'nin, yani CD ve UC'nin tanımlayıcı bir özelliğidir ve genetik yatkınlığın, çevresel faktörlerin, bağırsak mikrobiyotasındaki değişikliklerin ve yerel ve sistemik bağışıklık tepkisindeki değişikliklerin çok faktörlü etkileşiminden kaynaklanıyor gibi görünmektedir (incelendi) [27]). Mevcut terapötikler ağırlıklı olarak IBD'de yüksek oranda yanıt vermeyenler ve yan etkilerle ilişkili ([27]'de gözden geçirilmiştir) bağışıklık yanıtlarını hedefler. Bağırsak epitel bariyer restorasyonunu ve dolayısıyla mukozal iyileşmeyi doğrudan etkileyebilecek yeni terapötik hedefleri belirlemek için IBD'nin patofizyolojisine epitele özgü katkının daha iyi anlaşılması gerekir.
Epitelyal patoloji hakkında bilgi edinmek için, birkaç grup, UC veya CD'li bireysel hastalardan üretilen organoidlerden oluşan canlı biyo-bankalar kurmuştur. Bu yaklaşım bariz olmasına rağmen, şu ana kadar sadece birkaç çalışma bu hasta grubundan elde edilen organoidlerden elde edilen sonuçları bildirmiştir [102-104]. Bu, IBD'li hastalardan alınan organoidlerin üretilmesinin daha zor olduğu gözlemiyle açıklanabilir. Kendi deneyimlerimize göre, CD hastalarından üretilen organoidler ilk pasajlar sırasında daha yavaş büyüyor ve bazı numuneler kayboluyor; bu, kültürlerde daha yüksek bakteriyel kontaminasyon oranıyla ilişkilendiriliyor [105].
IBD'li hastalardan elde edilen organoidlerin karakterizasyonu, azalmış boyut ve tomurcuklanma kapasitesi, artan hücre ölümü oranı, lümen birikintisi ve epitel hücrelerinin kısmen ters polarizasyonu olan bir fenotip ortaya çıkardı [106]. UC veya CD hastalarından ve sağlıklı kontrollerden alınan organoidlerin genel karşılaştırması, bağırsak epitelinde görülen transkripsiyonel ve metilasyon farklılıklarının in vitro olarak korunduğunu göstermiştir [102, 103, 107]. Ayrıca, CD'li hastalardan elde edilen organoidlerden yapılan daha önceki bir çalışma, IBD'de bağırsak kök hücrelerinde kalıcı değişiklikler olduğunu öne sürdü. Bu, aktif CD lezyonlarından üretilen organoidlerin bağırsak epitelyal kök hücre belirteçlerinin yüksek ekspresyon seviyelerini koruduğu gözlemine dayanıyordu [108]. Bu, pediatrik IBD hastalarından türetilen kolon organoidlerinin, antijen sunan genlerin uzun süreli ekspresyon modelini gösterdiği yakın tarihli bir çalışmada bir dereceye kadar doğrulanmıştır [109].
Genellikle IBD'de [110] bulunan sıkı bağlantıların ve dezmozomların kaybı dahil olmak üzere bağırsak epitel bariyer fonksiyonundaki değişikliklere odaklanarak, CD hastalarından alınan organoidlerin, kültür koşulları altında bu bağlantısal değişiklik fenotipini koruduğu gösterilmiştir [105]. Bu, özellikle şiddetli inflamasyon bölgelerinden organoidler üretildiğinde durum böyleydi [105]. Proinflamatuvar sitokin TNF- ve/veya IFN- [106, 111] uygulanarak sağlıklı donörlerden alınan organoidlerde bağlantı proteinlerinde bir azalma da indüklenebilir. Bununla birlikte, IBD'li hastalardan alınan organoidlerdeki birleşme proteinlerindeki sabit değişiklik modeli, yalnızca protein seviyesinde gözlendi, ancak mRNA seviyesinde gözlenmedi [105].
Bu gözlemler, IBD hastalarından organoidlerde birkaç değişikliğin sabitlendiğini göstermektedir. Kalıcı değişikliklerin hepsinin olmasa da bazılarının yalnızca protein üzerinde görülebildiği, ancak RNA düzeyinde görülmediği gözlemi, IBD hastalarından alınan organoidlerde transkripsiyon sonrası modifikasyonlarda veya protein bozulmasında kalıcı değişiklikler olduğunu düşündürür. Ancak bu, ayrıntılı olarak araştırılmaya devam ediyor.
İltihaplı epitelyumun ifade modellerindeki kalıcı değişiklikleri tam olarak neyin tetiklediği belirsizdir. Mikrobiyotanın bir etkisinden uzun süredir şüpheleniliyordu; ancak yakın tarihli bir çalışma, mikrobiyotanın epitelyum üzerindeki etkisinin zamanla kaybolduğunu göstermiştir [112]. Çalışma, fare kolonilerinin farklı mikrobiyom bileşimlerinin in vivo çalışmalarda kafa karıştırıcı faktörler olarak tanımlanması nedeniyle birkaç fare tesisini karşılaştırdı. Bu etkiyi açıklığa kavuşturmak için çalışma, mikropsuz farelerden alınan epitelyal izolatları ve organoid kültürleri ve farklı mikrobiyotaya sahip iki ayrı spesifik patojen içermeyen fare kolonisini karşılaştırdı. Yeni izole edilmiş epitel, RNA ve protein seviyeleri üzerinde mikrobiyota maruziyetinin bir izini gösterirken, bu etki ince bağırsak organoidlerinin kültüründen birkaç hafta sonra kayboldu [112]. Ayrıca, aynı IBD hastalarının enflamasyonlu veya enflamasyonsuz bölgelerinden üretilen organoidlerin gen ekspresyonunun genel bir karşılaştırması, enflamasyonlu bölgelerin IBD organoidlerinin, kültürde birkaç hafta sonra enflamatuvar gen ekspresyonunu kaybettiğini gösterdi. Organoidlerin transkriptomları daha sonra hasta başına kümelendi; bu nedenle, IBD ve sağlıklı kontroller arasındaki kalıcı farklar devam etti. IBD organoidlerindeki enflamatuar fenotip daha sonra bir sitokin kokteyli eklenerek yeniden indüklenebilir [107]. Genel olarak, bu, IBD hastalarından alınan organoidlerde gözlemlenen kalıcı değişikliklerin mikrobiyota veya sitokinlerle temastan bağımsız olduğunu göstermektedir.
Bu nedenle, IBD hastalarının bağırsak epitel hücrelerindeki bazı kalıcı değişikliklerin doğuştan gelen bağışıklık sinyallemesindeki değişikliklerden kaynaklanabileceğini tahmin etmek makul olsa da, bunun kanıtı şu anda azdır. Ek olarak, bağırsakta iltihaplı bölgelerde gözlenen epitel değişikliklerinin tümü, saflaştırılmış epitelde kalıcı olarak korunmaz, bu da yerel çevrenin önemli katkılarını gösterir. Gelecekte, bağışıklık hücrelerini, inflamatuar sitokin stimülasyonunu ve mikroorganizmalarla ortak kültürleri de içeren daha karmaşık organoid modelleri ile yeni çalışmalar, bu hipotezi daha ayrıntılı olarak ele almaya yardımcı olacaktır.
Sonuçlar, gelecek perspektifleri ve Genel Görünüm
Özet olarak, GI sistemdeki birçok hastalık tam olarak anlaşılmamış olsa da, artan kanıtlar, gastrointestinal epitelyumun çoğunun patogenezinde kritik bir rolü olduğuna işaret etmektedir - ancak spesifik rolü belirsizliğini korumaktadır.
Gastrointestinal epitelin doğuştan gelen bağışıklık fonksiyonuna ilişkin sınırlı bilgi, uygun deneysel modellerin eksikliğine bağlanmıştır. Organoid teknolojisinin hayata geçirilmesiyle bu sorunun aşılması için önemli bir adım atılmıştır. Gastrointestinal sistemin her bölgesinden üretilen organoidler, mevcut bilgilere önemli ölçüde katkıda bulunacaktır. Daha önceki çalışmalarda ortaya konulduğu gibi, organoidlerin üretilmesi, çoğunlukla gastrointestinal habis tümörlerden üretilen dönüştürülmüş hücre çizgilerinin aksine, birincil gastrointestinal hücrelerin tepkilerini gözlemleyebilmenin çok önemli bir avantajını sağlar. Organoidlerin en büyüleyici özelliklerinden biri, yetişkinlik döneminde hücre kimliklerinin bir parçası olarak üretildikleri gastrointestinal sistem segmentinin belirli özelliklerini korumalarıdır. Mevcut deneysel çalışmalara göre, gastrointestinal kök hücrelerde bölgesel kimlik sabittir. Bu bağlamda, geriye kalan bir konu, geliştirme sırasında bu içsel programlamanın tam olarak nasıl ve ne zaman gerçekleştiğini belirlemek olacaktır.
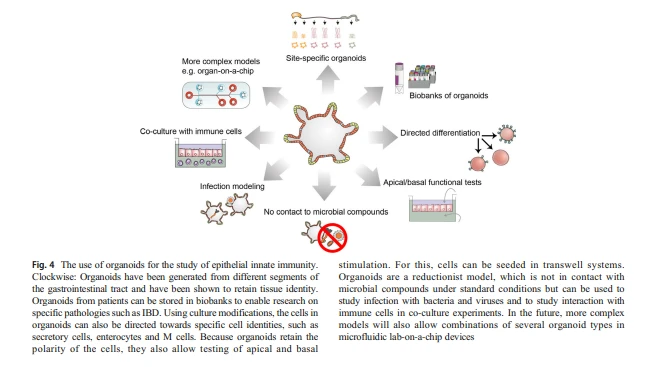
Epitelin çevreye nasıl tepki verebileceğine veya çevreyle nasıl etkileşime girebileceğine ilişkin belirli kavramlara bakıldığında, organoid teknolojisi artık gastrointestinal epitel içindeki PRR'lerin diferansiyel ve segmente özgü ekspresyonunun ve işlevinin aydınlatılmasını sağlamıştır. Tüm gastrointestinal sistemdeki karmaşık düzenleyici sistemler için genel fonksiyonel sonuçlar hala belirsizdir ve gelecekte ele alınması gerekecektir. Bunun için organoidlerin immün hücreler ([113]'te gözden geçirilmiştir), enterik sinir sistemi hücreleri [114] ve bakteriyel ortak kültürler ([115]'te gözden geçirilmiştir) gibi lümen faktörleri ile birlikte kültürlenmesi de önemli olacaktır (Şekil 4).
Bir başka önemli husus, IBD gibi GI hastalıklardan etkilenen hasta dokusundan üretilen organoidlerin, türetildikleri karşılık gelen doku numunelerinde görülen bazı özellikleri muhafaza etmeleridir. Bu, GI hastalıklarının patogenezine epitel ve hastalığa özgü katkıyı daha fazla ortaya çıkarmak için benzersiz bir olanak sunar - yalnızca iltihaplanma kaynaklı değişiklikleri içerenler değil, aynı zamanda habis hastalıklardaki değişiklikleri içerenler. Her ikisinin de epitelden türetilen doğal bağışıklığın belirli bir katkısını içerdiği ortaya çıkabilir. Bunun için sistematik olarak "yaşayan biyobankaların" kurulması önemli bir adım olacaktır. Gelecek için bir vizyon olarak, bu tür canlı biyobankalar, şu anda yalnızca "ölü" biyomateryaller sağlayan halihazırda var olan biyobankalara eklenebilir. Bu, yalnızca araştırma için değil, aynı zamanda hastalar için bireyselleştirilmiş teşhis ve tedaviyi kolaylaştırmada da önemli bir adımı temsil edecektir.
Kutu 1. Doğuştan gelen bağışıklık ve GI kanalındaki epitel hücreleri, gözlemlenen etkinin epitel hücrelerindeki veya profesyonel bağışıklık hücrelerindeki doğuştan gelen bağışıklık sinyallemesinden mi kaynaklandığı net değildir.
Profesyonel bağışıklık hücrelerinin ve epitel hücrelerinin etkileşimini çözmek için, birkaç çalışmada epitele özgü nakavtlar veya daha yakın zamanda epitelyal organoidler kullanılmıştır. Fare modellerinde, PRR'lerin epitelyal spesifik delesyonlarının hiçbiri spontan inflamasyona yol açmaz. Bununla birlikte, MyD88'in epitelyal-spesifik nakavt olduğu fareler, deneysel kolite karşı daha duyarlıdır ve ciddi bariyer bozulması, bozulmuş goblet ve Paneth hücre tepkileri [121] ve müsin ve antimikrobiyal peptitlerin üretiminin azalması [121, 122] gösterir. İnce bağırsak organoidleri, birkaç saflaştırılmış PRR ligandına [55] enflamatuar bir yanıt oluşturmaz, ancak bu genelleştirilemez ve organoidlerin üretildiği dokunun türüne, konumuna ve yaşına bağlıdır [44, 45].
Epitel hücresine özgü PRR nakavt modellerinde spontan inflamatuar bir fenotipin bulunmaması, epitelin genel inflamatuar yanıtı dışındaki faktörlerin epitelyal homeostaz üzerinde bir etkiye sahip olduğu hipotezini destekler. Örneğin, NOD2 agonisti muramyl dipeptid (MDP) ile stimülasyon, izole edilmiş kök hücrelerden büyüyen organoidlerin sayısını arttırdı, bu da doğuştan gelen bağışıklık sinyalinin kök hücrelerin hayatta kalmasını desteklediğini gösteriyor [67, 84]. Ayrıca, farelerden elde edilen veriler, TNF- [123] gibi diğer uyaranlara yanıt olarak NF-κB sinyalinin anti-apoptotik etkilerinin önemini vurgulamaktadır. İlginç bir şekilde, insanlarda, NOD2 ve TLR4 dahil olmak üzere doğuştan gelen bağışıklık genlerindeki polimorfizmler, artan IBD geliştirme riski ile ilişkilidir [124] ve TNF-'nin bloke edilmesi, şu anda bazı hastalarda IBD için en etkili tedavidir ([125]'te gözden geçirilmiştir).
Mukus sekresyonu, bariyer bütünlüğü ve epitel hücre sağkalımı için düşük düzeyde doğal immün stimülasyonun önemli olduğu bir tablo ortaya çıkar. Bozulması, bağırsak bakterilerinin lümenden subepitelyal dokuya translokasyonuna izin vererek iltihaplanmaya yol açabilir.

teşekkürler
Çizimlerdeki yardımları için Ömer Kaya'ya ve düzenleme için Rike Zietlow'a teşekkür ederiz.
yazar katkısı
Fikir: SB Başlangıç konsepti: SB ve Ö.K.; literatür taraması: Ö.K., NS ve SB; İlk taslak: Ö.K. Gözden geçirme, yeniden yazma, bölümleri ekleme: NS, SB Tüm yazarlar son taslağı eleştirel bir şekilde gözden geçirdi.
Finansman
Projekt DEAL tarafından etkinleştirilen ve düzenlenen Açık Erişim finansmanı. Bu çalışma, Deutsche Forschungsgemeinschaft (DFG GRK 2157; 3D Tissue Models for Studying Microbial Infections by Human Pathogens, Project 10, to SB), Disiplinlerarası Klinik Araştırma Merkezi (IZKF; www.med.uni-wuerzburg.de/izkf) tarafından desteklenmiştir. /startseite) Würzburg'da (NS ve SB'ye AD-427 verin) ve NS'ye DFG SPP1982 SCHL1962/5-2 verin.
Beyannameler
Çıkar çatışması
Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.
Açık Erişim
Bu makale Creative Commons Atıf 4.0 Uluslararası Lisansı altında lisanslanmıştır; bu Lisans orijinal yazar(lar)a uygun şekilde atıfta bulunduğunuz sürece herhangi bir ortam veya formatta kullanıma, paylaşıma, uyarlamaya, dağıtıma ve çoğaltmaya izin verir. ) ve kaynak, Creative Commons lisansına bir bağlantı sağlayın ve değişiklik yapılıp yapılmadığını belirtin. Bu makaledeki resimler veya diğer üçüncü şahıs materyalleri, materyalin kredi limitinde aksi belirtilmedikçe, makalenin Creative Commons lisansına dahil edilmiştir. Materyal, makalenin Creative Commons lisansına dahil değilse ve kullanım amacınız yasal düzenleme tarafından izin verilmiyorsa veya izin verilen kullanımı aşıyorsa, doğrudan telif hakkı sahibinden izin almanız gerekir.
Referanslar
1. Goodwin CS (1984) Mikroplar ve bağırsak enfeksiyonları
2. Sekirov I, Russell SL, Antunes LCM, Finlay BB (2010) Sağlık ve hastalıkta bağırsak mikrobiyotası. Physiol Rev 90:859–904
3. Simon GL, Gorbach SL (1986) İnsan bağırsak mikroflorası. Dig Dis Sci 31:147S–162S
4. Bartfeld S, Clevers H (2017) Kök hücre kaynaklı organoidler ve bunların tıbbi araştırma ve hasta tedavisine yönelik uygulamaları. J Mol Med:1–10. https://doi.org/10.1007/s00109-017-1531-7
5. Barker N (2014) Yetişkin bağırsak kök hücreleri: epitelyal homeostaz ve rejenerasyonun kritik itici güçleri. Nat Rev Mol Cell Biol 15:19–33
6. Bartfeld S, Koo BK (2017) Yetişkin mide kök hücreleri ve nişleri. Wiley Interdiscip Rev Dev Biol 6:e261. https://doi.org/ 10.1002/wdev.261
7. Liwinski T, Zheng D, Elinav E (2020) Mikrobiyom ve sitozolik doğuştan gelen bağışıklık reseptörleri. İmmunol Rev 297:1–18
8. Burgueño JF, Abreu MT (2020) Epitelial Toll benzeri reseptörler ve bağırsak homeostazı ve hastalığındaki rolleri. Nat Rev Gastroenterol Hepatol 17:263–278
9. Christian S, Kanneganti TD (2020) Enflamasyonlar ve savunma ile hastalık arasındaki ince çizgi. Curr Opin Immunol 62:39–44
10. Ying L, Ferrero RL (2019) Helicobacter pylori'ye karşı doğal bağışıklıkta NOD1 ve ALPK1/TIFA sinyalinin rolü. Enfeksiyon s:159–177
11. Takeuchi O, Akira S (2010) Örüntü tanıma reseptörleri ve iltihaplanma. Hücre 140:805–820
12. Peterson LW, Artis D (2014) Bağırsak epitel hücreleri: bariyer işlevi ve bağışıklık homeostazının düzenleyicileri. Nat Rev Immunol 14:141–153
13. Pott J, Hornef M (2012) Homeostaz ve hastalıkta bağırsak epitelinde doğuştan gelen bağışıklık sinyali. EMBO Temsilcisi 13:684–698
14. Abreu MT (2010) Bağırsak epitelinde Toll benzeri reseptör sinyali: bakteri tanımanın bağırsak işlevini nasıl şekillendirdiği. Nat Rev İmmunol 10:131–144
15. Zhang K, Hornef MW, Dupont A (2015) Bağırsak bariyer bütünlüğünün koruyucusu olarak bağırsak epiteli. Hücre Mikrobiol 17:1561–1569
16. Yu S, Gao N (2015) Bağışıklık gözetimi için bağırsak epitel hücresi toll benzeri reseptörleri bölümlere ayırma. Cell Mol Life Sci 72: 3343–3353
17. Zhou P, She Y, Dong N, Li P, He H, Borio A, Wu Q, Lu S, Ding X, Cao Y, Xu Y, Gao W, Dong M, Ding J, Wang DC, Zamyatina A, Shao F (2018) Alfa kinaz 1, bakteriyel ADP-heptoz için sitozolik doğuştan gelen bir bağışıklık reseptörüdür. Doğa. 561:122–126
18. Milivojevic M, Dangeard AS, Kasper CA, Tschon T, Emmenlauer M, Pique C, Schnupf P, Guignot J, Arrieumerlou C (2017) ALPK1, heptoza karşı 6-bağımlı doğuştan gelen TIFA/TRAF bağışıklığını kontrol eder{{5} },7-gram-negatif bakterilerin bifosfatı. PLoS Pathog 13:e1006224. https://doi.org/10.1371/journal.ppat. 1006224
19. Zimmermann S, Pfannkuch L, Al-Zeer MA ve diğerleri (2017) ALPK1- ve helicobacter pylori tip IV salgılama sistemi tarafından tetiklenen TIFA'ya bağlı doğuştan gelen bağışıklık tepkisi. Hücre Rep 20:2384–2395
20. Abreu MT, Fukata M, Arditi M (2005) Sağlıkta ve hastalıkta bağırsakta TLR sinyali. J Immunol 174:4453–4460 174/8/4453 [pii]
For more information:1950477648nn@gamil.com


