COVID-19 Patogenezinde Doğuştan Bağışıklık, Enflamasyon Aktivasyonu ve Isı Şoku Proteini
Mar 03, 2023
SOYUT
SARS-CoV-2-kaynaklı COVID-19, 21. yüzyılın ciddi bir salgınıdır ve yıkıcı bir can kaybına ve küresel bir ekonomik felakete neden olmuştur. SARS-CoV-2'ye karşı başarılı bir aşı, etki mekanizmaları hakkında önemli bilgi eksikliği nedeniyle gecikme yaşadı. SARS-CoV-2'ye karşı doğuştan gelen bağışıklık sistemini ve ısı şoku proteinlerinin (HSP) iltihaplanma yollarının engellenmesi ve çözülmesindeki rolünü anlamak, Afrika'daki düşük SARS-CoV-2 ölüm oranları hakkında bilgi sağlayabilir.
Ayrıca, SARS-CoV-2 dahil olmak üzere farklı virüslere ev sahipliği yapan yarasalar, hiçbir hastalık belirtisi veya proinflamatuar sitokin fırtınası göstermeyen, iyi uzmanlaşmış bir IFN-doğuştan antiviral inflamatuar yanıta sahiptir. Doğuştan gelen bağışıklık, iltihaplanma ve HSP yanıtlarına odaklanarak COVID-19'deki moleküler yolları tartışıyor ve terapötik hedefler için uygun adaylar ve doğuştan gelen bağışıklık sisteminin mRNA veya vektör tabanlı Corona'nın etkinliğine katkısı öneriyoruz. bağışıklamalar.
Cistanche ürününü ne zaman alacağınızı tıklayın
For more information:1950477648nn@gmail.com
1. Giriş
1.1. Korona virüs
Bildirilen ilk yeni koronavirüs (CoV) vakaları, Wuhan Şehri/Çin'deki Huanan deniz ürünleri pazarında meydana geldi ve burada az sayıda kişide şiddetli akut solunum sendromuna (SARS) yol açan bilinmeyen pnömoni tespit edildi (Zhu ve ark. ., 2019). Bu hastalardan alınan solunum örnekleri analiz edildi ve etiyolojik ajanın CoV olduğu belirlendi. Yeni CoV, dünya sağlık örgütü (WHO) tarafından yeni pnömoni bulaşıcı hastalığı, "koronavirüs hastalığı 2019 (COVID-19) veya COVID-SARS-CoV-2" (Novel, 2020) olarak adlandırılmıştır. SARS-CoV-2'nin genel genomik dizi kimliği, yarasalarda bulunan COV-RATG13 ile yüzde 96,2'lik bir uyum gösterdi (Zhou ve diğerleri, 2020b). Küresel istatistiklere göre, Aralık 2019 ile Mayıs 2021 arasında 164.284.766'dan fazla kişi enfekte oldu ve 3.406.261'in üzerinde ölüm vakası görüldü (https://coronavirus.jhu.edu). COVID-19 enfeksiyonunun klinik şiddeti, özellikle yaşlılarda ve hipertansiyon, diabetes mellitus, koroner kalp hastalığı ve kronik obstrüktif akciğer hastalığı gibi önceden komorbiditeleri olan hastalarda ciddi solunum yetmezliğine yol açabilir (Polanco ve ark. , 2014; Zhou ve diğerleri, 2020a).
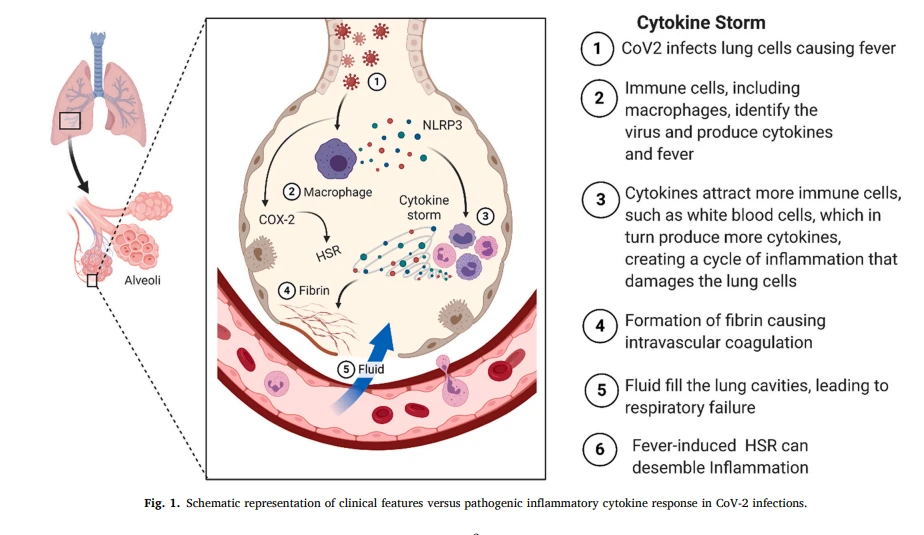
Şu anda, COVID-19'den etkilenen insanlar, sitokin fırtınası olarak bilinen aşırı inflamasyonla sonuçlanan, düzensiz bağışıklık tepkilerinden muzdarip olabilir (Weiss ve Leibowitz, 2011) (Şekil 1). Önceki şiddetli SARS-CoV ve Orta Doğu Solunum Sendromu (MERS)-CoV vakaları, çeşitli proinflamatuar sitokinlerin yüksek serum seviyelerini göstermiştir (CHIEN ve diğerleri, 2006; Kim ve diğerleri, 2016). Önceki CoV enfeksiyonlarıyla karşılaştırıldığında, COVID-19 oldukça bulaşıcıdır (Liu ve diğerleri, 2020b) ve bazı vakalarda SARS'a ilerleme hızı hızlıdır.
Araştırma yoğun bir şekilde COVID-19 enfeksiyonunun patofizyolojisini anlamaya odaklanmış olsa da ciddi akciğer patolojisine neden olan spesifik moleküler ve biyokimyasal konak faktörleri henüz tam olarak anlaşılamamıştır. COVID-19 SARS'tan mustarip yetişkin hastaların retrospektif bir analizi, yüksek viral titrenin, artan enflamatuar monositlerin/makrofajların, nötrofil infiltrasyonunun, gecikmiş interferon (IFN) yanıtının ve çoklu organ yetmezliğinin hastalığın şiddetine katkıda bulunduğunu gösterdi (Channappanavar ve ark. ., 2017; Gorla ve diğerleri, 2018; Matthay ve diğerleri, 2019; Zhou ve diğerleri, 2020a).
1.2. enfeksiyon
Yeni koronavirüs SARS-CoV'nin-2 yayılması, sağlık, sosyal yaşam ve ekonomiye yönelik daha fazla küresel tehdidi azaltmak için acil bir çözüm talep eden küresel bir acil duruma neden oldu.
Küresel stratejiler, virüsün bulaşmasını ve terapötik müdahaleyi baskılayarak SARS-CoV-2'u kontrol etmeye odaklanır. Mevcut kanıtlara göre, SARS-CoV-2'ün kişiden kişiye yayılabileceği öne sürülmüştür. Bununla birlikte, SARS-CoV-2 yayılımını destekleyen ortamların nasıl, ne zaman ve çevresel koşulları anlamak, etkili enfeksiyon önleme ve kontrol önlemlerinin geliştirilmesi için çok önemlidir. SARSCoV-2 olası bulaşma biçimleri arasında damlacık, hava yoluyla, fomit, fekal-oral, kan yoluyla, anneden çocuğa ve hayvandan insana bulaşma yer alır. SARS-CoV-2 bulaşması, enfekte kişilerle doğrudan yakın temas yoluyla, enfekte bir kişi öksürdüğünde, hapşırdığında, konuştuğunda veya şarkı söylediğinde salınan tükürük ve solunum salgıları veya bunların solunum damlacıkları yoluyla gerçekleşebilir (Burke ve ark., 2020; Ghinai ve diğerleri, 2020; Liu ve diğerleri, 2020a). SARS-CoV-2 iletimi, uzun mesafeler ve süre boyunca havada asılı kaldığında bulaşıcı kalan damlacık çekirdeklerinin (aerosoller) yayılmasıyla da gerçekleşebilir (Organization, 2014, 2020).
Enfekte hastalardan üretilen mikroskobik aerosoller buharlaşabilir ve normal nefes alma ve konuşma sırasında dışarı verilebilir. Sonuç olarak, duyarlı bir kişi aerosolleri soluyabilir ve enfekte olabilir. Aerosolde başka bir kişide enfeksiyona neden olmaya yetecek kadar SARS-CoV-2 miktarı henüz bilinmiyor. Ancak çalışmalar, aerosollerin indüklenmesinden 3 saat ve 16 saat sonra hava örneklerinde SARS-CoV-2 RNA'sı buldu (Fears ve diğerleri, 2020; Van Doremalen ve diğerleri, 2020). Çalışmalar ayrıca bir sağlık hizmeti ortamında aerosol indüksiyonu olmayan hava örneklerinde SARS-CoV-2 RNA bulmuştur (Chia ve diğerleri, 2020; Guo ve diğerleri, 2020; Liu ve diğerleri, 2020c; Santarpia ve diğerleri, 2020; Zhang ve diğerleri, 2020). SARS-CoV-2 RNA'nın uygun koşullar (sıcaklık ve nem) ve yüzey türü altında saatlerden günlere kadar yaşayabildiği bulunmuştur. Bu nedenle, bulaşma, enfekte bir kişiden virüsün bulaştığı yakın çevredeki yüzeylerle doğrudan temas yoluyla gerçekleşebilir.

Şu anda SARS-CoV-2'nin dışkı veya idrar yoluyla bulaştığına dair yayınlanmış bir rapor bulunmamaktadır, ancak son zamanlarda enfekte hastaların idrarında ve dışkısında SARS-CoV-2 RNA'sı tespit edilmiştir (Guan ve diğerleri, 2020; Sun ve diğerleri, 2020a; Wang ve diğerleri, 2020b; Zheng ve diğerleri, 2020). Ayrıca bazı çalışmalar, kan hücrelerinde tam replikasyon ile birlikte plazma veya serumda SARS-CoV-2 RNA'sının tespit edildiğini bildirmiştir. Bununla birlikte, kan yoluyla bulaşmanın rolü belirsizliğini koruyor. Plazma ve serumdaki düşük viral titreler, bu yolla bulaşma riskinin düşük olabileceğini düşündürmektedir (Le Chang ve diğerleri, 2020; Wang ve diğerleri, 2020b).
SARS-CoV-2'nin başak proteini (S), insan reseptörü anjiyotensin dönüştürücü enzim 2'ye (ACE2) bağlanarak konakçı hücrelerin enfeksiyonunu başlatır. Bu nedenle ACE2, konakçı hücrelere virüs girişini önleyen aşılar için birincil hedef görevi görebilir (Li, 2016; Panda ve diğerleri, 2020). SARS-CoV-1 ve SARS-CoV-2 arasındaki reseptör bağlama alanları (RBD), S proteininde yapısal bir farklılık gösterir ve bu nedenle mevcut SARS-CoV{{13}'ü kullanmak mümkün değildir. } SARS-CoV2 tedavisi için aşı (Berry ve diğerleri, 2004). Yüksek riskli COVID{18}} hastalarında doğuştan gelen bağışıklık sistemi iltihabı azaltamaz ve sitokin fırtınalarını önleyemez (Sun ve diğerleri, 2020b).
Bu gözden geçirme makalesi, SARS-CoV-2 tarafından etkinleştirilen doğuştan gelen bağışıklık, iltihaplanma ve ısı şoku proteini (HSP'ler) yanıtlarını özetlemektedir. Afrika'da SARS-CoV-2 enfeksiyonuna verilen tepkiler ve yarasalardan alınan dersler bu incelemenin ikinci bölümünde tartışılmaktadır. Sonunda tartışırız.
2. SARS-CoV'ye karşı doğuştan gelen bağışıklık tepkisi-2
Evrimsel olarak korunmuş doğuştan gelen bağışıklık sistemi, konağın viral enfeksiyonlara karşı ilk savunma hattıdır (Netea ve diğerleri, 2019). Doğuştan gelen bağışıklık sistemi, virüs bulaşmış hücrelerin uzaklaştırılmasında rol oynayarak hızla koordineli bir adaptif bağışıklık tepkisine yol açar (Catanzaro ve diğerleri, 2020).
Memeli konakçılarda, Toll benzeri reseptörler (TLR'ler) ve nükleotid bağlayıcı oligomerizasyon alanı (NOD) benzeri reseptör ailesi proteinleri (NLR'ler) dahil olmak üzere mikrobiyal tanıma reseptörleri (MRR'ler), çeşitli mikropların saptanmasında yer alır (Franchi ve ark. , 2008; Franchi ve diğerleri, 2009b; Sansonetti, 2006). Örüntü tanıma reseptörleri (PRR'ler), membran gözenek oluşumunu ve piroptoz adı verilen enflamatuar hücre ölümüne yol açan proinflamatuar sitokin aşırı yüklenmesini indükleyebilen enflamasyon (Man ve diğerleri, 2017) adı verilen bir kompleks oluşturmak için birden fazla proteini birleştirir (He ve diğerleri, 2015; Man ve diğerleri, 2017; Shi ve diğerleri, 2015). Bu nedenle, konağın doğuştan gelen bağışıklık tepkisi ile viral replikasyon arasındaki yanıt noktası, antiviral fonksiyonları korurken aşırı inflamasyonu azaltarak viral enfeksiyonlarda potansiyel bir terapötik hedeftir.
2.1. SARS-CoV-2 enfeksiyonunda NLRP3 enflamatuar patogenezi
Örüntü tanıma reseptörleri arasında, nükleotit bağlama ve oligomerizasyon alanı (NOD) benzeri reseptörler (NLR'ler), sitoplazmada istilacı patojenler için sürekli devriye gezen benzersiz sitozolik reseptörlerdir.
NLRP3 enflamasyonu, birçok virüs ailesinde iyi çalışılmış aktif bir enflamasyondur. Tam NLRP3 iltihaplanma aktivasyonu, iki sinyal yolu gerektirir (Shrivastava ve diğerleri, 2016). Birincil veya hazırlayıcı sinyal, TLR'ler ve RIG-I benzeri reseptörler (RLR'ler) veya bir protein reseptörü tarafından başlatılabilir; bu, pro-caspase1 ve pro-IL-1 ve pro-IL{{ 11}} (Bauemfeind ve diğerleri, 2009). NLRP3 enflamatuar aktivasyonunun ikinci sinyal yolu, NLRP3'e procaspase-1 alımını ve ardından ana stres sinyalleri olan olgun kaspaz-1 ve IL-1 ve IL-18 üretimini içerir. doku hasarı veya enfeksiyonla ilişkilidir (Franchi ve diğerleri, 2008). NLRP3 enflamatuar aktivasyonunun tam mekanizmaları hala tam olarak anlaşılamamıştır.
Bununla birlikte, NLRP3 enflamasomunun aktivasyonunda üç farklı uyaran sınıfı yer alır: lipopolisakarit, muramil dipeptid, nükleik asitler ve gözenek oluşturucu toksinler dahil olmak üzere istilacı mikrobiyal patojenler ve bunların ürünleri; hücre dışı ATP, ürat kristalleri, hiyalüronan ve fibriler amiloid gibi endojen tehlike sinyalleri; ve şap adjuvanı ve ultraviyole ışınlama gibi kristalli çevresel kirleticiler (Baral ve diğerleri, 2014; Feldmeyer ve diğerleri, 2007; Franchi ve diğerleri, 2009a; Schroder ve Tschopp, 2010; Sha ve diğerleri, 2014).
Daha önce belirtildiği gibi SARS-CoV-2 genomu, viral girişi kolaylaştıran konak hücre reseptörü ACE2'ye bağlanan S proteinlerini kodlar.
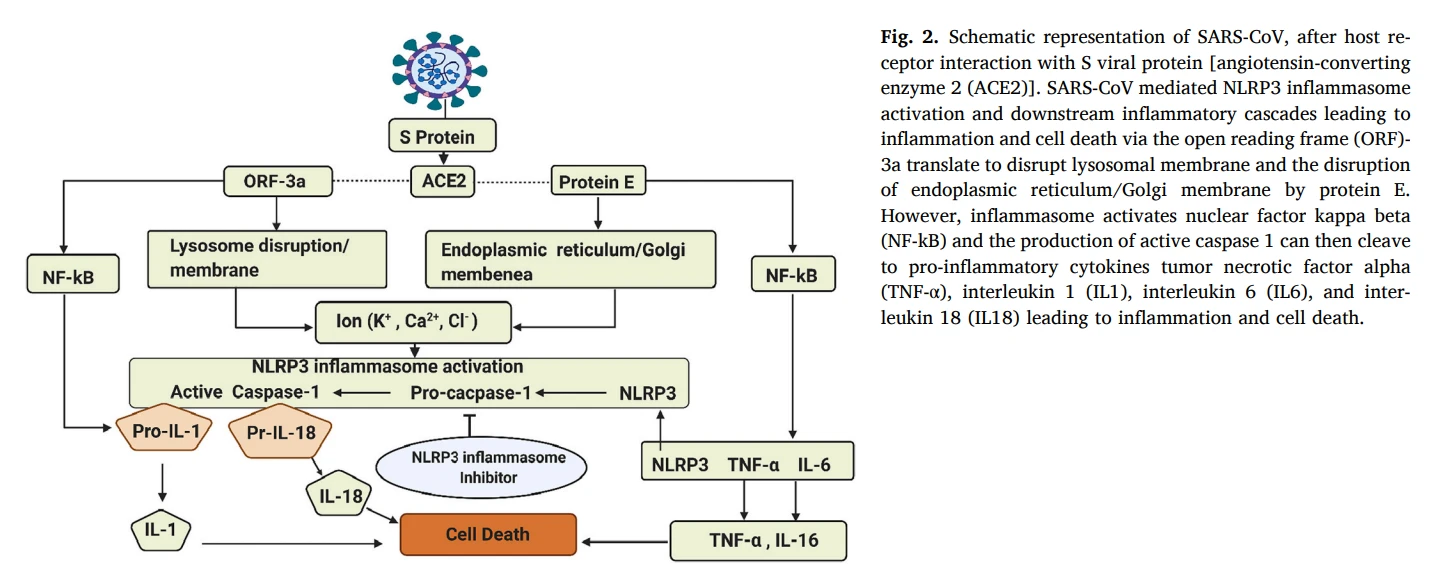
SARS-CoV-2 zarfı (E), küçük bir hidrofobik protein zarından (M) ve nükleokapsidden (N) oluşur. Bu dört SARS-CoV-2 yapısı, viral toplanma ve enfeksiyon için gereklidir (Weiss ve Leibowitz, 2011). Daha önce açıklandığı gibi, SARS-CoV-2'nin konakçı hücreye ilk bağlanması, S proteini ile ACE2 reseptörü arasında başlatılır (Hoffmann ve diğerleri, 2020; Patel ve Verma, 2020). SARS-CoV-2, varsayılan üç iyon kanalını (IC) kodlar: protein E, ORF-3a ve ORF-8a (Chan ve diğerleri, 2020; Ramaiah ve Arumugaswami, 2020; Wu ve diğerleri, 2020a). Baskın proteinler E ve ORF3a, bir (PDZ) bağlama motifine sahiptir ve sitokin fırtınasını tetiklemede rol oynar ve doğuştan gelen bağışıklık sinyalleme sensörü NLRP3 enflamasyonu yoluyla hücre ölümüne yol açar (Nieto-Torres ve diğerleri, 2015) (Şekil 2). Klinik olarak bu, akut respiratuar distres sendromuna (ARDS) neden olan artmış pulmoner ödem ile sonuçlanabilir (Jimenez-Guardeno ˜ ve diğerleri, 2014; Nieto-Torres ve diğerleri, 2014; Torres ve diğerleri, 2015).
Ek olarak, E proteini, interferon düzenleyici faktör 3'ün (IRF3) aktivasyonu ve aktive edilmiş B hücrelerinin (NF-kB) nükleer faktör kappa-hafif zincir arttırıcısı dahil olmak üzere çeşitli sinyal mekanizmalarında temel bir rol oynar. IRF3'ün, Janus kinaz/sinyal dönüştürücülerinin ve transkripsiyon (JAK-STAT) yolunun aktivatörlerinin aktivasyonuna ve interferonla uyarılan genlerin ekspresyonuna neden olan tip 1 interferonun salgılanmasına aracılık ettiği bilinmektedir.
Öte yandan, E proteini, NF-kB enflamatuar sinyal kaskadının aktivasyonunu ve bunun PDZ-bağlayıcı motifinin (PBM), tümör nekroz faktörü-alfa (TNF-) ve interlökin 6 gibi enflamatuar faktörlerle etkileşimini tetikler. IL-6) (Wang ve diğerleri, 2007). Bu değişiklikler, endoplazmik retikulum/Golgi aparatı ara bölme zarında bir kalsiyum iyonu (Ca2 plus ) kanalı oluşturur ve sitozolik doğuştan gelen immün NLRP3 inflamatuarını aktive eden güçlü uyaranlar olarak işlev görür. Ayrıca, çok sayıda hücresel sinyal olayının zarda NLRP3'ü aktive ederek potasyum (K artı) veya klorür iyonlarının (Cl-) dışarı akışına ve Ca2 artı akışına yol açtığı gösterilmiştir (Di ve diğerleri, 2018; Domingo-Fernandez ´ ve diğerleri, 2017; Munoz-Planillo ˜ ve diğerleri, 2013; Perregaux ve Gabel, 1994; Samways ve diğerleri, 2014; Surprenant ve diğerleri, 1996; Tang ve diğerleri, 2017; Triantafilou ve diğerleri, 2013 ) yanı sıra lizozomal bozulma, mitokondriyal işlev bozukluğu, metabolik değişiklikler ve trans-Golgi parçalanması (Swanson ve diğerleri, 2019) (Şekil 2). NLRP3'ün ve akış aşağı aracıların viral kaynaklı aktivasyonu, genellikle enfeksiyon sırasında patolojik doku hasarına yol açar.
NLRP3 enflamasyonu, kaspaz-1'ı toplar ve aktive ederek enflamasyonla ilişkili hücre ölümü süreci piroptozu ve anahtar proinflamatuar sitokinler IL-1 ve IL18'in olgunlaşmasını tetikleyerek inflamatuar yanıtların gelişmesine yol açar ( de Torre Minguela ve diğerleri, 2017). NLRP3, hemofilik etkileşimler yoluyla N-terminal pirin alanı aracılığıyla bir kaspaz alım alanı (ASC) içeren apoptozla ilişkili benek benzeri proteini ayırır ve bu da prion benzeri oligomerizasyonun oluşmasına neden olur (Verkhratsky ve Pelegrín, 2014). MHC sınıf II transkripsiyon aktivatörü (CIITA), HET-E (Podospora anserina'dan uyumsuzluk lokus proteini) ve NLRP3 enflamatuar kompleksinin ortasında yer alan telomerazla ilişkili protein gibi çeşitli alanların varlığı, deoksinükleosit trifosfat (dNTP'ler) aktivitesine sahiptir. akış aşağı oligomerizasyona aracılık eder (Lu ve diğerleri, 2014; Ruland, 2014; Schmidt ve diğerleri, 2016). Isı şok proteinleri (HSP'ler) ve SGT1 ile ilişkili C-terminal lösin açısından zengin tekrar alanı (LRR), NLRP3 iltihaplanma aktivitesinin düzenlenmesinden sorumlu kabul edilir (Lo ve diğerleri, 2013; Mayor ve diğerleri, 2007).
NLRP3 enflamazomu etkinleştirildiğinde, pro-IL-1 , pro-IL-18'nin proteolitik işlemine aracılık etmek için bir aktivatör görevi gören procaspase-1'nin otomatik bölünmesini tetikler, ve proapoptotik faktör gasdermin D (GSDMD) (Shi ve diğerleri, 2015). GSDMD, konak hücre zarına bağlanır ve üzerinde bir gözenek oluşturur, böylece IL-1 /IL-18 salgılanmasını kolaylaştırır ve ayrıca piroptoza neden olur (He ve diğerleri, 2015).
Buna göre, SARS-CoV E proteini ve ORF{1}a'nın NLRP3 enflamasomunu aktive ettiği ve konak antiviral durumunu oluşturduğu açıktır (Zhao ve Zhao, 2020). SARS-CoV'ye-2 NLRP3-aracılı enflamasyon yanıtı, SARS-CoV2 hastalığının tedavisi için potansiyel bir spesifik ilaç hedefi olabilir. SARS-CoV{11}} tedavisinin ilerlemesinde belki de kritik bir faktör olan antiinflamatuar ısı şoku proteininin üretimini destekleyen ortam sıcaklığı. HSP'lerin moleküler tutulumunun, COVID{12}} enfeksiyonunun enflamatuar yolunun çözülmesinde hayati bir rol oynadığı gösterilmiştir (Heck ve diğerleri, 2020).
2.2. SARS-CoV enfeksiyonunda Toll benzeri reseptör patogenezi
TLR'ler, doğal bağışıklığın aktivasyonu, sitokin ekspresyonunun düzenlenmesi, adaptif bağışıklık sisteminin dolaylı aktivasyonu ve patojenle ilişkili moleküler modellerin (PAMP'ler) tanınmasında yer alan bir doğuştan gelen bağışıklık reseptörleri grubudur.
(Birra ve diğerleri, 2020; Debnath ve diğerleri, 2020; Hedayat ve diğerleri, 2011). SARS-CoV-2 pandemisinden önce, çeşitli araştırmalar TLR yolaklarının SARS-CoV ve Orta Doğu solunum sendromunun (MERS) patogenezinde önemli olduğunu göstermiştir (Birra ve ark., 2020). TLR'ler on süper aile üyesi içerir ve membranöz ve endozomal reseptörlere ayrılır. TLR'ler, dendritik hücreler, makrofajlar, doğal öldürücü hücreler ve adaptif bağışıklık hücreleri (T ve B hücreleri) dahil olmak üzere farklı bağışıklık hücrelerinde ifade edilir (Angelopoulou ve diğerleri, 2020). TLR'ler, hem tek sarmallı hem de çift sarmallı DNA patojenleri için geniş bir tanıma aralığına sahiptir.
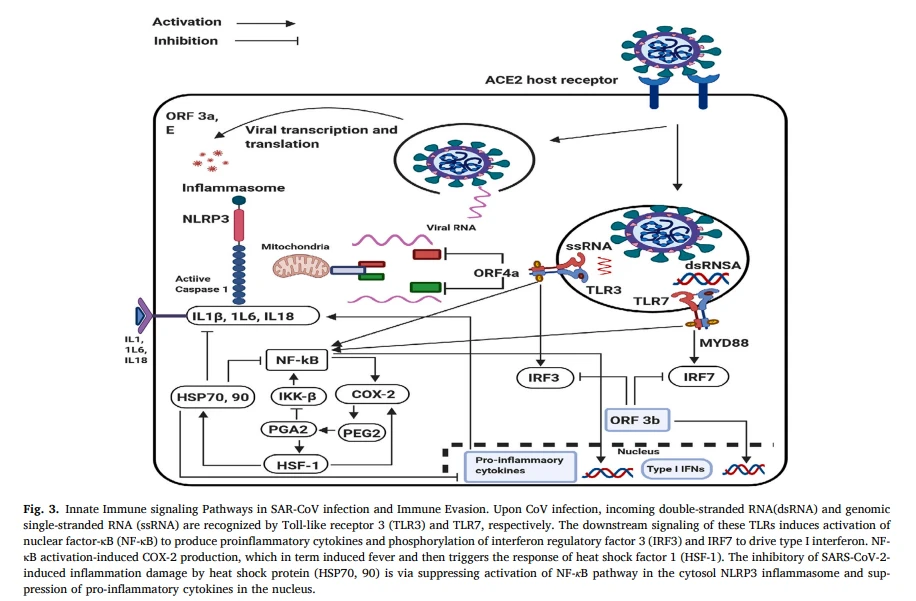
TLR'lerin sinyal iletimi iki ana yolu içerir, Miyeloid farklılaşma birincil yanıtı 88 (MyD88) ve geçiş ücreti olarak da bilinen Toll/interlökin-1 reseptörü (TIR)-domain içeren adaptör indükleyen interferon- (IFN-) reseptör adaptör molekülü 1 (TRIF veya TICAM1) gibi. Tümör nekroz faktörü reseptörü ile ilişkili faktör (TRAF) ve IL{10}} reseptörü ile ilişkili kinazlar (IRAK) proteinlerinin varlığı, nükleer faktör (NF-kB) ve İnterferon düzenleyici faktör (IRF) ve kurşunun aşağı akış aktivasyonunu başlatabilir tip 1 IFN ve proinflamatuar sitokinler-interlökin-1 (IL1), IL-6, tümör nekroz faktörü- (TNF-) ve IL-12 üretimine. TLR'ler ayrıca yardımcı uyarıcı moleküllerin ekspresyonunu modüle ederek adaptif bağışıklık sisteminde dolaylı bir rol oynar. TLR'lerin SARSCoV-2 tarafından aktivasyonu, IL-1 ve IL-6'in iltihaplanmasını ve üretimini etkinleştirir. Çalışmalar, enflamasomların uzun vadeli aktivasyonunun COVID{27}} hastalarında kötü sonuçların birincil nedeni olduğunu bildirmiştir (de Rivero Vaccari ve diğerleri, 2020). Ek olarak TLR'ler, makrofaj aktivasyon sendromuna yol açan Janus kinaz transdüserlerinin (JAK/STAT) aktivasyonunu indükler.
Modaya uygun olarak, TLR'ler konak hücre sinyal yolaklarına aracılık eder ve IFN reseptörlerinin ekspresyonunu ve tip 1 IFN üretimini azaltır, bu da CoV'lerin patogenezinde hayati önem taşıyan sistemik bir inflamatuar yanıta yol açar (Angelopoulou ve diğerleri, 2020). TLR üyelerinin katılımını incelemek için çeşitli çalışmalar yapılmıştır. Bu çalışmalar, TLR3'ün SARS-CoV ve MERS-CoV enfeksiyonlarında koruma sağlamak için TIRF yolu aracılığıyla hareket ettiğini göstermiştir. Bir TLR3 fare modelinin, IRF3 ve NF-kB yollarını ve tip 1 IFN ve proinflamatuar sitokinlerin üretimini aktive ettiği gösterilmiştir (Birra ve diğerleri, 2020).
Ayrıca, TLR3'ü devre dışı bırakan farelerde koronavirüs enfeksiyonunu takiben sitokinlerin salgılanmasında herhangi bir azalma gösterilmemiştir (Birra ve diğerleri, 2020). TLR4, TLR3 ile aynı yolu aktive eder ancak TLR4, bakteriyel enfeksiyonlarda hayati öneme sahiptir ve viral akciğer enfeksiyonlarının çoğunda bulunan oksitlenmiş fosfolipitler tarafından aktive edilir ve ayrıca COVID-19 için doğrulanmıştır.
Enfeksiyonun pulmoner fazında aktive olan TLR4 yolu oksidatif hasara neden olur. TLR4 sinyal yolunun, nötrofil hücre dışı tuzaklarının (NET'ler) aktivasyonunda rol oynadığı ve COVID-19'de NET oluşumunun, COVID-19 hastaları için kötü sonuçlara yol açabilen inflamasyonu sürdürdüğü gösterilmiştir (Cicco ve al., 2020). SARS-CoV-2 başak proteini, TLR4 için daha yüksek bir afinite ile TLR1, 4 ve 6'yı bağlar. TLR4 blokerleri, COVID{12}} hastalarına terapötik bir çare olarak uygulanabilir (Choudhury ve Mukherjee, 2020). Çalışmalar, TLR7 ve TLR8'in SARS-CoV enfeksiyonu sırasında akciğerde yüksek oranda ifade edildiğini ve SARS-CoV'de-1 sitokin fırtınasında rol oynayabileceğini göstermiştir (de Groot ve Bontrop, 2020). Tüm genom dizilemesinden yapılan araştırmalar, TLR7'nin SARS-CoV-2 patogenezinde SARS-CoV ve MERS-CoV'ye kıyasla daha fazla yer alabileceğini ortaya çıkardı çünkü SARS-CoV-2`nun tek sarmallı RNA'sı öncelikle bağlanabilir TLR7'ye (Van Der Made ve diğerleri, 2020). TLR7/8 yolunun aktivasyonu, hastalarda güçlü bir proinflamatuar yanıtı indükleyerek akut akciğer hasarına yol açtığından, TLR7, COVID{31}} hastalarında NET oluşumunu tetiklemek için başka bir aday olabilir. Bu nedenle, hastalığın ilerlemesinde ikili bir role sahip olabilir (MorenoEutimio ve diğerleri, 2020; Veras ve diğerleri, 2020).
Ayrıca, doğuştan gelen bağışıklık hücrelerini ve akciğer epitel hücresinde çeşitli dirençli faktörlerin üretimini aktive etmek için birkaç TLR agonisti uygulanmıştır. COVID-19 ölümünü azaltmaya yönelik bu çaba kapsamında, TLR aktivasyonunu bloke etmek için CD24Fc konjugatı kullanılarak COVID-19 hastalarında anti-inflamatuar ilaçların etkisi değerlendirildi (Florindo ve diğerleri, 2020). Ayrıca, glisiretinik asidin TLR4'e karşı antagonistik etkileri, akut solunum sıkıntısı sendromu olan farelerin akciğerinde anti-enflamatuar bir etkiye sahiptir ve böylece doku yıkımına karşı koruma sağlar (Huang ve diğerleri, 2020). Aynı zamanda, daha az aktif ACE2'nin aşağısındaki anti-enflamatuar aktiviteyi uyarabilir ve ayrıca daha az aktif ACE2'nin aşağısındaki anti-enflamatuar aktiviteyi de uyarabilir. Bu nedenle, COVID'i-19 kontrol etmek için potansiyel bir yaklaşım olabilir (Murck, 2020).

3. HSP aracılı CoV-2 toleransına karşı immünopatoloji
Isı şoku proteinleri (HSP'ler), protein katlanmasında ve hücre içi bölmeler arasında protein kaçakçılığında moleküler şaperonlar olarak işlev gören hücre içi proteinlerdir. Artan oranda oksidatif stres, beslenme yetersizlikleri ve radyasyon ile ifade edilirler.
Bununla birlikte, HSP'ler, tam olarak bilinmeyen bir mekanizma ile hücre dışı ortama salınır, ancak birkaç doğuştan gelen immünolojik etki ile hareket ederler. Şiddetli COVID-19 enfeksiyonuyla ilişkili önceden var olan spesifik komorbiditelerden biri, ısı şoku yanıtının (HSR) göreli eksikliğini içerir (Heck ve diğerleri, 2020). Çoğu kronik enflamatuar hastalıkta (Newsholme ve de Bittencourt Jr, 2014) olumsuz prognozun altında yatan olası etiyolojinin yeterli HSR eksikliği olduğu bildirilmiştir ve ayrıca COVID-19 ölüm oranı yüksek gruplarda şüphelenilmektedir (Heck ve diğerleri, 2020).
Doğuştan gelen bağışıklık hücreleri uyaranlara karşı oldukça hassastır ve hücreleri dakikalar (nötrofiller) ila saatler (monosit/makrofajlar) içinde yaralanma bölgesine hızla toplar. Bu hızlı yanıtlar, öncelikle erken aşamada iltihaplanmayı türeten NF-kB'nin ifadesi ile düzenlenir (Oeckinghaus ve Ghosh, 2009). Siklooksijenaz-2 (COX-2), proinflamatuar araşidonik asitten türetilen prostaglandin (PG) ve diğer lipid aracılarının yanı sıra vasküler geçirgenliği artıran ve gelişini kolaylaştıran vazoaktif bileşiklerin üretiminden sorumlu indüklenebilir bir proteindir. enflamatuar hücrelerin aktivasyonu ve doku onarımı (Medzhitov, 2008). COX-2-türevli PG-E2, ön hipotalamus ve talamusun preoptik bölgesindeki termo-duyarlı bilgileri bloke ederek ateşi indükler ve koordineli sempatik/parasempatik ısı koruma mekanizmalarının aktivasyonuna yol açarak çekirdek sıcaklığının yükselmesine neden olur ( Miragem ve Homem de Bittencourt, 2017). Sıcaklıktaki yaklaşık 2–3 ◦C'lik artış, ısı şoku tepkisini (HSR) tetikler (Singh ve Hasday, 2013).
Ateş oluşumu sırasında viral tomurcuklanma dahil olmak üzere plazma zarındaki yapısal değişiklikler, ısı şoku faktörü 1 (HSF-1) aktivasyonunda doğrudan rol oynar (Anckar ve Sistonen, 2011). HSF-1'in aktivasyonu, HSP'lerin transkripsiyonunu, sitokinlerin ekspresyonunu ve erken gen tepkisini düzenler (Chen ve diğerleri, 2005), buna COX-2 transkripsiyonunun indüklediği PDE2 üretiminin kontrolü de dahildir. enflamasyonun hazırlama/etki fazı (Gilroy ve diğerleri, 1999). HSR, NF-kB ve diğer akış aşağı proinflamatuar sinyalleri bloke ederek akut enflamasyonu çözebilir (Gilroy ve diğerleri, 1999; Newsholme ve de Bittencourt Jr, 2014; Serhan, 2011).
HSF-1 aktivasyonuna yanıt olarak HSP70 üretimi, çekirdeğe NF-kB translokasyonunu engellemek için NF-kB ve inhibitörü (I-kB) tarafından kompleks oluşumu ile ilişkilidir (Chen ve diğerleri, 2005) (Şekil 3). HSP'ler, NLRP3 iltihaplanmasının aktivasyonundan sonra dahil olmak üzere bir dizi enflamatuar durumu iyileştiren anti-enflamatuar şaperonlardır (de Bittencourt Jr ve diğerleri, 2007; Ianaro ve diğerleri, 2003). Bir RNA bağlayıcı proteinin NLRP3-bağımlı kaspaz-1- aracılı bölünmesinin kalıcı aktivasyonu, güçlü bir HSR'yi (Newsholme ve de Bittencourt Jr) teşvik etmek için HSF-1'nin hem ekspresyonunu hem de transkripsiyonel aktivitesini artırabilir , 2014; Talwar ve diğerleri, 2011; Wang ve diğerleri, 2013).
SARS-CoV-2 enfeksiyonundan sonraki ölümün, genellikle "sitokin fırtınası" olarak adlandırılan, virüs kaynaklı yüksek proinflamatuar sitokin salınımından kaynaklandığı düşünülmektedir (Huang ve diğerleri, 2005; Tisoncik ve diğerleri, 2012). Alternatif olarak, enfeksiyondan sonra güçlü bir HSR sergileyenlerde, HSR'nin anti-enflamatuar aktivitesi, sitokin fırtınasını önleyerek sitokinlerin inhibisyonuna/degradasyonuna neden olabilir (Tanaka ve diğerleri, 2014). Bununla birlikte, klorokin (Gao ve diğerleri, 2020), hidroksiklorokin (Gautret ve diğerleri, 2020), glukokortikoidler (Wu ve diğerleri, 2020b), yeniden dağıtma (Wang ve diğerleri, 2020a), favipiravir (Cai ve diğerleri, 2020), test edilmiş, henüz önemli bir fayda gösterilmemiştir.
Kronik enflamatuar hastalıklarda hipertermik tedavinin çoklu yararlı etkilerinde yer alan mekanizmalar tam olarak açıklanmamış olsa da, insanlarda çekirdek vücut sıcaklığını 38 ila 39 ◦C arasında yükseltmenin nitrik oksit nedeniyle anti-inflamatuar etkiler gösterebileceği varsayılmıştır. Endotel fonksiyonunun NO) bazlı iyileşmesinin yanı sıra kronik NO kaynaklı HSP70 ekspresyonu (Krause ve diğerleri, 2015). HSP'ler, fare makrofajlarında hem NLRP3 enflamatuar aktivasyonunu hem de kaspaz -1 aktivitesini inhibe edebilir (Levin ve diğerleri, 2008). Bu nedenle, çekirdek vücut sıcaklığını ateş aralığında (38–39 ◦C) kasıtlı olarak artırmak veya sürdürmek, HSR'nin anti-inflamatuar aktivitesini aktive edebilir ve alternatif bir tedavi sağlayabilir.
4. Yapısal ısı şoku tepkisi ve CoV'ye tolerans-2
Yapıcı ısı şoku tepkisi, evrimsel olarak korunmuş doğuştan gelen bir stres yanıt sistemidir. Normal fizyolojik koşullar altında düşük seviyelerde bulunur, ancak iskemi, aşırı demir yüklenmesi, oksidanlar ve enfeksiyonlar gibi termal ve termal olmayan uyaranlar dahil olmak üzere çok sayıda uyarana yanıt olarak konsantrasyonları birçok kat artabilir (Ja¨attel ¨ a, ¨ 1993). ; Jaattel ¨ ¨ a ve Wissing, 1992; Villar ve diğerleri, 1994). Stres kaynaklı/kronik hastalık kaynaklı HSP birikimi, güçlü bir hücre koruyucu olarak kabul edilir (Bakthisaran ve diğerleri, 2015; Zhang ve diğerleri, 1999). Sahra altı Afrika'daki ortam sıcaklığı güçlü bir HSR uyarıcısı olabilir ve SARS-CoV'ye karşı önemli bir rol oynayabilir-2
Afrika ülkelerindeki SARS-CoV salgını, yalnızca Demokratik Kongo Cumhuriyeti'nde toplam ölü sayısının yaklaşık 300000 olduğunu tahmin eden Chad Wells ve meslektaşlarının (Wells ve diğerleri, 2020) bakış açısını kaybediyor. Ancak tahminlerinin yanlış olduğu kanıtlandı çünkü Afrika ülkelerindeki SARS-CoV-2'un bulaşıcılığı, semptom geliştiren enfekte kişilerin oranı ve doğuştan gelen bağışıklık hücrelerinin tepkisi dahil dinamikleri hakkında çok az şey biliniyor. Afrika'da test kapasitesinin ve toplanan verilerin kalitesinin eksikliğinin farkındayız, ancak SARS-CoV-2'nin düşük ölüm oranının ardındaki bilimsel kanıt eksik olduğundan, deniz altı bölgelerindeki yüksek ortam sıcaklığının yüksek olduğunu tahmin ediyoruz. -Sahra Afrika ülkeleri, SARS-CoV-2 enfeksiyonunun neden olduğu iltihabı çözmek için HSR'yi ve anti-enflamatuar etkilerini potansiyel olarak uyarabilir.
Ek olarak, COVID-19 salgın vakaları, tıpkı önceki SARS-CoV-1 (Araujo ve Naimi, 2020) gibi, nispeten serin ve kuru ortamlarda bir kümelenme modeli sunar. COVID-19 hava modellerine göre, sıcak ve soğuk iklimler virüsün yayılmasına yardımcı olurken, kurak ve tropikal iklimler daha az elverişlidir (Ma ve diğerleri, 2020; Sajadi ve diğerleri, 2020). Ancak bu model, Sahra altı Afrika ve Güneydoğu Asya'da hala belirsizdir (Araujo ve Naimi, 2020). İklim, SARS-CoV2'yi sınırlamaya yardımcı olabilir (Araujo ve Naimi, 2020; Bannister-Tyrrell ve diğerleri, 2020; O'Reilly ve diğerleri, 2020).
Hipertermik tedavi yoluyla immünoinflamatuar dengenin restorasyonu önerilmiştir (Cohen, 2020) ve immünosupresif yaklaşımlar dahil edilmeden kronik otoimmün hastalığın üstesinden gelmek için umut verici bir tedavi seçeneği olabilir (Tukaj ve Kaminski, 2019). Hiperterminin neden olduğu ısı stresinin, patojenlerin doğrudan inhibisyonu, bağışıklık sisteminin hem doğal hem de adaptif transkripsiyonel genlerinin uyarılması ve enflamasyonu dağıtan düzenleyici süreçlerin aktivasyonu ve aksi takdirde olabilecek sitokin fırtınalarının önlenmesi yoluyla viral enfeksiyonları hafiflettiği gösterilmiştir. aşırı doku hasarına neden olur (Evans ve ark., 2015). Isı müdahalesi, mikrobiyal kontrolün en eski biçimlerinden biridir ve günümüzde patojenleri kontrol etmek ve yok etmek için en yaygın yöntemlerden biri olmaya devam etmektedir. 30 dakika 60 ◦C veya 15 dakika 65 ◦C veya 1 dakika 80 ◦C'deki kontrol sıcaklıklarının koronavirüs enfeksiyonunu en az 4 kat azalttığı gösterilmiştir (Cohen, 2020). Ancak SAR-CoV-2'u in vivo olarak ayrıştırmak için gereken terapötik sıcaklık, nem ve süre henüz belirlenmemiştir.
Epidemiyolojik kanıtlar, sık sauna banyosunun pnömoni riskini azaltabileceğini (Kunutsor ve diğerleri, 2017a) ve solunum yolu viral enfeksiyonlarının görülme sıklığını azaltabileceğini (Ernst ve diğerleri, 1990; Kunutsor ve diğerleri, 2017b) önermektedir. Ek olarak, 30 dakika boyunca 43 °C'nin üzerindeki ısıtılmış ve nemlendirilmiş havanın solunması viral yayılmayı azaltabilir ve soğuk algınlığı semptomlarını hafifletebilir (Tyrrell ve ark., 1989). Sıcak havanın solunması, viryonların ilk yerleştikleri etmoidal sinüste doğrudan inhibisyonu veya deaktivasyonu yoluyla bağışıklık sisteminin ilk savunma hattı için önemlidir (Conti ve diğerleri, 1999).
Tüm vücut ısısı uygulamasının da ateşin etkilerini taklit ederek bağışıklık sisteminin HSR yolağına bağlı ikinci savunma hattını desteklediği kanıtlanmıştır (Schieber ve Ayres, 2016). Ateş aralığındaki daha yüksek sıcaklıklar, bağışıklık hücrelerini aktive edebilir, hücre zarı akışkanlığını teşvik edebilir ve hücre farklılaşmasını ve viral antijenlerin aktivasyonunu artırarak viral tehditlere hızlı yanıt verilmesine yol açabilir. Enfeksiyonun ilk belirtilerinde üst solunum yollarına doğrudan ısı uygulanması ayrıca virionları inhibe etmeye veya devre dışı bırakmaya hizmet edebilir. Hücrelerin 20 dakika boyunca 45 °C'ye in vitro maruz bırakılması, bağışıklık hücrelerini yeterli HSP'leri salması için uyarır ve rinovirüs çoğalmasını yüzde 90'dan fazla bastırır (Conti ve diğerleri, 1999). Anti-viral dekonjestanlı okaliptüs, nane ve lavanta gibi esansiyel yağların eklendiği buharın solunması, fiziksel ve psikolojik rahatlama sağlamanın yanı sıra mukosiliyer temizlemeyi kolaylaştırmaya ve viral yükü azaltmaya yardımcı olabilir. Bu hipotez, SARS-CoV-2 hastalarını tedavi ederken yeniden değerlendirmeyi ve dikkatli olmayı gerektirir.
Şu anda COVID-19 tedavisinde ısı kullanılarak hiçbir klinik çalışma planlanmamıştır veya tasarlanmamıştır, ancak ısının bu ortamda uzun süredir geleneksel bir kullanımı vardır. Tedavi sırasında çapraz enfeksiyon riskini en aza indirmek ve ayrıca yanıklar, kramplar, baş dönmesi ve bayılma, sıcak bitkinliği ve sıcak çarpması gibi tedavi risklerini en aza indirmek için gelecekteki çalışmaları tasarlamak ve klinik uygulamayı bilgilendirmek için ısıya dayalı klinik protokollere ihtiyaç vardır.
İlginç bir şekilde yarasalar, benzersiz bir HSP bazlı anti-enflamatuar HSR sunar ve dejeneratif hastalıklar veya sitokin fırtınaları göstermez (Ahn ve diğerleri, 2019). Yarasa bağışıklık hücreleri, viral/bakteriyel ve steril uyaranlara yanıt olarak NLRP3 enflamasyon aktivasyonunu bastırmaya devam eder (Ahn ve diğerleri, 2019). Aynısı, virüsleri yenme yeteneklerini etkilemeden MERS koronavirüsü dahil olmak üzere farklı virüsler için de geçerlidir (Ahn ve diğerleri, 2019). Sabit inflamatuar yanıtların, HSP70-indüklenmiş anti-viral interferon-gama ile ilişkili olduğu gösterilmiştir
IFN'ler aracılığıyla (IFN-) üretimi (Jacquemin ve diğerleri, 2017), ısı şoku geninin transkripsiyon oranını daha da artıran ve HSP'leri kodlayan mRNA'nın stabilitesini artıran HSP ifadesini düzenler (Zhao ve diğerleri, 2002). Yarasalarda, IFN- ayrıca virüs bulaşmış hücrelerde cyPG ile indüklenen HSP70 sentezini (Pica ve diğerleri, 1996) ve IFN- - ile indüklenen HSP70 sentezini ve etkilenmemiş dendritik hücreyi etkileyen hücre dışı eksozom yolağına doğru salınımını artırabilir. hücreler (Bausero ve diğerleri, 2005). Yarasalardaki HSR, virüs kaynaklı ER stresi üzerine sabit bir hızlı proteostaz tepkisi ve doku hasarını önlemek için enflamasyonun hızlı çözülmesini gösterir. Tür farklılıklarına rağmen karşılaştırmalı fizyoloji ve yarasaların ve insanların HSR'yi içeren antiviral ve antiinflamatuar koruyucu yolları arasındaki benzerlik, COVID{13} hastalarında sitokin fırtınalarının nasıl önleneceği veya tedavi edileceği konusunda bazı ipuçları sağlayabilir.
5. mRNA'ya veya vektör bazlı Corona bağışıklamalarına doğuştan gelen bağışıklık tepkisi
Mevcut aşıları kullanarak küresel nüfusu koruma çabası, pandemiden olası bir çıkış yolu sağlayabilir ve aşılar dünya çapında onaylanmıştır. Bu aşıların amacı, bağışıklık sistemini, koronavirüsün insan hücrelerini maskelemek için kullandığı başak proteinini hedef alan bir SARS-CoV-2 antijeni parçasını tanıması için uyarmak ve eğitmektir. Pfizer/BioNTech ve Moderna tarafından geliştirilen onaylı aşılar, mRNA ve lipid nanoparçacık (LNP) dağıtım teknolojisini kullanırken, AstraZeneca, Johnson ve Johnson ve Gam-COVID-vac (Sputnik V) tarafından onaylanan formülasyonlar, kopyalanmayan rekombinant adenovirüs içinde DNA içerir. (AdV) vektör sistemleri (Baden ve diğerleri, 2021; Logunov ve diğerleri, 2021; Polack ve diğerleri, 2020; Voysey ve diğerleri, 2021). Pfizer/BioNTech (BNT162b2) ve Moderna'nın (mRNA1273) her iki aşısı da mRNA aşılarıdır ve COVID'e karşı yüzde 90-95 etkililik başarısını bildirmektedir-19 (Baden ve diğerleri, 2021; Polack ve diğerleri, 2020), AdV aşıları (ChAdOx1 nCoV-19) ve Gam-COVID-vac (Sputnik V) ise COVID'e karşı ortalama yüzde 70 etkinliğe ve yüzde 91 korumaya sahiptir-19 (Logunov ve diğerleri, 2021; Voysey ve diğerleri, 2021). Bağışıklık yanıtını harekete geçiren aşılar, korumanın dayanıklılığı ve yeni varyantlara karşı nasıl daha fazla optimize edileceği hakkında çok az şey biliniyor.
Bununla birlikte, aşıların, enjeksiyondan 2 ila 4 hafta sonra antikorları ve virüs T hücrelerini nötralize ettiği (Şahin ve diğerleri, 2020; Widge ve diğerleri, 2021) ve edinsel bağışıklığı tetiklemeden doğuştan gelen ve kazanılmış yanıtı tetiklediği bildirilmiştir. Ciddi yan etkilere neden olabilen sistemik inflamasyon. mRNA aşıları, hem immünojen (viral proteini kodlayan) hem de adjuvan (Th veya Th2 yanıtını aktive edebilen) olarak işlev görür. Tek sarmallı RNA (ssRNA) veya çift sarmallı RNA'nın (dsRNA) girişi üzerine bunlar, çeşitli endozomal ve sitozolik doğuştan gelen bağışıklık sensörleri tarafından tanınır. Endozomal Toll benzeri reseptörler (TLR3 ve TLR7), dsRNA'yı bağlayan ve enflamatuar kemokinlerin ekspresyonunu uyaran ana TLR'lerdir; MDA5, RIG-I, NOD2 ve PKR gibi enflamasyon bileşenleri sitozolde önde gelen ssRNA ve dsRNA'ya bağlanır. tip I interferon ve çoklu enflamatuar mediatörlerin hücresel aktivasyonuna ve üretimine (Pardi ve diğerleri, 2018).
Lenf düğümü nanoparçacık (LNP) taşıyıcısı, mRNA'nın lenfatiklere güvenli hedef iletimi için korunmasına yardımcı olur ve burada protein translasyonunun gerçekleşmesini destekler (Pardi ve diğerleri, 2018). LN'ye girdikten sonra LNP, daha sonra adaptif bağışıklık tepkisinin aktivasyonu için antijeni T hücrelerine üreten ve sunan dendritik hücreler (DC'ler) tarafından yutulur. AdV aşıları ayrıca doğal adjuvan özellikleri içerir, ancak bunlar immünojeni kodlayan DNA'yı kaplayan virüs partikülü ile birlikte bulunur. AdV enjeksiyonundan sonra, dendritik hücreler ve makrofajlar, enfekte olmuş akciğerlerde TLR9-indüklü tip I interferon salgılaması dahil olmak üzere çoklu model tanıma reseptörlerini devreye sokmak için doğuştan gelen bağışıklığı uyarır (Sayedahmed ve diğerleri, 2020).
mRNA aşıları TLR9'u bağlamasa da, her iki aşı da tip I interferon üretiminde yer alır. Tip I interferon üretiminde yer alan dendritik hücreler ve diğer hücreler, daha sonra SARS-'a karşı adaptif bağışıklığı harekete geçiren lenf düğümlerindeki T hücrelerini aktive etmek için hem antijenik hem de inflamatuar sinyalleri uyarabilen S proteinini kodlayan aşıdan türetilen nükleik asitleri alır. CoV-2. mRNA ve AdV aşıları, hem CD8 plus hem de CD4 plus T hücrelerini efektör ve hafıza altkümelerine farklılaşmaya hazırlayan S proteininin hücre içi üretimini ve doğuştan gelen bağışıklık tepkilerini destekler. Tip I interferonun aşıyla yönlendirilen üretimi, CD4 plus ve CD8 plus inflamatuar ve sitotoksik aracılar üreten efektör T hücrelerinin ve antikor salgılayan plazma hücrelerine B hücresi farklılaşmasını destekleyen CD4 plus T foliküler yardımcı (TFH) hücrelerinin farklılaşmasını destekler. Bu ikincil inflamatuar yanıt, "eğitilmiş bağışıklık" (Yao ve diğerleri, 2018) adı verilen bir fenomen yoluyla makrofajlar gibi doğuştan gelen hücrelerde kısa süreli bir değişiklik ve aktive olan ilk enjeksiyondan itibaren hafıza T hücreleri ve B hücrelerinin aktivasyonunu sağlayabilir. tip I interferon, T hücresi hafızasını güçlendirir ve B hücresi farklılaşmasını ve hayatta kalmasını destekler, böylece aşıyla ilişkili enflamasyonun uzun vadeli immünolojik hafızanın oluşumunu destekleyebileceğini ve teşvik edebileceğini düşündürür.

6. Sonuçlar
Bu inceleme o sırada yazılmıştır; küresel SARS-CoV-2 enfeksiyon oranı, 3 milyondan fazla ölümle 164 milyonu aştı ve giderek dünya çapında yayılıyor. Bu incelemedeki eski ve yeni bilgiler, COVID'in tedavisi için umut ve çözümler sağlıyor-19. Mevcut anlayışa göre, SARS-CoV-2 birincil olarak temas ve solunum damlacıkları yoluyla yayılır. Bazı koşullar altında, havadan bulaşma hem iç mekanlarda hem de kalabalık iç mekanların yetersiz havalandırılan ortamlarda meydana gelebilir.
TLR'lerin COVID-19 enfeksiyonu üzerinde hem zararlı hem de faydalı etkileri olduğu varsayılabilir. SARS-CoV ve MERS'ten elde edilen eski veriler, doğuştan gelen ve kazanılmış bağışıklık bileşenlerinin COVID-19 enfeksiyonundaki kesin rolünün daha iyi anlaşılmasına yardımcı olabilir. Yalnızca TLR7/8, COVID-19'in ssRNA'sını tanırken TLR3, TLR4 ve TLR6, COVID-19 enfeksiyonuna karışabilir. TLR'nin SARS-CoV-2 enfeksiyonunda terapötik ve zararlı etkilerini belirlemek için hem antagonistlerin hem de agonistlerin kullanımı araştırılmalıdır. TLR tutulum tipinin belirlenmesinde enfeksiyonun evresi de önemlidir. Ek olarak, enflamasomların aşırı aktivasyonunun ve NET oluşumunun zayıflaması da terapötik bir hedef olabilir. Son olarak, biyoinformatik çalışmaları, TLR'lerin COVID'in proteinleri ve RNA'sı ile etkileşimlerinin anlaşılmasına yardımcı olabilir-19.
Son araştırmalar, SARS-CoV-2 enfeksiyonları dahil olmak üzere belirli patojenler sırasında, NLRP3'ün belirli ligandları tespit edebildiğini, kaspaz-1'ı aktive edebildiğini ve viral enfeksiyona karşı hayati rollere sahip çeşitli proinflamatuar sitokinlerin salınımını indükleyebildiğini göstermiştir. (Komune ve diğerleri, 2011). Birkaç yıl önce, virüs ile NLRP3 enflamasyonu arasındaki ilişkinin araştırılması için çabalar sarf edildi. Viral RNA, viroporin ve bulaşıcı viral partiküller, NLRP3 iltihaplanmasını aktive eder (Chen ve Ichinohe, 2015). Çoğu RNA viral enfeksiyonu, iyon kanallarını ve ROS modelini düzenleyerek NLRP3 iltihaplanmasını aktive eder veya inhibe eder. Ca2 artı kanalı ve ROS modeli tartışmalı olmasına rağmen, K artı akışı NLRP3 aktivasyonunda önemli bir rol oynar.
Şu anda yarasa araştırmaları ilgi görüyor. Uçmaya ek olarak, çeşitli biyolojik özellikler yarasaları memeliler arasında benzersiz kılar. Bat1K konsorsiyumu147 gibi araştırma organları ve tek hücreli RNA dizileme kullanan teknolojiler, yarasaların bağışıklık hücresi popülasyonlarının ve bunların spesifik işlevlerinin ve yollarının tarafsız ve daha derin karakterizasyonuna izin verir. Yarasa konak savunması, virüs iltihabını tolere eder ve dengeler, olağanüstü sağlık sağlar. Yarasalar tarafından bu homeostatik dengeyi sürdürmek için kullanılan kilit düzenleyiciler ve makineler, virüslerin insanlarda sayısız enflamatuar hastalığını kontrol etmek ve bunlarla mücadele etmek için değerli bir derstir.
HSR'nin inflamasyonun çözülmesi için gerekli bir yol olduğunu öneriyoruz. Son olarak, COVID-19 komplikasyonlarını potansiyel olarak azaltabilecekleri için HSR aktivatörlerinin kullanımının araştırılması gerektiğini öneriyoruz. Bununla birlikte, sabit inflamatuar yanıtların, IFN'ler aracılığıyla HSP70-indüklenmiş anti-viral interferon-gama (IFN-) üretimi (Jacquemin ve diğerleri, 2017) ile ilişkili olduğu gösterilmiş olsa da, HSP ekspresyonunu düzenler, bu da transkripsiyon oranını daha da arttırır. ısı şoku geni ve HSP'leri kodlayan mRNA'nın kararlılığının arttırılması (Zhao ve diğerleri, 2002).
SARS-CoV-2'ye karşı şu anda tavsiye edilen yeni geliştirilen aşıların başarılı olduğu kanıtlanmıştır, ancak bunların uygulanması, bazı eğilimli birey gruplarında otoimmün belirtilerle ilişkilendirilmiştir. Bu aşıların doğal enfeksiyonlardan daha belirgin bir tehlike oluşturmadığı gösterilmiştir, ayrıca hem hastalar hem de klinisyenler, esas olarak yetersiz veriler nedeniyle, otoimmün hastalıkların nüksetme veya kötüleşme potansiyel riskinden endişe duymaktadır. İlişkili aşılama riskinden kaçınmak, ayrıca aşının reddedilmesine yol açmamalıdır, denemeler, bu popülasyonlarda yeni uygulanan aşıların/adjuvanların altında yatan immünolojik mekanizmaları aydınlatacaktır.
yazarların katkısı
Yazarlar aktif olarak katkıda bulundular ve taslağı birlikte yazdılar. JD ve HS, el yazmasının içeriğini ve literatürünü tanımladı. JD rakamları hazırladı.
Rekabetçi Menfaat Beyanı
Tüm yazarlar, hiçbir çıkar çatışması olmaksızın eleştirel bir şekilde incelediler ve bu el yazması içeriğinin son sürümünü yayınlanmak üzere onayladılar.
Teşekkür
Bu taslağın yazılması sırasındaki katkıları için Dr. Thomas Ragnar Wood'a içtenlikle teşekkür etmek isteriz.

Referanslar
Ahn, M., Anderson, DE, Zhang, Q., Tan, CW, Lim, BL, Luko, K., ve diğerleri, 2019. Yarasalarda sönümlenmiş NLRP3-aracılı iltihaplanma ve özel bir viral için çıkarımlar rezervuar sahibi. Nat. Mikrobiyol. 4, 789–799.
Anckar, J., Sistonen, L., 2011. Isı stresi tepkisinde HSF1 fonksiyonunun düzenlenmesi: yaşlanma ve hastalık üzerindeki etkileri. Annu. Rev. Biochem. 80, 1089–1115.
Angelopoulou, A., Alexandris, N., Konstantinou, E., Mesiakaris, K., Zanidis, C., Farsalinos, K., ve diğerleri, 2020. Imiquimod-a toll-like reseptör 7 agonisti-ideal bir seçenektir COVID'in yönetimi için-19. çevre. Res. 188, 109858.
Araujo, MB, Naimi, B., 2020. Yayılma SARS-CoV-2 Coronavirüs muhtemelen iklim tarafından kısıtlanacak. medRxiv.
Baden, LR, El Sahly, HM, Essink, B., Kotloff, K., Frey, S., Novak, R., ve diğerleri, 2021. mRNA'nın etkinliği ve güvenliği-1273 SARS-CoV{ {3}} aşı. İngilizce J.Med. 384, 403–416.
Bakthisaran, R., Tangirala, R., Rao, CM, 2015. Küçük ısı şok proteinleri: hücresel fonksiyonlarda ve patolojide rol. Biochimica et Biophysica Açta (BBA)-Proteins and Proteomics 1854, 291–319.
Bannister-Tyrrell, M., Meyer, A., Faverjon, C., Cameron, A., 2020. Küresel olarak 29 Şubat'a kadar bildirilen vakalar için daha yüksek sıcaklıkların daha düşük COVID-19 insidansıyla ilişkili olduğuna dair ön kanıtlar 2020. medRxiv.
Baral, P., Batra, S., Zemans, RL, Downey, GP, Jeyaseelan, S., 2014. Bakteriyel akciğer enfeksiyonları sırasında Toll benzeri reseptörlerin farklı işlevleri. Am. J. Solunum. kritik Bakım Med. 190, 722–732.
Bauemfeind, F., Horvath, G., Stutz, A., Alnemri, E., MacDonald, K., Speert, D., ve diğerleri, 2009. Son teknoloji: NF-kappaB aktive edici model tanıma ve sitokin reseptörleri lisansı NLRP3 NLRP3 ifadesini düzenleyerek iltihaplı aktivasyon. J. Immunol. 183, 787–791.
Bausero, MA, Gastpar, R., Multhoff, G., Asea, A., 2005. IFN-'nin tümör tanımayı geliştirdiği alternatif bir mekanizma: ısı şoku proteini 72'nin aktif salınımı. J. Immunol. 175, 2900–2912.
Berry, JD, Jones, S., Drebot, MA, Andonov, A., Sabara, M., Yuan, XY, ve diğerleri, 2004. SARS koronavirüsüne karşı nötrleştirici monoklonal antikorun geliştirilmesi ve karakterizasyonu. J. Virol. Yöntemler 120, 87–96.
Birra, D., Benucci, M., Landolfi, L., Merchionda, A., Loi, G., Amato, P., ve diğerleri, 2020. COVID-19: doğuştan gelen bağışıklıktan bir ipucu. immünol. Res. 68, 161–168.
de Bittencourt Jr, PIH, Lagranha, DJ, Maslinkiewicz, A., Senna, SM, Tavares, AM, Baldissera, LP, ve diğerleri, 2007. LipoCardium: aterosklerotik lezyonları tamamen tersine çeviren endotel yönlendirmeli siklopentenon prostaglandin bazlı lipozom formülasyonu. ateroskleroz. 193, 245–258.
Burke, RM, Midgley, CM, Dratch, A., Fenstersheib, M., Haupt, T., Holshue, M., et al., 2020. COVID'si doğrulanmış hastalara maruz kalan kişilerin aktif olarak izlenmesi-19— Amerika Birleşik Devletleri, Ocak–Şubat 2020. Morb. Ölümlü. Haftalık Rep. 69, 245.
Cai, Q., Yang, M., Liu, D., Chen, J., Shu, D., Xia, J., et al., 2020. COVID-19 için favipiravir ile deneysel tedavi: açık -etiket kontrol çalışması. Mühendislik 6 (10),1192–1198.
Catanzaro, M., Fagiani, F., Racchi, M., Corsini, E., Govoni, S., Lanni, C., 2020. COVID'de immün yanıt-19: tetiklenen yolları hedefleyerek farmakolojik bir zorluğu ele alma SARS-CoV tarafından-2. Sinyal Trans. Hedef. Terapi. 5, 1–10.
Chan, JF-W., Kok, K.-H., Zhu, Z., Chu, H., To, KK-W., Yuan, S., ve diğerleri, 2020. 2019 roman insanının genomik karakterizasyonu -Wuhan'ı ziyaret ettikten sonra atipik pnömonili bir hastadan izole edilen patojenik koronavirüs. Ortaya Çıkan Mikrop Enfeksiyonları 9, 221–236.
Channappanavar, R., Fett, C., Mack, M., Ten Eyck, PP, Meyerholz, DK, Perlman, S., 2017. Şiddetli akut solunum sendromu koronavirüs enfeksiyonuna duyarlılıkta cinsiyete dayalı farklılıklar. J. Immunol. 198, 4046–4053.
Chen, H.-W., Kuo, H.-T., Wang, S.-J., Lu, T.-S., Yang, R.-C., 2005. In vivo ısı, şok proteini ile birleşir NF-κB aktivitesini düzenleyen septik karaciğer NF-κB/I-κB kompleksi. Şok. 24, 232–238.
Chen, I.-Y., Ichinohe, T., 2015. Konak inflamatuarlarının viral enfeksiyona tepkisi. Trendler Microbiol. 23, 55–63.
Chia, PY, Coleman, KK, Tan, YK, Ong, SWX, Gum, M., Lau, SK, et al., 2020. Hastane odalarında SARS-CoV-2 ile hava ve yüzey kontaminasyonunun tespiti enfekte hastalar Nat. komün. 11, 1–7.
CHIEN, JY, HSUEH, PR, CHENG, WC, YU CJ, YANG PC., 2006. Şiddetli akut solunum sendromunda sitokin/kemokin profillerinde ve pulmoner tutulumda geçici değişiklikler. Solunum bilimi. 11, 715–722.
Choudhury, A., Mukherjee, S., 2020. SARS-CoV-2 spike glikoproteinin ACE-2 reseptör homologları ve insan TLR'leri ile etkileşimlerinin karşılaştırmalı karakterizasyonuna ilişkin silico çalışmalarında. J.Med. Virol. 92, 2105–2113.
Cicco, S., Cicco, G., Racanelli, V., Vacca, A., 2020. Nötrofil hücre dışı tuzakları (NET'ler) ve hasarla ilişkili moleküler modeller (DAMP'ler): COVID-19 tedavisi için iki potansiyel hedef. medyat. İltihap 2020.
Cohen, M., 2020. COVID-19 üzerindeki baskıyı artırmak: terapötik bir müdahale olarak ısıtır. F1000Araştırma 9, 292.
Conti, C., De Marco, A., Mastromarino, P., Tomao, P., Santoro, M., 1999. Rinovirüs enfeksiyonunda hipertermik tedavinin antiviral etkisi. Antimikrob. Ajan Chemother. 43, 822–829.
Debnath, M., Banerjee, M., Berk, M., 2020. COVID-19 enfeksiyonuna genetik ağ geçitleri: risk, şiddet ve sonuçlar için çıkarımlar. FASEB J.34, 8787–8795.
Di, A., Xiong, S., Ye, Z., Malireddi, RS, Kometani, S., Zhong, M., ve diğerleri, 2018. Makrofajlardaki TWIK2 potasyum akış kanalı, NLRP3 iltihaplanma kaynaklı iltihaplanmaya aracılık eder. Bağışıklık 49, 56–65.e4.
Domingo-Fern´ Mendez, R., Coll, RC, Kearney, J., Breit, S., O'Neill, LA, 2017. Hücre içi klorür kanalı proteinleri CLIC1 ve CLIC4, IL-1 transkripsiyonunu indükler ve NLRP3 iltihaplı. J. Biol. kimya 292, 12077–12087.
Ernst, E., Pecho, E., Wirz, P., Saradeth, T., 1990. Düzenli sauna banyosu ve soğuk algınlığı insidansı. Ann. Med. 22, 225–227.
Evans, SS, Repasky, EA, Fisher, DT, 2015. Ateş ve bağışıklığın termal düzenlenmesi: bağışıklık sistemi ısıyı hisseder. Nat. Rev. Immunol. 15, 335–349.
Fears, AC, Klimstra, WB, Duprex, P., Hartman, A., Weaver, SC, Plante, KS, ve diğerleri, 2020. Aerosol süspansiyonlarında şiddetli akut solunum sendromu koronavirüs 2'nin kalıcılığı. ortaya. bulaştırmak. Dis. 26, 2168.
Feldmeyer, L., Keller, M., Niklaus, G., Hohl, D., Werner, S., Beer, H.-D., 2007. Enflamasom, UVB kaynaklı interlökin aktivasyonuna ve salgılanmasına aracılık eder{{3} } keratinositler tarafından. Curr. Biol. 17, 1140–1145.
Florindo, HF, Kleiner, R., Vaskovich-Kubi, D., Acúrcio, RC, Carreira, B., Yeini, E., ve diğerleri, 2020. COVID'e karşı immün aracılı yaklaşımlar-19. Nat. nanoteknoloji 15, 630–645.
Franchi, L., Park, JH, Shaw, MH, Marina-Garcia, N., Chen, G., Kim, YG ve diğerleri, 2008. Doğuştan gelen bağışıklık, enfeksiyon ve hastalıkta hücre içi NOD benzeri reseptörler. Hücre. Mikrobiyol. 10, 1–8.
Franchi, L., Eigenbrod, T., Mu˜ noz-Planillo, R., Nu˜ nez, G., 2009a. Enflamasyon: Bağışıklık yanıtlarını ve hastalık patogenezini düzenleyen bir kaspaz-1-aktivasyon platformu. Nat. immünol. 10, 241–247.
Franchi, L., Warner, N., Viani, K., Nu˜nez, G., 2009b. Nod benzeri reseptörlerin mikrobiyal tanıma ve konak savunmasındaki işlevi. immünol. 227, 106–128.
Gao, J., Tian, Z., Yang, X., 2020. Buluş: klorokin fosfatın klinik çalışmalarda COVID-19-ilişkili pnömoni tedavisinde belirgin bir etkisi olduğu gösterilmiştir.Biosci. Eğilimler 14 (1), 72–73.
Gautret, P., Lagier, J.-C., Parola, P., Meddeb, L., Mailhe, M., Doudier, B., ve diğerleri, 2020. Hidroksiklorokin ve azitromisin olarak COVID tedavisi{{2 }}: açık etiketli, randomize olmayan bir klinik araştırmanın sonuçları. Int. J. Antimikrob. Ajanlar 105949.
Ghinai, I., McPherson, TD, Hunter, JC, Kirking, HL, Christiansen, D., Joshi, K., ve diğerleri, 2020. Şiddetli akut solunum sendromu koronavirüs 2'nin (SARS) bilinen ilk kişiden kişiye bulaşması -CoV-2) ABD'de. Lancet 395, 1137–1144.
Gilroy, DW, Colville-Nash, P., Willis, D., Chivers, J., Paul-Clark, M., Willoughby, D., 1999. İndüklenebilir siklooksijenaz, anti-inflamatuar özelliklere sahip olabilir. Nat. Med. 5, 698–701.
Gorla, R., Erbel, R., Eagle, KA, Bossone, E., 2018. Girişimsel kardiyoloji çağında sistemik inflamatuar yanıt sendromları. Vasc. Eczane. 107, 53–66.
de Groot, NG, Bontrop, RE, 2020. COVID-19 Pandemi: Erkekler Arasındaki Yüksek Ölüm Oranının Sorumlusu Cinsiyet Tanımlı Dozaj Etkisi mi? Baharcı.
Guan, W.-j., Ni, Z.-y., Hu, Y., Liang, W.-h., Ou, C.-q., He, J.-x., ve diğerleri, 2020 Çin'de 2019 koronavirüs hastalığının klinik özellikleri. İngilizce J.Med. 382, 1708–1720.
Guo, Z.-D., Wang, Z.-Y., Zhang, S.-F., Li, X., Li, L., Li, C., ve diğerleri, 2020. Aerosol ve yüzey dağılımı şiddetli akut solunum sendromu koronavirüs 2 hastane servislerinde, Wuhan, Çin, 2020. Emerg. bulaştırmak. Dis. 26, 1586.
He, W.-t., Wan, H., Hu, L., Chen, P., Wang, X., Huang, Z., ve diğerleri, 2015. Gasdermin D, piroptoz uygulayıcısıdır ve aşağıdakiler için gereklidir: interlökin-1 salgısı. Hücre Res. 25, 1285–1298.
Heck, TG, Ludwig, MS, Frizzo, MN, Rasia-Filho, AA, Homem de Bittencourt Jr PI., 2020. Yüksek riskli COVID-19 hastalarında baskılanmış anti-enflamatuar ısı şoku tepkisi: temel araştırmalardan dersler (yarasalar dahil), akla gelebilecek tedavilere ışık tutun. klinik bilim 134, 1991–2017.
Hedayat, M., Netea, MG, Rezaei, N., 2011. Toll benzeri reseptörlerin hedeflenmesi: bulaşıcı hastalıklarla mücadelede on yıllık ilerleme. Lancet Enfeksiyonu. Dis. 11, 702–712.
Hoffmann, M., Kleine-Weber, H., Schroeder, S., Krüger, N., Herrler, T., Erichsen, S., ve diğerleri,2020. SARS-CoV-2 hücre girişi, ACE2 ve TMPRSS2'ye bağlıdır ve klinik olarak kanıtlanmış bir proteaz inhibitörü tarafından bloke edilir. Hücre. 181 (2), 271–280.
Huang, C., Wang, Y., Li, X., Ren, L., Zhao, J., Hu, Y., ve diğerleri, 2020. Wuhan, Çin'de 2019 yeni koronavirüs ile enfekte hastaların klinik özellikleri. Lancet 395, 497–506.
Huang, C., Wang, Y., Li, X., Ren, L., Zhao, J., Hu, Y., ve diğerleri, 2020. Wuhan, Çin'de 2019 yeni koronavirüs ile enfekte hastaların klinik özellikleri. Lancet 395, 497–506.
Ianaro, A., Maffia, P., Cuzzocrea, S., Mazzon, E., Santoro, MG, Di Rosa, M., ve diğerleri, 2003. 2-Cyclopenten-1-one and prostaglandin J2, sıçanlarda balon anjiyoplasti sonrası restenozu azaltır: NF-κB'nin rolü. FEBS Letonya 553, 21–27.
J¨ a¨ attel¨ a, M., 1993. Ana ısı şoku proteini hsp70'in aşırı ekspresyonu, fosfolipaz A2'nin tümör nekroz faktörü kaynaklı aktivasyonunu inhibe eder. J. Immunol. 151, 4286–4294.
J¨ a¨ attel¨ a, M., Wissing, D., 1992. Isı şoku proteinlerinin biyoloji ve tıpta ortaya çıkan rolü. Ann. Med. 24, 249–258.
Jacquemin, C., Rambert, J., Guillet, S., Thiolat, D., Boukhedouni, N., Doutre, MS, ve diğerleri, 2017. Isı şok proteini 70, plazmasitoid dendritik hücreler tarafından interferon-alfa üretimini güçlendirir: alaka düzeyi kutanöz lupus ve vitiligo patogenezi için. Br. J. Dermatol. 177, 1367–1375.
Jimenez-Guarde˜no, JM, Nieto-Torres, JL, DeDiego, ML, Regla-Nava, JA, FernandezDelgado, R., Casta˜no-Rodriguez, C., ve diğerleri, 2014. şiddetli akut solunum sendromu koronavirüs zarf proteini, viral patogenezin bir belirleyicisidir. PLoS Hastalığı. 10, e1004320.
Kim, ES, Choe, PG, Park, WB, Oh, HS, Kim, EJ, Nam, EY, ve diğerleri, 2016. Orta Doğu solunum sendromu koronavirüs enfeksiyonunun klinik ilerlemesi ve sitokin profilleri. J. Kore Med. bilim 31, 1717–1725.
Komune, N., Ichinohe, T., Ito, M., Yanagi, Y., 2011. Kızamık virüsü V proteini, NLRP3 inflamatuar aracılı interlökin-1 sekresyonunu inhibe eder. J. Virol. 85, 13019–13026.
Krause, M., Ludwig, M.S., Heck, T.G., Takahashi, H.K., 2015. Heat shock proteins and heat therapy for type 2 diabetes: pros and cons. Curr. Opinion Clin. Nut. Metabolic Care 18, 374–380.
Kunutsor, SK, Laukkanen, T., Laukkanen, JA, 2017a. Sık sauna banyosu, orta yaşlı beyaz erkeklerde pnömoni riskini azaltabilir: KIHD prospektif kohort çalışması. Nefes al. Med. 132, 161–163.
Kunutsor, SK, Laukkanen, T., Laukkanen, JA, 2017b. Sauna banyosu solunum yolu hastalıkları riskini azaltır: uzun vadeli ileriye dönük bir kohort çalışması. Avro. J. Salgın. 32, 1107–1111.
Le Chang, LZ, Gong, H., Wang, L., Wang, L., 2020. Kan bağışlarında ağır akut solunum sendromu koronavirüs 2 RNA'sı tespit edildi. ortaya. bulaştırmak. Dis. 26, 1631.
Levin, TC, Wickliffe, KE, Leppla, SH, Moayeri, M., 2008. Isı şoku, kaspaz - 1 aktivitesini inhibe ederken, aynı zamanda şarbon öldürücü toksin tarafından iltihaplanma aracılı aktivasyonunu da önler. Hücre. Mikrobiyol. 10, 2434–2446.
Li, F., 2016. Koronavirüs başak proteinlerinin yapısı, işlevi ve evrimi. Ann Rev. Virology 3, 237–261.
Liu, J., Liao, X., Qian, S., Yuan, J., Wang, F., Liu, Y., ve diğerleri, 2020a. Şiddetli akut solunum sendromu koronavirüs 2'nin topluluk bulaşması, Shenzhen, Çin, 2020. Emerg. bulaştırmak. Dis. 26, 1320.
Liu, Y., Ning, Z., Chen, Y., Guo, M., Liu, Y., Gali, NK, ve diğerleri, 2020c. İki Wuhan hastanesinde SARS-CoV-2'nin aerodinamik analizi. Doğa. 582, 557–560.
Liu, Y.-C., Kuo, R.-L., Shih, S.-R., 2020b. COVID-19: tarihte belgelenen ilk koronavirüs pandemisi. Biyom. J.43 (4), 328–333.
Lo, Y.-H., Huang, Y.-W., Wu, Y.-H., Tsai, C.-S., Lin, Y.-C., Mo, S.-T., ve diğerleri ., 2013. Farelerde ve insanlarda promiyelositik lösemi proteinini hedefleyerek NLRP3 enflamasomunun seçici inhibisyonu. Kan J, Am. Sos. Hematol. 121, 3185–3194.
Logunov, DY, Dolzhikova, IV, Shcheblyakov, DV, Tukhvatulin, AI, Zubkova, OV, Dzharullaeva, AS, et al., 2021. Güvenlik ve etkinlik of a rAd26 and rAd5 vector-based heterologous prime-boost COVID-19 aşısı: Rusya'da yapılan randomize kontrollü bir faz 3 denemesinin ara analizi. Lancet 397, 671–681.
Lu, A., Magupalli, VG, Ruan, J., Yin, Q., Atianand, MK, Vos, MR, ve diğerleri, 2014. ASC'ye bağlı iltihaplıların montajı için birleşik polimerizasyon mekanizması. Hücre. 156, 1193–1206.
Ma, Y., Zhao, Y., Liu, J., He, X., Wang, B., Fu, S., ve diğerleri, 2020. Sıcaklık değişiminin ve nemin COVID ölüm oranı üzerindeki etkileri{{1 }} Wuhan'da. medRxiv.
Man, SM, Karki, R., Kanneganti, TD, 2017. Enfeksiyöz hastalıklarda piroptoz, inflamatuar kaspazlar ve inflamatuarların moleküler mekanizmaları ve işlevleri. immünol. 277, 61–75.
Matthay, MA, Zemans, RL, Zimmerman, GA, Arabi, YM, Beitler, JR, Mercat, A.,ve diğerleri, 2019. Akut solunum sıkıntısı sendromu (Primer). Nat. Rev. Hastalık Primerleri 5 (1), 18.
Mayor, A., Martinon, F., De Smedt, T., P´etrilli, V., Tschopp, J., 2007. SGT1 ve HSP90'ın enflamasyon aktivitesindeki çok önemli bir işlevi, memeli ve bitki doğuştan gelen bağışıklık tepkilerini birbirine bağlar. Nat. immünol. 8, 497–503.
Medzhitov, R., 2008. Enflamasyonun kökeni ve fizyolojik rolleri. Doğa. 454, 428–435.
Miragem, AA, Homem de Bittencourt, PI, 2017. Menopozal sıcak basmalarında nitrik oksit-ısı şoku protein ekseni: dengesiz ısı şoku tepkisi ile ilişkili kronik enflamatuar hastalıkların ihmal edilmiş metabolik sorunları. Hımm. Üreme Güncelleme 23, 600–628.
Moreno-Eutimio, MA, L´opez-Macías, C., Pastelin-Palacios, R., 2020. SARS-CoV-2, SARS-CoV ve MERS-CoV'de TLR7/8 tarafından tanınan tek sarmallı RNA dizilerinin biyoinformatik analizi ve tanımlanması genomlar. Mikroplar Bulaşır. 22, 226–229.
Mu˜noz-Planillo, R., Kuffa, P., Martınez-Col´on, G., Smith, B., Rajendiran, T., Nú˜nez, G., 2013. K plus efflux, NLRP3, bakteriyel toksinler ve partikül madde ile iltihaplanma aktivasyonu. Bağışıklık. 38, 1142–1153.
Murck, H., 2020. Glisirizinin (Meyankökü) Covid-19 enfeksiyonunda semptomatik koruyucu etkisi? Ön. immünol. 11, 1239.
Netea, MG, Schlitzer, A., Placek, K., Joosten, LA, Schultze, JL, 2019. Doğal ve uyarlanabilir bağışıklık belleği: konağın patojenlere tepkisinde evrimsel bir süreklilik. Hücre Konağı Mikrop 25, 13–26.
Newsholme, P., de Bittencourt Jr, PIH, 2014. Yağ hücresi yaşlanma hipotezi: kronik hastalıkta iltihaplanmanın çözülmesini ortadan kaldırmaktan sorumlu bir mekanizma. Curr. Görüş Kliniği. Ceviz. Metabolik Bakım 17, 295–305.
Nieto-Torres, J., Verdi´aB´a guena, C., Jimenez-Guarde˜no, JM, Regla-Nava, JA, Casta˜no-Rodriguez, C., Fernandez-Delgado, R., et al. , 2015. Şiddetli akut solunum sendromu koronavirüs E proteini, kalsiyum iyonlarını taşır ve NLRP3 iltihaplanmasını aktive eder. Viroloji. 485, 330–339.
Nieto-Torres, JL, DeDiego, ML, Verdi´ aB´ aguena, C., Jimenez-Guarde˜no, JM, Regla Nava, JA, Fernandez-Delgado, R., et al., 2014. Şiddetli akut solunum sendromu koronavirüsü Zarf proteini iyon kanalı aktivitesi, virüs uygunluğunu ve patogenezini destekler. PLoS Hastalığı. 10, e1004077.
Novel CPERE, 2020. Çin'de 2019'da yeni koronavirüs hastalıkları (COVID-19) salgınının epidemiyolojik özellikleri. Zhonghua liu xing bing xue za zhi=Zhonghua liuxingbingxue za Zhi. 41, 145.
Oeckinghaus, A., Ghosh, S., 2009. NF-κB transkripsiyon faktörleri ailesi ve düzenlenmesi. Soğuk Kaynak Harb. Perspektif. Biol. 1, a000034.
O'Reilly, KM, Auzenbergs, M., Jafari, Y., Liu, Y., Flasche, S., Lowe, R., 2020. Dünya genelinde etkili iletim: COVID'de iklimin rolü-19 hafifletme stratejileri. Lancet Gezegeni. Sağlık 4, e172.
Organizasyon WH, 2014. Sağlık Hizmetlerinde Salgın ve Pandemik Eğilimli Akut Solunum Yolu Enfeksiyonlarının Enfeksiyon Önleme ve Kontrolü. Dünya Sağlık Örgütü.
Organizasyon WH, 2020. COVID Bağlamında Maske Kullanımına İlişkin Tavsiye-19: Geçici Rehberlik, 6 Nisan 2020. Dünya Sağlık Örgütü.
Panda, PK, Arul, MN, Patel, P., Verma, SK, Luo, W., Rubahn, H.-G., ve diğerleri, 2020. SARS-CoV için yapı tabanlı ilaç tasarımı ve immünoinformatik yaklaşım{{ 4}}. bilim Av. 6, eabb8097.
Pardi, N., Hogan, MJ, Porter, FW, Weissman, D., 2018. mRNA aşıları—aşı biliminde yeni bir çağ. Nat. Rev. Drug Discover. 17, 261.
Patel, AB, Verma, A., 2020. COVID-19 ve anjiyotensin dönüştürücü enzim inhibitörleri ve anjiyotensin reseptörü blokerleri: kanıt nedir? Jama. 323, 1769–1770.
Perregaux, D., Gabel, CA, 1994. Interleukin-1 beta olgunlaşması ve ATP ve nigerisine yanıt olarak salınması. Bu ajanların aracılık ettiği potasyum tükenmesinin, aktivitelerinin gerekli ve ortak bir özelliği olduğuna dair kanıt. J. Biol. kimya 269, 15195–15203.
Pica, F., Rossi, A., Santirocco, N., Palamara, A., Garaci, E., Santoro, M., 1996. Kombine IFN ve prostaglandin A1 tedavisinin vesiküler stomatit virüsü replikasyonu ve ısı şoku protein sentezi üzerindeki etkisi epitel hücrelerinde. Antivir. Res. 29, 187–198.
Polack, FP, Thomas, SJ, Kitchin, N., Absalon, J., Gurtman, A., Lockhart, S., ve diğerleri, 2020. BNT162b2 mRNA Covid-19 aşısının güvenliği ve etkinliği. İngilizce J.Med. 383, 2603–2615.
Polanco, C., Casta˜ n´ on-Gonz´ alez, J., Samaniego, J., Arabi, YM, Arifi, AA, Balkhy, HH, Najm, H., Aldawood, AS, Ghabashi, A., et al., 2014. Klinik seyir ve kritik hastaların sonuçları Orta Doğu solunum sendromu koronavirüs enfeksiyonu olan hastalar. Ann. Stajyer. Med. 160, 389–397.
Ramaiah, A., Arumugaswami, V., 2020. Yeni insan koronavirüsü 2019-nCoV'nin türler arası evrimine ve aşı geliştirme için tanımlayıcı bağışıklık belirleyicilerine ilişkin görüşler. bioRxiv.
de Rivero Vaccari, JC, Dietrich, WD, Keane, RW, de Rivero Vaccari, JP, 2020. The Inflammasome in Times of COVID-19. Ön. immünol. 11, 2474.
Ruland, J., 2014. Yanıcı: parçaları bir araya getirmek. Hücre. 156, 1127–1129.
Şahin, U., Muik, A., Derhovanessian, E., Vogler, I., Kranz, LM, Vormehr, M., ve diğerleri, 2020. COVID-19 aşısı BNT162b1, insan antikorunu ve TH 1 T'yi ortaya çıkarır hücre tepkileri. Doğa. 586, 594–599.
Sajadi, MM, Habibzadeh, P., Vintzileos, A., Shokouhi, S., Miralles-Wilhelm, F., Amoroso, A., et al., 5 Mart 2020. COVID için Potansiyel Yayılımı ve Mevsimselliği Tahmin Eden Enlem Analizi -19 (SSRN 3550308'de mevcuttur).
Samways, DSK, Li, Z., Egan, TM, 2014. P2X reseptörlerinde iyon akışının ilkeleri ve özellikleri. Ön. Hücre. Nörobilim. 8, 6.
Sansonetti, PJ, 2006. Doğuştan gelen tehlike sinyalleri ve doğuştan gelen sinyal verme tehlikeleri. Nat. immünol. 7, 1237–1242.
Santarpia, J., Rivera, D., Herrera, V., Morwitzer, M., Creager, H., Santarpia, G., ve diğerleri, 2020. SARS-CoV'nin aerosol ve yüzey bulaşma potansiyeli-2 . medRxiv 3 (Ön baskı çevrimiçi olarak Haziran ayında yayınlandı).
Sayedahmed, EE, Elkashif, A., Alhashimi, M., Sambhara, S., Mittal, SK, 2020. Yeni nesil grip aşılarını geliştirmek için adenoviral vektör tabanlı aşı platformları. Aşılar. 8, 574.
Schieber, AMP, Ayres, JS, 2016. Hastalık toleransı savunma stratejisi olarak termoregülasyon. Patojen Hastalığı 74.
Schmidt, FI, Lu, A., Chen, JW, Ruan, J., Tang, C., Wu, H., ve diğerleri, 2016. ASC adaptörünü tanıyan tek alanlı bir antikor fragmanı, ASC'nin rolünü tanımlar iltihaplı derlemede etki alanları. J. Uzm. Med. 213, 771–790.
Schroder, K., Tschopp, J., 2010. Enflamasomlar. Hücre 140, 821–832.
Serhan, CN, 2011. İltihabın çözümü: Şişedeki şeytan ve detaylar. FASEB J.25, 1441–1448.
Sha, W., Mitoma, H., Hanabuchi, S., Bao, M., Weng, L., Sugimoto, N., ve diğerleri, 2014. İnsan NLRP3 inflamatuarı, birden fazla bakteriyel RNA tipini algılar. Proc. Natl. Acad. bilim 111, 16059–16064.
Shi, J., Zhao, Y., Wang, K., Shi, X., Wang, Y., Huang, H., ve diğerleri, 2015. GSDMD'nin enflamatuar kaspazlar tarafından bölünmesi, piroptotik hücre ölümünü belirler. Doğa. 526, 660–665.
Shrivastava, G., Le´on-Ju´arez, M., García-Cordero, J., Meza-S´ anchez, DE, Cedillo Barr´on, L., 2016. Enflamasomlar ve viral enfeksiyonlardaki önemi. immünol. Res. 64, 1101–1117.
Singh, IS, Hasday, JD, 2013. Ateş, hipertermi ve ısı şoku tepkisi. Int. J. Hyperth. 29, 423–435.
Sun, J., Zhu, A., Li, H., Zheng, K., Zhuang, Z., Chen, Z., ve diğerleri, 2020a. Bir COVID-19 hastasının idrarından bulaşıcı SARS-CoV-2 izolasyonu. Ortaya Çıkan Mikrop Enfeksiyonları 9, 991–993.
Sun, X., Wang, T., Cai, D., Hu, Z., Liao, H., Zhi, L., ve diğerleri, 2020b. COVID-19 pnömonisinin erken evrelerinde sitokin fırtınası müdahalesi. Sitokin Büyüme Faktörü Rev. 53, 38–42.
Surprenant, A., Rassendren, F., Kawashima, E., North, RA, Buell, G., 1996. Hücre dışı ATP için sitolitik P2Z reseptörü, bir P2X reseptörü (P2X7) olarak tanımlandı. Bilim 272, 735–738.
Swanson, KV, Deng, M., Ting, JP-Y., 2019. NLRP3 inflamatuar: moleküler aktivasyon ve terapötik düzenleme. Nat. Rev. Immunol. 19, 477–489.
Talwar, S., Jin, J., Carroll, B., Liu, A., Gillespie, MB, Palanisamy, V., 2011. RNA bağlayıcı proteinin kaspaz aracılı bölünmesi HuR, hipoksik stresten sonra c-Myc protein ekspresyonunu düzenler . J. Biol. kimya 286, 32333–32343.
Tanaka, T., Shibazaki, A., Ono, R., Kaisho, T., 2014. HSP70, enflamatuar sinyali engellemek için nükleer faktör κB'nin p65 alt biriminin bozulmasına aracılık eder. bilim Sinyal. 7, ra119-ra.
Tang, T., Lang, X., Xu, C., Wang, X., Gong, T., Yang, Y., ve diğerleri, 2017. CLIC'lere bağlı klorür akışı, NLRP3 için önemli ve yakın bir yukarı akış olayıdır enflamatuar aktivasyon. Nat. komün. 8, 1–12.
Tisoncik, JR, Korth, MJ, Simmons, CP, Farrar, J., Martin, TR, Katze, MG, 2012. Sitokin fırtınasının gözüne. Mikrobiyol. Mol. Biol. 76, 16–32.
de Torre-Minguela, C., Mesa del Castillo, P., Pelegrín, P., 2017. NLRP3 ve pirin iltihapları: otoinflamatuar hastalıkların patofizyolojisindeki çıkarımlar. Ön. immünol. 8, 43.
Torres, J., Surya, W., Li, Y., Liu, DX, 2015. Viroporinlerin koronavirüslerde ve paramiksovirüslerde protein-protein etkileşimleri: antiviraller için yeni hedefler mi? virüsler. 7, 2858–2883.
Triantafilou, K., Hughes, TR, Triantafilou, M., Morgan, BP, 2013. Tamamlayıcı membran saldırı kompleksi, hücre içi Ca2 artı NLRP3 enflamatuar aktivasyonuna yol açan akışları tetikler. J. Hücre Bilimi 126, 2903–2913.
Tukaj, S., Kaminski, M., 2019. Otoimmün hastalıkların tedavisinde ısı şoku proteinleri: gerçek olamayacak kadar basit mi? Hücre Stresi Şaperonları 24, 475–479.
Tyrrell, D., Barrow, I., Arthur, J., 1989. Yerel hipertermi, doğal ve deneysel soğuk algınlığına fayda sağlar. Br. Med. J.298, 1280–1283.
Van Der Made, CI, Simons, A., Schuurs-Hoeijmakers, J., Van Den Heuvel, G., Mantere, T., Kersten, S., ve diğerleri, 2020. Şiddetli hastalığı olan genç erkeklerde genetik varyantların varlığı COVID-19. Jama. 324, 663–673.
Van Doremalen, N., Bushmaker, T., Morris, DH, Holbrook, MG, Gamble, A., Williamson, BN, ve diğerleri, 2020. SARS-CoV'nin aerosol ve yüzey kararlılığı-2 ile karşılaştırıldığında SARS-CoV-1. İngilizce J.Med. 382, 1564–1567.
Veras, FP, Pontelli, MC, Silva, CM, Toller-Kawahisa, JE, de Lima, M., Nascimento, DC, et al., 2020. SARS-CoV-2–tetiklenen nötrofil hücre dışı tuzakları COVID'e aracılık eder{ {4}} patoloji. J. Uzm. Med. 217.
Verkhratsky, DB, Pelegrín, P., 2014. Apoptosis-Associated Speck-Like Protein.
Villar, J., Ribeiro, SP, Mullen, J., Kuliszewski, M., Post, M., Slutsky, AS, 1994. Isı şoku yanıtının uyarılması, sepsis kaynaklı akut akciğer hasarında ölüm oranını ve organ hasarını azaltır modeli. kritik Bakım Med. 22, 914–921.
Voysey, M., Clemens, SAC, Madhi, SA, Weckx, LY, Folegatti, PM, Aley, PK, ve diğerleri, 2021. ChAdOx1 nCoV-19 aşısının (AZD1222) SARS-'ye karşı güvenliği ve etkinliği CoV-2: Brezilya, Güney Afrika ve Birleşik Krallık'ta yapılan dört randomize kontrollü çalışmanın ara analizi. Lancet 397, 99–111.
Wang, J., Guo, Y., Chu, H., Guan, Y., Bi, J., Wang, B., 2013. Kanser ilerlemesinde, tedavi yanıtlarında ve prognozda RNA bağlayıcı protein HuR'nin çoklu işlevleri . Int. J. Mol. bilim 14, 10015–10041.
Wang, M., Cao, R., Zhang, L., Yang, X., Liu, J., Xu, M., ve diğerleri, 2020a. Remdesivir ve klorokin, yakın zamanda ortaya çıkan yeni koronavirüsü (2019-nCoV) in vitro etkili bir şekilde inhibe eder. Hücre Res. 30, 269–271.
Wang, W., Ye, L., Ye, L., Li, B., Gao, B., Zeng, Y., ve diğerleri, 2007. IL-6 ve TNF- kaynaklı yukarı regülasyonu NF-κB yolu aracılığıyla fare makrofajlarında SARS-koronavirüs başak proteini tarafından. Virüs Çöz. 128, 1–8.
Wang, W., Xu, Y., Gao, R., Lu, R., Han, K., Wu, G., ve diğerleri, 2020b. Farklı klinik örnek türlerinde SARS-CoV-2 tespiti. Jama. 323, 1843–1844.
Weiss, SR, Leibowitz, JL, 2011. Coronavirüs Patogenezi. Virüs Araştırmasındaki Gelişmeler. Elsevier, s. 85–164.
Wells, CR, Stearns, JK, Lutumba, P., Galvani, AP, 2020. Afrika kıtasında COVID-19. Lancet Enfeksiyonu. Dis. 20 (12), 1368–1370.
Widge, AT, Rouphael, NG, Jackson, LA, Anderson, EJ, Roberts, PC, Makhene, M., ve diğerleri, 2021. SARS-CoV-2 mRNA-1273 sonrası yanıtların dayanıklılığı aşılama. İngilizce J.Med. 384, 80–82.
Wu, A., Peng, Y., Huang, B., Ding, X., Wang, X., Niu, P., ve diğerleri, 2020a. Çin menşeli yeni koronavirüsün (2019-nCoV) genom bileşimi ve sapması. Hücre Konağı Mikrop 27 (3), 325–328.
Wu, C., Chen, X., Cai, Y., Zhou, X., Xu, S., Huang, H., ve diğerleri, 2020b. Çin'in Wuhan kentinde 2019 koronavirüs hastalığı pnömonisi olan hastalarda akut solunum sıkıntısı sendromu ve ölümle ilişkili risk faktörleri. JAMA Stajyeri Med. 180 (7), 934–943.
Yao, Y., Jeyanathan, M., Haddadi, S., Barra, NG, Vaseghi-Shanjani, M., Damjanovic, D., et al., 2018. Otonom hafıza alveoler makrofajlarının uyarılması, T hücresi yardımı gerektirir ve kritiktir eğitilmiş bağışıklığa Hücre 175, 1634–1650.e17.
Zhang, H., Kim, Y., Slutsky, A., 1999. Sitokorumada Isı Şoku Proteinlerinin Rolü. Anestezi, Ağrı, Yoğun Bakım ve Acil Tıp—APICE. Springer, s. 561–570.
Zhang, Y., Zhang, J., Chen, Y., Luo, B., Yuan, Y., Huang, F., ve diğerleri, 2020. SARS-CoV-2'ün ORF8 proteini, bağışıklığa aracılık eder MHC-I'in güçlü aşağı regülasyonu yoluyla kaçınma. biorxiv.
Zhao, C., Zhao, W., 2020. NLRP3 inflammasome-ana bilgisayar-virüs etkileşimlerinde önemli bir oyuncu. Ön. immünol. 11, 211.
Zhao, M., Tang, D., Lechpammer, S., Hoffman, A., Asea, A., Stevenson, MA, ve diğerleri, 2002. Çift sarmallı RNA'ya bağımlı protein kinaz (pk), termotolerans için esastır , HSP70 birikimi ve stres sırasında ARE içeren HSP70 mRNA'nın stabilizasyonu. J. Biol. kimya 277, 44539–44547.
Zheng, S., Fan, J., Yu, F., Feng, B., Lou, B., Zou, Q., ve diğerleri, 2020. SARS-CoV ile enfekte olan hastalarda viral yük dinamikleri ve hastalık şiddeti{ {2}}, Çin'in Zhejiang eyaletinde, Ocak–Mart 2020: geriye dönük kohort çalışması. BMJ. 369.
Zhou, F., Yu, T., Du, R., Fan, G., Liu, Y., Liu, Z., ve diğerleri, 2020a. Çin'in Wuhan şehrinde COVID-19 ile yatan yetişkin hastalarda klinik seyir ve mortalite için risk faktörleri: retrospektif bir kohort çalışması. Lancet 395 (10229), 1054–1062.
Zhou, P., Yang, X.-L., Wang, X.-G., Hu, B., Zhang, L., Zhang, W., ve diğerleri, 2020b. Yarasa kökenli olması muhtemel yeni bir koronavirüs ile ilişkili bir pnömoni salgını. Doğa 579, 270–273.
Zhu, N., Zhang, D., Wang, W., Li, X., Yang, B., Song, J., ve diğerleri, 2020. Çin'de pnömonili hastalardan yeni bir koronavirüs, 2019. N. ingilizce J.Med. 382 (8), 727–733.