Boyuna Bağışıklık Profili Oluşturma, COVID-19-iyileşme dönemindeki bireylerde Uzun Vadeli Humoral Bağışıklığa Aracılık Eden Baskın Epitopları Ortaya Çıkarıyor
Sep 12, 2023
Arka plan: Şiddetli akut solunum sendromu koronavirüsü 2 (SARS-CoV-2), bugüne kadar 5,2 milyon ölümle sonuçlanan küresel bir salgına neden olan oldukça patojen ve bulaşıcı bir koronavirüstür. Uzun vadeli bağışıklığın serolojik özelliklerine, özellikle de SARS-CoV-2 enfeksiyonundan sonra kalıcı antikor yanıtlarına aracılık eden baskın epitoplara ilişkin soruların açıklığa kavuşturulması gerekmektedir.
Amaç: Koronavirus hastalığı 2019 (COVID-19) hastalarındaki bağışıklık tepkilerinin kinetiğini ve ömrünün yanı sıra SARS-CoV-2'ye karşı sürekli uzun süreli humoral bağışıklıktan sorumlu epitopları incelemeyi amaçladık.
Yöntemler: Ağırlıklı olarak orta şiddette COVID-19 semptomları yaşayan 31 kişide SARS-CoV-2 bağışıklık dinamiklerini hastalığın başlangıcından sonraki 180 ila 220 güne kadar değerlendirdik, ardından sorumlu baskın epitopların proteom çapında bir profilini çıkardık. Kalıcı humoral bağışıklık tepkileri.
Sonuçlar: Uzunlamasına analiz, SARS-CoV-2 enfeksiyonundan sonra erken aşamalarda sitokin üretiminin aktivasyonunun yanı sıra, SARS-CoV-2 spike proteinine spesifik antikorların ve nötralize edici antikorların COVID-19 hastalarında sürekli olduğunu ortaya çıkardı. Uzun vadeli antikor yanıtlarına aracılık edebilen yüksek derecede reaktif epitopların, spike ve ORF1ab proteinlerinde yer aldığı gösterilmiştir. SARS-CoV-2 spike proteininin anahtar epitopları, endemik insan koronavirüsleri arasında değişen derecelerde dizi homolojisi ve erken SARS-CoV arasındaki yüksek dizi özdeşliği ile S1 alt biriminin ve S2 alt biriminin N-terminal alanıyla eşlendi. CoV-2 (Wuhan-Hu- 1) ve mevcut dolaşımdaki varyantlar.

cistanche takviyesi faydaları-bağışıklık sistemi nasıl güçlendirilir
Çözüm: SARS-CoV-2 enfeksiyonu, uzun vadeli bağışıklık tepkilerine aracılık eden ORF1ab proteinlerini ve spike'ta yer alan baskın epitopları hedef alarak, COVID-19'la iyileşen bireylerde kalıcı humoral bağışıklığa neden olur. Bulgularımız akılcı aşı tasarımına ve teşhis geliştirmeye yardımcı olacak bir yol sağlıyor. (J Allergy Clin Immunol 2022;149:1225-41.)
Anahtar Kelimeler:
SARS-CoV-2, COVID-19, uzun vadeli bağışıklık tepkisi, humoral bağışıklık, proteom çapında peptit mikrodizisi, baskın epitop
Devam eden koronavirüs hastalığı 2019 (COVID-19) salgınının etken patojeni olan şiddetli akut solunum yolu sendromu koronavirüs 2 (SARS-CoV- 2), oldukça patojen olduğu bilinen diğer 2 insanı da içeren Betacoronavirüs cinsine aittir. koronavirüsler: Şiddetli akut solunum sendromu (SARS) ve Orta Doğu solunum sendromu (MERS) koronavirüsleri.1 Kaydedilen ilk vakanın Aralık 2019'un sonlarında ortaya çıkmasından bu yana, SARS-CoV-2 enfeksiyonu 263 milyonu aşkın vakayla sonuçlandı Kasım 2021 itibarıyla dünya çapında doğrulanmış vakalar ve 5,2 milyon ölüm; 5 kıtada 220 ülke ve bölgeyi etkilemektedir.2 Enfeksiyondan sonra klinik bulgular, asemptomatik enfeksiyonlar, hafif veya orta dereceli semptomlar ve hatta yaşamı tehdit eden şiddetli zatürre dahil olmak üzere geniş bir yelpazeye yayılmaktadır.3 Çok çeşitli aşı yaklaşımlarının mevcudiyetine rağmen, birçok ülke hala yeni enfeksiyon dalgalarını kontrol altına almak için mücadele ediyor; artan bulaşıcılık ve antiviral bağışıklık tepkilerine karşı direnç sergileyen virüs varyantları ortaya çıkıyor. Nötralize edici antikorların aracılık ettiği etkili bir humoral bağışıklık tepkisi, enfeksiyonu bloke etmek ve viral patojenleri ortadan kaldırmak için güçlü ve vazgeçilmez bir adaptif bağışıklığa sahip olmalıdır. SARS-CoV-2 enfeksiyonundan sonra, hastalık başlangıcından 7 ila 14 gün sonra enfekte bireyler arasında yüksek oranda (%90'ın üzerinde) güçlü serokonversiyon gözlemlendi.4-6 Antijene özgü IgA, IgG, ve SARS-CoV-2'nin spike proteini (S) ve nükleokapsid proteinini (N) tanıyan IgM, hastalığın akut fazında ve iyileşmenin erken evresinde tespit edilebildi.4,5,7 Nötralize edici antikorların büyüklüğü, yaş, semptomatik enfeksiyon ve hastalığın ciddiyeti ile ilişkili olabilir. Yaşlı hastalar ve şiddetli COVID{30}} semptomları sergileyen bireyler, daha yüksek seviyelerde nötralize edici antikorlar geliştirme eğilimindedir.4,8-10 Antikor yanıtlarının uzun ömürlülüğüyle ilgili çeşitli çalışmalar, virüse karşı serum/plazma reaktivitesinde bir kayba rağmen Bazı semptomatik COVID{33}} vakalarında zaman içinde antijenlerin azalması ve nötralize edici antikor titrelerinin azalmasına rağmen, KOVİD-19 iyileşen bireylerde enfeksiyondan sonra 8 ila 12 aya kadar genel olarak uzun süreli humoral bağışıklıkta sürekli bir düzeyde gözlemlendi .10-13 Ayrıca, SARS-CoV-2 antijenine özgü bellek B hücrelerinin sayısı en az 6 ila 12 ay boyunca sabit kaldı12,13 ve eksprese eden B hücresi klonlarının devam eden seçimi ve birikimi nötrleştirici antikorlar12,14 SARSCoV-2 enfeksiyonundan sonra kalıcı humoral bağışıklığın korunduğunu gösterir.

cistanche takviyesi faydaları-bağışıklığı artırır
Nötralize edici antikorlar, viral enfeksiyona karşı konak savunmasında temel bir rol oynar. SARS-CoV-2'nin oldukça güçlü monoklonal antikorlarından oluşan bir panel tanımlanmıştır; bu panel, öncelikle viryon yüzeyinde trimerler halinde birleşen ve virüs girişini kolaylaştıran, S proteininin reseptör bağlanma alanında yer alan epitopları hedef alır15-17. ve anjiyotensin dönüştürücü enzim 2 reseptörüne bağlanma üzerine füzyon.18 S1 alt ünitesinin N-terminal alanı (NTD) ve S2 alt ünitesi dahil olmak üzere S proteininin diğer bölgeleri de nötrleştirici antikorları indükleyebilen immünojenik epitoplar içerir.16 ,19,20 Nötrleştirmenin yanı sıra SARS-CoV-2 antikorları, doğal öldürücü hücreler tarafından tetiklenen antikora bağımlı fagositoz ve monositler veya makrofajlar tarafından antikora bağımlı sitotoksisite gibi Fc aracılı efektör işlevler aracılığıyla in vivo koruma sağlayabilir. 21,22 Viral enfeksiyonlarla mücadeleye ek olarak, doğal enfeksiyon veya aşılama yoluyla üretilen antikorlar, inflamasyon aktivasyonunun artması veya antijen/antikor immün kompleksi oluşumu yoluyla veya Fc'ye bağımlı işlevler aracılığıyla virüs enfektivitesinin artması yoluyla virüs patogenezini kolaylaştırabilir,23-25 ancak SARS-CoV-2 bağlamında in vivo olarak viral enfeksiyonda artış gözlemlenmemiştir. Antikor yanıtlarının bu farklı rolleri, SARSCoV-2 epitoplarının sistematik bir karakterizasyonunun yanı sıra nötrleştirici veya nötrleştirici olmayan epitopları hedef alan uzun ömürlü antikorların özelliklerini gerektirir. SARS-CoV-2 enfeksiyonundan sonra antikor tepkilerinin kinetiği ve süresine ilişkin son gelişmelere rağmen, uzun vadeli humoral bağışıklık tepkilerini sürdüren belirgin epitoplara ilişkin boylamsal analiz hâlâ sınırlıdır. Önceki çalışmalarda, esas olarak ELISA tabanlı analizler,26,27 faj veya bakteri görüntüleme tabanlı yaklaşımlar28-31 ve mikrodizi tabanlı teknolojiler kullanılarak, COVID-19 ile enfekte bireylerde antikor tepkisinin epitoplarının profili çıkarılmıştı.30,{{ 38}} SARS-CoV-2 S proteininin çeşitli immünodominant epitopları tanımlanmıştır; en sık tespit edilen bölgeler, S2 alt biriminin füzyon peptidine (FP) yakın veya bu peptidi kapsayan şekilde haritalanmıştır; ikinci yedili, S2 alt birimi içinde ve S1 alt biriminin C-terminal alanı üzerinde tekrarlanır.26,28-30, 32,33 Ek olarak serolojik tarama, N proteini, membran (M) proteini ve ORF1ab, ORF3a ve ORF7a dahil olmak üzere SARS-CoV-2 proteomu boyunca diğer proteinlerde bulunan epitopları da ortaya çıkardı.28-30, 34,35 Önceki çalışmalar antijenik epitoplara ilişkin önemli bilgiler sağlasa da, bu çalışmalar büyük ölçüde erken iyileşme aşamasındaki COVID{57}} hastalarının epitop profilinin çıkarılmasına odaklanmıştır. Dayanıklı SARS-CoV-2'ye özgü antikor tepkilerine aracılık eden kesin epitopların yanı sıra epitop tanıma dinamiklerinin açıklanması gerekmektedir. Burada, COVID{60}} hastalarındaki humoral bağışıklık tepkilerinin kinetiği ve uzun ömürlülüğü, özellikle de SARS-CoV-2'ye karşı uzun süreli bağışıklıktan sorumlu epitoplar hakkında daha derin bir anlayış elde etmek için kapsamlı bir boylamsal analiz gerçekleştirdik. 31 COVID{65}} hastasında semptomların başlangıcından sonraki 180 ila 220 güne kadar bağışıklık profili oluşturma. Antijen bağlayıcı ve nötralize edici antikorların yanı sıra serum sitokin seviyelerinin değerlendirilmesine dayanarak, ayrıca bir peptit kullanarak kalıcı humoral bağışıklık yanıtlarına aracılık eden SARSCoV-2'nin ORF1ab, S ve N proteinlerinde bulunan bir epitop paneli belirledik. SARS-CoV-2'nun tüm proteomunu kapsayan mikrodizi. Sonuçlarımız viral enfeksiyonun üstesinden gelmek için uzun vadeli bağışıklığın özelliklerine ışık tutacak ve akılcı aşı tasarımına ve gelişmiş serolojik teşhis araçlarının geliştirilmesine yardımcı olacaktır.

YÖNTEMLER
Çalışma katılımcıları ve örnek toplama
SARS-CoV-2'ye yönelik bağışıklık tepkilerinin kinetiğini boylamsal olarak değerlendirmek için, Nantong Üniversitesi'ne (Nantong) Bağlı Nantong Üçüncü Hastanesine kabul edilen SARS-CoV-2 ile enfekte 31 kişiden 101 serum örneği toplandı. , Çin) Ocak ve Mart 2020 arasında. Tüm hastalara ters transkripsiyon kantitatif PCR testi yoluyla doğrulanmış SARS-CoV-2 enfeksiyonu tanısı konuldu; Çin Halk Cumhuriyeti Ulusal Sağlık Komisyonu tarafından yayınlanan Yeni Coronavirüs Pnömonisi için Tanı ve Tedavi Protokolü'nün 7. versiyonuna göre hastalık şiddeti hafif ila orta şiddette (şiddetli olmayan) veya şiddetli COVID-19 olarak tanımlandı.36 Hastalar takip edildi Akut enfeksiyonun iyileşmesinden sonra 4 ila 8 ay boyunca uzunlamasına yukarı doğru. Kan örnekleri, 31 çalışma katılımcısı arasındaki 20 hasta için semptomların başlangıcından sonraki 4 ila 219 gün arasında uzunlamasına bir şekilde toplandı (kişi başına ortalama 4,5 örnek, 2 ila 8 arasında değişen), her bir hasta için tek zaman noktalı örnekleme yapıldı. geç iyileşme döneminde olan diğer 11 kişi (hastalığın başlangıcından sonraki 122 ila 214. günler). Buna göre yaş ve cinsiyet açısından uyumlu sağlıklı donörlerden alınan serumlar (n 5 20) da kontrol grubu olarak dahil edildi. Hiçbir çalışma katılımcısının önceden SARS veya MERS ile belgelenmiş bir enfeksiyonu yoktu.
Çalışma, Nantong Üniversitesi'ne bağlı Nantong Üçüncü Hastanesi'nin etik kurulu tarafından onaylandı (onay EL2020006). Çalışma katılımcılarının her birinden yazılı bilgilendirilmiş onam alındı. Serum, santrifüjleme yoluyla serum jel tüplerinde periferik kandan ayrıldı, bölümler halinde oluşturuldu ve kullanımdan önce 280°C'de saklandı.
Hücre hatları
HEK293T ve Huh7 hücreleri, %10 ısıyla inaktive edilmiş fetal sığır serumu (Gibco), 100 U/mL penisilin (Gibco) ve 100 mg/mL penisilin (Gibco) ile desteklenmiş Dulbecco ile modifiye edilmiş Eagle ortamında (Gibco; Thermo Fisher Scientific, Waltham, Mass) kültürlendi. mL streptomisin (Gibco), 37°C'de %5 C02 ile.

erkekler için cistanche faydaları-bağışıklık sistemini güçlendirir
Cistanche Enhance Immunity ürünlerini görüntülemek için buraya tıklayın
【Daha fazlasını isteyin】 E-posta:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
IgG antikorunun ELISA ile tespiti
İnsan serum numunelerindeki antijen bağlayıcı IgG antikorlarının seviyeleri ELISA ile belirlendi. Doksan altı oyuklu ELISA plakası (Corning, Corning, NY), SARS-CoV-2 nükleokapsid proteini (Sino Biological, Pekin, Çin, katalog no. 40588-V08B) ile önceden kaplandı. , kuyucuk başına 50 ng) veya spike proteini (Sino Biological, 40589-V08B1, kuyucuk başına 100 ng), SARS-CoV spike proteini (Sino Biological, 40634-V08B, kuyu başına 100 ng) kuyu) veya MERS-CoV spike proteini (Sino Biological, 40069-V08B, kuyucuk başına 50 ng) gece boyunca 48°C'de. %0,05 Tween 20 (PBS-T) içeren fosfat tamponlu salinde (PBS) %5 yağsız süt ile 37°C'de 2 saat süreyle bloke edildikten sonra, 1 başlangıç seyreltmesinde 3-seri olarak seyreltilmiş ısıyla inaktive edilmiş serum numuneleri :200, önceden kaplanmış plakalara 37°C'de 2 saat süreyle eklendi. Kuyucuklar her aşama arasında 3 kez PBS-T ile yıkandı. Reaksiyonlar, yaban turpu peroksidazı ile konjuge anti-insan IgG antikoru (Abcam, Cambridge, Birleşik Krallık, 1:100, 000 seyreltme) ile 1 saat boyunca 37°C'de inkübasyon ve ardından tetrametilbenzidin substratının (Life Technologies, Carlsbad) eklenmesiyle görselleştirildi. , Kaliforniya). Gelişen reaksiyonlar 2 mol H2SO4 ile durduruldu ve absorbans, düzeltme dalga boyu 630 nm'ye (OD450 2 OD630) ayarlanarak 450 nm'de ölçüldü. Bağlanma antikorlarının uç nokta titresini hesaplamak için veriler, eğrinin doğrusal kısmı (y 5 kx 1 b) içindeki düzeltilmiş optik yoğunluk (OD) değerlerine (OD450 2 OD630) karşı serum dilüsyonlarının log10 grafiği çizilerek doğrusallaştırıldı. , r2 > 0,99) ve ayarlanmış OD değerinin (OD450 2 OD630) 5 0 bir uç nokta titresi verecek şekilde hesaplandığı serum seyreltmesi. Peptid ile immünize edilmiş farelerdeki antijene spesifik IgG antikorları, peptit bazlı ELISA ile değerlendirildi. Kısaca, 96-kuyu ELISA plakaları (Thermo Fisher Scientific), gece boyunca 48°C'de karbonat tamponu (pH 9.6) içindeki 4 karışık peptitten (peptitler 318, 356, 510 ve 530) oyuk başına 1 mg ile kaplandı. %5 yağsız süt içeren PBS-T ile bloke edildikten sonra kuyucuklar, 1:40'ta seyreltilmiş serum örnekleriyle 1 saat boyunca 37°C'de inkübe edildi. Daha sonra plakalar yıkandı ve yaban turpu peroksidaz konjuge anti-fare IgG antikoru (Abcam) ile inkübe edildi. Reaksiyonlar tetrametilbenzidin substratı (Life Technologies) ile görselleştirildi ve reaksiyonların 2 mol H2SO4 ile durdurulmasının ardından 450 nm'deki absorbans ölçüldü.
Psödovirüs üretimi ve titrasyonu
SARS-CoV-2 (NC_045512) veya SARS-CoV (AY291315.1) C-terminal 19 aa delesyonlu spike proteinini veya MERS-CoV (JX{{10)'u kodlayan kodon optimizasyonlu gen }}) C-terminali 16 aa ile kesilmiş spike proteini sırasıyla pcDNA3.1(1) vektörüne klonlandı. 100 mm'lik bir doku kültürü kabında kültürlenen HEK 293T hücreleri, polietilenimin (Polysciences) kullanılarak 1 mg plazmit kodlayan spike proteini ve 15 mg çevre eksikliği olan, lusiferaz eksprese eden omurga (pNL4-3.luc.RE) ile birlikte transfekte edildi. , Warrington, Pa). Psödovirüs içeren hücre kültürü süpernatanları, transfeksiyondan 48 saat sonra toplandı, filtrelendi ve bölüntüler halinde 280°C'de saklandı. Virüs titrelerinin (%50 doku kültürü bulaşıcı dozu) belirlenmesi için, psödovirüslerin seri seyreltileri, 96-kuyu plakalarına önceden tohumlanmış 1 3 104 Huh7 hücrelerine eklendi. 12 saatlik enfeksiyondan sonra virüs içeren ortam, taze bir büyüme ortamı ile değiştirildi ve hücreler, 48 saat daha kültürlendi. Hücre lizizinin lusiferaz aktivitesi, bir mikroplaka okuyucu (BioTek Instruments, Winooski, Vt) kullanılarak Steady-Glo Luciferase Assay System (Promega, Madison, Wisc) ile ölçüldü ve ortalama arka plan değerinin 10 katından daha yüksek bağıl lüminesans birimleri üreten kuyucuklar dikkate alındı. pozitif.
Sahterus nötralizasyon deneyi
COVID-19 hastalarından veya sağlıklı donörlerden alınan ısıyla inaktive edilmiş serum numuneleri seri olarak 2-kat seyreltildi ve 37°C'de 1 saat boyunca %50 doku kültürü enfeksiyon dozunda 200 psödovirüs ile inkübe edildi. Karışımlar daha sonra 96-kuyu plakalarına iki kopya halinde önceden tohumlanmış Huh7 hücrelerini enfekte etmek için uygulandı. Kuyucuklar enfeksiyondan 12 saat sonra taze büyüme ortamı ile dolduruldu ve hücrelerin lusiferaz aktivitesi 48 saat sonra belirlendi. SARS-CoV-2 ve SARS-CoV psödovirüslerine karşı %50 nötralizasyon titreleri (NT50), GraphPad Prism 8.0 yazılımı (GraphPad Software, La Jolla, Calif) kullanılarak doğrusal olmayan regresyonla hesaplandı; ve MERS-CoV psödovirüsünün NT50'si, serum numuneleri uygulanmadan virüs kontrolüne kıyasla bağıl lüminesans birimlerinde %50'lik bir azalmayla sonuçlanan en yüksek serum seyreltmesi olarak tanımlandı.
Protein mikrodizi bazlı sitokin tespiti
Çoklu sitokinlerin kantitatif ölçümü (IL-1a, IL-1b, IL- 4, IL-6, IL-8, IL-10 Serum örneklerinde IL-13, MCP-1, IFN-g ve TNF-a), üreticinin protokolüne göre bir multipleks ELISA dizisi (RayBiotech, Peachtree Corners, Ga) kullanılarak gerçekleştirildi. Kısaca, sitokine özgü antikorlarla önceden kaplanmış cam slaytlar, oda sıcaklığında 30 dakika süreyle örnek seyreltici ile bloke edildi, ardından 60 mL 2-kat seyreltilmiş serum numuneleri veya sitokin standart seyreltileri eklendi. 48°C'de gece boyunca inkübasyonun ardından slaytlar 5 kez yıkandı ve 80 mL biyotinlenmiş tespit antikor kokteyli ve ardından Cy3 eşdeğer boya konjuge streptavidin ile oda sıcaklığında 1 saat süreyle boyandı. Floresan yoğunluğu InnoScan 300 mikrodizi tarayıcı (Innopsys, Chicago, III) tarafından 532 nm'de tespit edildi ve veriler Q-Analyzer yazılımı (RayBiotech) ile analiz edildi.
Sığır serum albümini ile peptid sentezi ve konjugasyonu
SARS-CoV-2 proteomunu kapsayan toplam 515 peptit (15 aa uzunluğunda, 11 aa örtüşen), SARS-CoV'nin amino asit dizisi temel alınarak GL Biochem (Şanghay, Çin) tarafından sentezlendi. -2 Wuhan-Hu'yu zorlayın-1. Peptitler, üreticinin talimatlarına göre çapraz bağlayıcı Sulfo-SMCC (Thermo Fisher Scientific) kullanılarak sığır serum albümini (BSA) ile konjuge edildi. Kısaca, BSA'ya molar fazlalığın 30- katı kadar Sulfo-SMCC eklendi, ardından PBS'ye diyaliz uygulandı. Daha sonra, sistein içeren peptid 1:1 (ağırlık/ağırlık) oranında eklenmiş, 2 saat boyunca inkübe edilmiş ve ayrıca serbest peptidleri ortadan kaldırmak için PBS ile diyalize tabi tutulmuştur.
Peptit mikrodizi üretimi
Peptid mikrodizisini, SARS-CoV-2 peptitlerini ve ayrıca negatif kontrol (BSA) ve pozitif kontrolleri (anti-insan IgG ve anti-insan IgM antikorları; Sigma-Aldrich, St Louis, Mo) hazırlamak. , bir Super Marathon yazıcı (Arrayjet, Edinburgh, İskoçya, Birleşik Krallık) kullanılarak üç kopya halinde PATH substrat slaytları (Grace Bio-Labs, Bend, Ore) üzerinde immobilize edildi. Daha sonra peptit mikrodizileri daha sonra kullanılmak üzere 280°C'de muhafaza edildi.

cistanche tubulosa-bağışıklık sistemini iyileştirir
Mikrodizi tabanlı epitop haritalaması
Mikrodizi bazlı serum analizi, Li ve ark.37 gibi küçük değişikliklerle yapıldı. Aynı alt diziler için ayrı odalar oluşturmak amacıyla, her bir peptit mikrodizi slaydının üzerine bir 14-bölme kauçuk contası monte edildi. Slayt dizileri kullanımdan önce oda sıcaklığına kadar ısıtıldı, ardından 3 saat boyunca PBS-T içerisinde %3 BSA ile bloke edildi. COVID-19 hastalarından alınan serum numuneleri veya 20 sağlıklı donörden (kontrol grubu) alınan havuzlanmış serumlar, numunelerin çoğu için 1:200'de PBS-T'de seyreltildi ve ardından her bir alt dizi ile 2 saat süreyle inkübe edildi. 48C. Diziler PBS-T ile yıkandı ve 1:1000 seyreltmede Cy3-konjuge keçi anti-insan IgG'si ve Alexa Fluor 647– konjuge eşek anti-insan IgM'si (Jackson ImmunoResearch Laboratories, West Grove, Pa) ile inkübe edildi. her biri oda sıcaklığında 1 saat süreyle. İnkübasyonun ardından diziler PBS-T ile yıkandı ve daha sonra oda sıcaklığında santrifüjleme yoluyla tamamen kurutuldu. Daha sonra diziler, bir LuxScan 10K-A mikrodizi tarayıcı (CapitalBio, Pekin, Çin) kullanılarak tarandı ve FL floresans yoğunluğu verileri, GenePix Pro 6.0 yazılımı (Molecular Devices, Sunnyvale, Calif) tarafından elde edildi ve analiz edildi.

ŞEKİL 1. COVID-19 hastalarında antikor yanıtlarının boylamsal dinamikleri. Çalışma tasarımının şeması. Çalışmaya toplam 31 SARS-CoV-2 enfekte birey ve 20 sağlıklı donör dahil edildi. Serum numunesi toplama, SARS-CoV-2 ile enfekte 31 kişi arasındaki 20 hasta için birden fazla zaman noktasında boylamsal olarak gerçekleştirilirken, diğer 11 hasta için tek bir zaman noktasında numune alma işlemi gerçekleştirildi. Çeşitli analizlerde kullanılan katılımcı sayısı ve serum örnekleri listelenir. B ve C, 31 COVID{12}} hastasından alınan toplam 101 serum örneği, farklı zaman noktalarında SARS-CoV-2 N proteini (B) ve S proteini (C) bağlayıcı IgG antikorları açısından ELISA ile test edildi semptom başlangıcından sonra (gün 1-30, n 5 37; gün 31-61, n 5 18; gün 100-150, n 5 21; gün {{21 }}, n5 25). Kontrol grubu olarak 20 sağlıklı donörden alınan serum örnekleri dahil edildi. D, NT50'nin zaman içindeki SARS-CoV-2 psödovirüslerine karşı doğrusal olmayan regresyonla hesaplandı. E, COVID{27}} hastalarında hastalığın başlangıcından sonra belirtilen zaman noktalarında serum nötrleştirme aktivitesinin dağılımı sunulmaktadır. NT50 titresi 20'nin altında olan numuneler nötrleştirici olmayan olarak tanımlandı
Peptit mikrodizi veri analizi
IgG ve IgM verileri sırasıyla analiz edildi. Her noktanın sinyal yoğunluğu, ön plan eksi arka plan olarak tanımlandı ve her bir peptit için üçlü noktaların ortalaması alındı. COVİD-19 numunelerinin pozitif peptid tepkisine ilişkin kesme değeri, sağlıklı donör kontrolünün sinyal yoğunluğunun iki katı olarak ayarlandı. Tüm 3 numune alma zaman noktasında (hastalığın başlangıcından sonraki 10-60, 100-150 ve 180-220. günler) test edilen numuneler arasında %80'in üzerinde pozitif oranlara sahip peptitler, baskın ve kalıcı peptitler ve aşağıdaki özelliklere sahip peptitler olarak tanımlandı: tüm 3-zaman noktalarında %60'ın üzerindeki pozitif yanıt sıklığı, alt baskın ve kalıcı olarak kabul edildi. 3 örnekleme zaman noktası grubundaki her bir peptidin ortalama sinyal yoğunluğu hesaplandı; yüksek sinyal yoğunluğu (test edilen tüm numunelerin ortalama 1 SD sinyal yoğunluğunun üzerinde) gösteren peptitler de seçildi. Veri işleme ve analiz, R v3.6.3 yazılımı (https://www.r-project.org/) tarafından gerçekleştirildi ve farklı örnekleme zaman noktası grupları arasındaki önemli sinyal yoğunluğu değişiklikleri, Limma'ya göre değerlendirildi. P < 0,05 olan farklar istatistiksel olarak anlamlı kabul edildi.
Fare aşılama
6 ila 8 haftalık dişi BALB/c fareleri, Beijing Vitalstar Bioteknoloji'den (Pekin, Çin) satın alındı. Tüm fareler belirli patojen içermeyen tesislerde barındırıldı ve hayvan çalışması, Tianjin Tıp Üniversitesi (Tianjin, Çin) Kurumsal Hayvan Bakım ve Kullanım Komitesi tarafından onaylandı. Bağışıklama için, fare gruplarına (n 5 5), 50 mg şap (InvivoGen, San Diego, Calif) ile karıştırılmış her bir peptitten (sırasıyla peptitler 318, 356, 510 ve 530) doz başına 25 mg intramüsküler olarak enjekte edildi. ve 10 mg CpG adjuvanları ve 2-hafta aralıklarla adjuvanların varlığında doz başına 50 mg peptit ile iki kez takviye edildi. Yalnızca adjuvanlarla aşılama, negatif kontrol olarak görev yaptı. Sera, ikinci ve üçüncü aşılamadan sonraki 10. veya 14. günde aşılanmış farelerden toplandı.
İstatistiksel ve yapısal analizler
Tüm grafikler GraphPad Prism tarafından çizildi. Şekil 1, 2 ve 4'teki gruplar arasındaki istatistiksel karşılaştırmalar, Tukey çoklu karşılaştırmalı 1-way ANOVA ile gerçekleştirildi. www.jacionline.org adresinde bulunan Çevrimiçi Depo'da Şekil 1 Şekil E9 ve Şekil E10'da gösterilen korelasyonlar Pearson korelasyon analizi ile belirlenmiştir. P < 0,05 olan farklar istatistiksel olarak anlamlı kabul edildi. SARS-CoV-2 spike proteininin yapıları (Protein Veri Bankası [PDB; http://www.wwpdb.org/] ID: 6VXX ve PDB ID: 6ZGI) ve SARS-CoV{{'nin dimerizasyon alanı 13}} nükleokapsid proteini (PDB ID: 6YUN), spike proteini ve nükleokapsid proteininin dimerizasyon alanı üzerinde yer alan tanımlanmış epitopların yapısal ayrıntılarını incelemek için kullanıldı. Çeşitli insan koronavirüsleri arasında dizi hizalaması ve homoloji analizi, MEGA v10.1.6 yazılımındaki Clustal W algoritması ile gerçekleştirildi.
SONUÇLAR
SARS-CoV-2 enfeksiyonu, sürekli antijene özgü bağlanma ve nötrleştirici antikorları tetikler
SARS-CoV-2 enfeksiyonundan sonra antikor yanıtlarını uzunlamasına değerlendirmek için, PCR ile SARS-CoV-2 enfeksiyonu olduğu doğrulanan 31 kişiden 101 serum örneği toplandı (Şekil 1, A). Çalışma katılımcıları, 1'i asemptomatik, 2'si hafif hastalıklı ve 2'si şiddetli semptomlu olmak üzere orta dereceli COVID-19 hastası 26 hastayı içeriyordu (bkz. www.jacionline.org adresindeki Çevrimiçi Depodaki Tablo E1). Bu çalışmaya katılan hastalar, 17 ile 66 yaş arasında (ortalama yaş, 45) değişmekte olup, erkek (%51,6) ve kadın (%48,4) hastaların yaklaşık olarak eşit dağılımına sahiptir. Çalışmaya katılanlar arasında en sık görülen semptomlar ateş (%83,9), öksürük (%67,7), miyalji (%22,6) ve üşüme (%22,6) olup, ortalama hastalık süresi 15 gündür. 20 COVID-19 hastasından hastaneye kaldırılma ve iyileşme sonrası taburculuk sırasında semptomların başlangıcından 219 gün sonrasına kadar birden fazla zaman noktasında toplam 90 serum örneği toplandı (Şekil 1, A ve Çevrimiçi Depodaki Tablo E2'ye bakın). Diğer 11 katılımcıdan numune alma işlemi geç iyileşme döneminde (semptomların başlamasından sonraki 122 ila 214. günler) tek bir zaman noktasında gerçekleştirildi. Ayrıca yaş ve cinsiyet dağılımı eşleşen 20 sağlıklı donörden alınan örnekler kontrol grubu olarak dahil edildi (Tablo E1). Serum numunelerindeki antijene spesifik IgG antikorlarının miktarı, SARS-CoV-2 N proteini veya S proteini ile önceden kaplanmış ELISA ile belirlendi. Sağlıklı donörlerle karşılaştırıldığında, COVID{46}} hastalarında semptomların başlamasından sonraki 30 gün içinde hem anti-N hem de anti-S IgG antikorları geliştirildi; geometrik ortalama son nokta titresi 4,10 (log10 anti-N IgG) ve 4.20 (log10 anti-S IgG) (Şekil 1, B ve C; ve www.jacionline.org adresindeki Çevrimiçi Depodaki Tablo E3'e bakın; Şekil E1, A ve B; ve Şekil E2), serokonversiyonun daha önceki gözlemlerle uyumlu olarak SARS-CoV-2 enfeksiyonundan 1 ila 2 hafta sonra ortaya çıkar.5,38 Daha sonra antijen bağlayıcı antikor titreleri zamanla değişen derecelerde azaldı. COVID{68}} hastalarında anti-N IgG antikor düzeylerinin hızla ve çarpıcı biçimde azaldığı gözlendi; sağlıklı donörlerle karşılaştırıldığında hastalığın başlangıcından sonraki 180 ila 220 güne kadar daha yüksek anti-S IgG titreleri seviyeleri korundu (Şekil 1, B) , ve C). Korelasyon analizi, log10 anti-N IgG titreleri ve anti-S IgG titreleri arasında anlamlı bir korelasyon olduğunu ortaya çıkardı (r 5 0.50 ve P < .001; Şekil 1, F). Bağlanan antikorların miktarının belirlenmesine ek olarak, COVID{80}}'li bireylerdeki fonksiyonel nötrleştirici antikorların dinamikleri, psödotipli SARS-CoV-2 kullanılarak daha da belirlendi. Semptomun başlangıcından sonraki 4 ila 30 gün arasında toplanan hasta serum örneklerinin %95'inden fazlası (35/37), SARS-CoV-2'ye karşı güçlü nötralizasyon aktivitelerine sahipti ve örneklerin büyük bir kısmı orta düzeyde (NT50 80-320 sergiledi. ) güçlü (NT50 > 320) nötrleştirme aktivitesine (Şekil 1, D ve E). Dikkat çekici bir şekilde, güçlü nötrleştirici antikorlar ortaya çıkmadan önce, viral enfeksiyondan sonraki erken bir dönemde (semptom başlangıcından sonraki 4. günde ve 11. günde) nötrleştirme titreleri olmayan veya düşük nötrleştirme titreleri olan (NT50 minimum serum seyreltmesinde NT50) 2 numune toplandı (Şekil 1). 1, D ve Şekil E1, C). Zaman içinde COVID hastalarında SARS-CoV nötralize edici antikor düzeylerinin azalmasına rağmen, semptom başlangıcından sonraki 180 ila 220 gün içinde elde edilen hasta serum örneklerinin çoğu (24/25), SARS-CoV'ye karşı nötralizasyon pozitifliğini sürdürdü. CoV-2, geometrik ortalama NT50 titrelerinde 2.8- kat azalmayla (Şekil 1, D ve E; Tablo E3; Şekil E3). Beklendiği gibi anti-N IgG antikorlarıyla karşılaştırıldığında SARS-CoV-2 S bağlayıcı IgG titreleri ile nötrleştirici antikor titreleri arasında daha güçlü bir korelasyon belirlendi (r 5 0.61 ve P < .001; Şekil 1) , G ve H), SARS-CoV-2 S proteininin nötrleştirici antikorların ana hedefi olduğu yönündeki bulgularla tutarlıdır. SARS-CoV-2'nin S proteini, son derece öldürücü SARS-CoV ile yüksek dizi benzerliği paylaşır (%76 dizi özdeşliği) ve MERS-CoV'ye düşük dizi homolojisi (%34 dizi özdeşliği) gösterir. Coronavirüsler arasında serolojik çapraz reaktivite rapor edilmiştir;8,10,28,29 ancak SARS-CoV-2'ye karşı antikorların diğer koronavirüslere karşı çapraz reaktivitesinin boylamsal takip değerlendirmesine ilişkin veriler sınırlı kalmaktadır. SARS-CoV-2 ile enfekte olmuş bireylerin boylamsal serumlarında çapraz bağlanan ve çapraz nötrleştirici antikorlar belirledik. Sonuçlar, hasta serum örneklerinin %80'inden fazlasının semptomların başlangıcından sonraki 1 ay içinde SARS-CoV ve/veya MERS-CoV'nin S proteinlerine bağlandığını ve örneklerin %27'sinin çift çapraz reaktivite sergilediğini gösterdi (Şekil 1, I). SARS-CoV S proteinine karşı reaktivite, erken dönemde (hastalığın başlangıcından 1-30 gün sonra) test edilen numuneler arasında MERS-CoV'den (%35) daha büyük bir orana (%73) sahipti (Şekil 1, I). Çift çapraz bağlanma ve SARS-CoV çapraz bağlanma antikorları, hastalığın başlangıcından 180 ila 220 gün sonra yalnızca %8 çift çapraz bağlanma ve %20 SARS-CoV tekli çapraz bağlanma numuneleriyle zaman içinde kademeli bir düşüş sergiledi (Şekil 1). , I; www.jacionline.org adresinde bulunan Çevrimiçi Depo'da, bkz. Şekil E4, A; Şekil E5, A; ve Şekil E6, bu makalenin www.jacionline.org adresindeki Çevrimiçi Deposu'nda). İlginç bir şekilde MERS-CoV S proteinine reaktif antikorların pozitifliği zaman içinde nispeten sabit kaldı (Şekil 1, I). Yüksek çapraz bağlanma kapasitesinden farklı olarak, yalnızca az sayıda hasta serum numunesi SARS-CoV ve/veya MERS-CoV psödovirüslerini çapraz nötralize etmiştir (Şekil 1, I; Şekil E4, B; Şekil E5, B; ve Şekil E7'ye bakınız). Çevrimiçi Depo). Semptomun başlangıcından 1 ila 30 gün sonra toplanan örneklerin yaklaşık %27'si çapraz nötrleştirici aktivite gösterdi ve bu sayı 180 ila 220 günde %20'ye düştü; SARS-CoV çapraz nötrleştirici aktivitede daha dramatik değişiklikler oldu (Şekil 1, I). ). Örneklerin daha yüksek bir oranı, hastalığın başlangıcından sonraki 30 gün içinde SARSCoV'u MERS-CoV'ye göre çapraz nötralize etti. SARS-CoV ve MERS-CoV çapraz nötralizasyonunu gösteren numunelerin benzer oranlarına rağmen, çapraz nötralizasyon için pozitif olan serum numuneleri arasında MERS-CoV için NT50 değerlerinin SARSCoV'unkinden çok daha düşük olduğunu belirtmekte fayda var (Şekil E4, B; Şekil E5, B; Şekil E7).

cistanche bitkisi bağışıklık sistemini güçlendiriyor
SARS-CoV-2 enfeksiyonu sitokin üretiminin aktivasyonuyla sonuçlanır
SARS-CoV-2 enfeksiyonu sonrasındaki immünolojik değişiklikleri kapsamlı bir şekilde karakterize etmek için, COVID-19 hastalarının serumlarındaki sitokin seviyelerindeki dinamiklerdeki değişiklikleri daha ayrıntılı olarak değerlendirdik. Semptomların başlangıcından sonraki ilk 2 ay içinde toplanan 55 uzunlamasına serum örneği, protein bazlı mikrodizi ile sitokin üretiminin tespiti için kullanıldı. Hastalığın ilk ayında IL-1a (proinflamatuvar), IL-6 (proin-inflamatuar) ve IL-10 (anti-inflamatuar) dahil olmak üzere birden fazla sitokinin serum seviyelerinde artış gözlendi ), şiddetli COVID-19 vakalarında39,40 sitokin salınım sendromuyla bağlantılı olanların yanı sıra IFN-g (TH1 tipi) ve IL-4 (TH2 tipi) (Şekil 2, A, ve Şekil E8, www.jacionline.org adresindeki Çevrimiçi Depo'da mevcuttur). Spesifik olarak, hastalarda semptomların başlamasından sonraki 15 gün içinde IL-6, IL-10 ve IFN-g'nin serum seviyeleri arttı ve daha sonraki aşamalarda azaldı; oysa IL-1 salınımı a ve IL-4'nin hastalığın başlangıcından itibaren 16 ila 30 gün boyunca dikkate değer ölçüde arttığı ve sonrasında hızla normale düştüğü gösterilmiştir (Şekil 2, A). Korelasyon analizi, SARS-CoV-2 enfeksiyonundan sonra antijene spesifik antikor tepkileri ile sitokin üretimi arasında zayıf bir ilişki olduğunu veya hiç doğrusal ilişki olmadığını gösterdi; ancak IL-10 ve SARS-CoV{{ seviyeleri arasında istatistiksel bir anlamlılık gözlemlendi. 34}} N protein bağlayıcı antikor (r 5 0.321 ve P < .05), IL-1b üretimi ile S protein bağlayıcı antikor (r 5 20.335 ve P arasında)<.05), and between TNF-a and S protein binding antibody levels (r 5 20.335 and P <.05; see Fig E9 in the Online Repository). To allow direct visualization and comparison among patient samples across multiple cytokine responses over time, we constructed a heat map showing fold changes in cytokine release relative to the healthy donor control group (Fig 2, B). Consistent with our findings presented above, elevated serum cytokine levels after SARS-CoV-2 infection were predominantly observed during the acute phase and an early period of convalescence (within 30 days after disease onset) (Fig 2, A and B). Among cytokines tested, proinflammatory IL-6 exhibited the most robust response, with a 4.9-fold increase and a 2.9-fold increase on average for samples collected during 1 to 15 days and 16 to 30 after onset of symptoms, respectively (Fig 2, B). Of note, 1 serum sample (sample Pt-S22, collected on day 18 after disease onset) obtained from a COVID–19–infected individual with moderate disease, exhibited a marked increase in the production of multiple proinflammatory cytokines, including IL-1a, IL-1b, IL-6, and TNF-a (Fig 2, B). Additionally, hyperproduction of cytokines including IL- 1a, IL-4, IL-6, IL-10, IL-13, and IFN-g was also detected in 1 sample (sample Pt-S11, collected at day 15 after disease onset) collected from a severe case of COVID-19; presumably, these are associated with disease severity and outcome (Fig 2, B). These results indicate broad inflammatory activation and changes over time involving the concomitant release of proinflammatory and anti-inflammatory cytokines as well as TH1-type and TH2-type cytokines in COVID-19 patients.
Proteom çapında epitop haritalaması, COVID-19 hastalarında kalıcı humoral bağışıklık tepkilerine aracılık eden baskın epitopları tanımlar
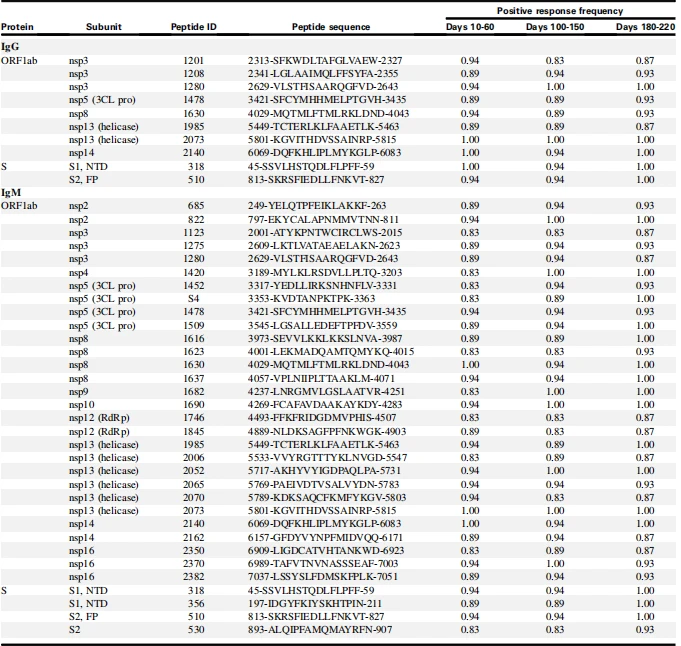
Zaman içinde SARS-CoV-2'ye karşı humoral bağışıklığın ayırt edici özelliklerini daha iyi karakterize etmek için, peptit bazlı mikrodiziler kullanarak proteom çapında bir epitop haritalaması uyguladık. SARS-CoV-2 proteomunu kapsayan bir peptit kütüphanesi oluşturuldu ve her bir peptitin 11 aa örtüşme ile 15 aa uzunluğunda olduğu slaytlar üzerine immobilize edildi. Asemptomatik (n 5 1) veya hafif (n 5 2) ila orta (n 5 15) veya şiddetli (n 5 1) belirtilere sahip 19 hastadan alınan toplam 51 uzunlamasına serum örneği ) SARS-CoV-2 enfeksiyonları test edildi (Tablo I). Nispeten dengeli örnekleme sayıları, aralıkları ve zaman noktaları elde etmek için örnekler, semptomların başlangıcından sonraki 16 ila 219 gün arasında değişen her bir COVID{18}} katılımcısından 2 veya 3 zaman noktasında sırayla toplandı. Asemptomatik enfeksiyonu olan tek kişi dışında hastaların çoğunluğu (18/19), viral enfeksiyondan sonra nötrleştirici antikorlar üretti (Tablo I). Farklı örnekleme zaman noktalarına göre örnekler 3 gruba ayrıldı: günler 10-60 (n 5 18), günler 100-150 (n 5 18) ve günler {{28) }} (n 5 15). COVID{31}} hastalarında virüs epitop profillerinin uzunlamasına değerlendirmesi, hem serum IgG hem de IgM antikorları için gerçekleştirildi; negatif kontrol olarak 20 sağlıklı donörden alınan havuzlanmış serumlar kullanıldı. SARS-CoV-2 proteom mikrodizisi kullanılarak, peptit bağlayıcı antikor yanıtlarının kinetiği belirlendi ve her bir peptit için (1) bağlanma sinyali yoğunluğu ve (2) pozitif reaktif numunelerin yüzdesi (pozitif oran) açısından analiz edildi. . Negatif kontrolün sinyal yoğunluğunun iki katı olarak ayarlanan pozitif peptid bağlanma yanıtının kesme değerine dayanarak, en az 1 hastayla reaktif olan IgG için toplam 460 pozitif peptid ve IgM için 479 pozitif peptid belirledik. serum örneği. SARS-CoV-2'nin pozitif peptit sayıları ve farklı açık okuma çerçeveleri (ORF'ler) boyunca yanıtların dağılımı, farklı örnekleme grupları arasında nispeten stabildi ve zaman içinde pozitif peptit sayılarında hafif bir azalma eğilimi vardı (Şekil 3, A). En fazla reaktivite, tüm genomun üçte ikisinden fazlasını kapsayan en büyük ORF olan replikaz poliprotein ORF1ab'da belirlendi (Şekil 3, A). İlginç bir şekilde, SARS-CoV-2 enfeksiyonundan hemen sonra (hastalığın başlangıcından 10-60 gün sonra; bkz. www.jacionline.org). IgM için pozitif bağlanan peptitlerin sayısının, IL-6 ve IL-10'nin serum düzeyleriyle ilişkili olduğu gösterilmiştir; benzer şekilde toplam reaktif peptitlerin ve IgM için ORF1ab bağlayıcı peptitlerin ortalama sinyal yoğunluğu, serum örneklerinde IL-6 ve IFN-g üretimi ile pozitif ilişkiler sergiledi. Bu veriler, SARS-CoV-2 enfeksiyonundan sonra sitokin seviyelerindeki değişikliklerin, antijene özgü humoral yanıtlar tarafından tanınan epitopların büyüklüğünü ve genişliğini etkileyebileceğini göstermektedir. Pozitif epitopları tanımlamaya dayanarak, 3 örnekleme grubunun her biri arasındaki (baskın ve kalıcı epitoplar olarak adlandırılır) COVID{63}} örneklerinin %80'inden fazlasında sürekli olarak reaktif kalan en yaygın epitopları seçtik. Sonuçlar, uzun vadeli humoral bağışıklık tepkilerine aracılık edebilen bu oldukça baskın epitopların SARS-CoV-2 ORF1ab poliproteini ve S proteininde bulunduğunu ve IgM antikorları (n 5 33) tarafından tanınan epitoplardan daha fazla epitopun bulunduğunu ortaya çıkardı. IgG antikorları (n 5 10) (Şekil 3, B ve Tablo II; www.jacionline.org adresindeki Çevrimiçi Depodaki Şekil E11 ve Şekil E12'ye bakın). ORF1ab poliproteini, uzun vadeli yanıtlara aracılık eden maksimum sayıda baskın epitopa sahipti ve epitoplar, yapısal olmayan proteinlerin (nbsp) 2-5, nbsp 8-10, nbsp 12-14, bölgeleri üzerinde geniş bir şekilde dağılmıştı, ve nbsp 16 (Tablo II). Özellikle, serum örnekleme zaman noktalarından bağımsız olarak, COVID{84}} hastalarının %100'ündeki IgG ve IgM antikorları tarafından tanınabilen bir immünodominant epitop olan 2073'ü (ORF1ab, aa 5801-5815) belirledik (Şekil 3, B ve Tablo II; bkz. Çevrimiçi Depodaki Şekil E13 ve Şekil E14). Bu oldukça reaktif peptit, SARS-CoV-2 replikasyonu sırasında çift sarmallı RNA şablonlarının çözülmesi için gerekli olan ORF1ab poliproteininin helikaz (nsp 13) bölgesinde bulunur.41 ORF1ab'ın seçilmiş peptitleri arasında 2 immünodominant peptit vardır. IgG antikorları tarafından tanınan en yüksek ortalama sinyal yoğunluğuna sahip olan 1985 sayısı (ORF1ab, aa 5449-5463) ve 2073 sayısı (ORF1ab, aa 5801-5815), her ikisi de nsp 13'te bulunur. IgM yanıtları için peptid 685 (ORF1ab, aa 249-263) nsp 2'de ve peptid 1985 (ORF1ab, aa 5449-5463) nsp 13'te en güçlü bağlanma yoğunluklarını sundu (Şekil 3, B). Farklı peptitler için temel sinyallerdeki varyasyonu (sağlıklı donörlerden alınan havuzlanmış serumlar) göz önüne alarak (Şekil 3, B), ayrıca sağlıklı kontrol grubuna göre her bir anahtar peptit ile ilgili sinyal yoğunluklarının kat değişimlerini de hesapladık. Sonuçlar, nsp 13 bölgesinde bulunan peptit 2073'ün (IgG bağlanması) ve peptit 1985'in (IgM bağlanması), 180 ila 220 güne kadar toplanan hasta serumları arasında üst peptit bağlanma yoğunluklarını (kat değişimi) koruduğunu gösterdi (Şekil E13 ve Şekil E14).

ŞEKİL 2. COVID-19 hastalarında sitokin üretiminin kinetiği. A, Akut faz ve iyileşmenin erken evresi sırasında 16 COVID-19 hastasından toplanan 55 serum örneğindeki sitokin üretim seviyeleri, protein mikrodizi bazlı ELISA ile tespit edildi (gün 1-15, n) 5 11; gün 16-30, n 5 26; gün 31-61, n 5 18; sağlıklı bağışçılar, n 5 20). Her nokta ayrı bir serum örneğini temsil eder; noktalı çizgiler algılama sınırını belirtir. İstatistiksel anlamlılık, Tukey çoklu karşılaştırmalarıyla 1-way ANOVA ile belirlendi. *P < .05, **P < .01 ve ****P < .0001. B, Sağlıklı donörlerden alınan 20 numunenin ortalama değerlerine kıyasla (A)'da gösterilen COVID{18}} hastalarındaki her sitokin üretim seviyesindeki kat değişimi. Her sütun, semptomların başlangıcından sonra belirtilen zaman noktalarından toplanan farklı bir serum örneğini gösterir; her satır test edilen 1 ayrı sitokini temsil eder.
TABLO I. Epitop haritalamasında COVID-19 hastalarının ve örnek kohortların özellikleri


ŞEKİL 3. SARS-CoV-2 ile enfekte olmuş bireylerde uzun vadeli antikor yanıtlarına katkıda bulunan baskın epitopların IgM ve IgG tarafından tanınması. SARS-CoV-2 proteomunu kapsayan bir peptit mikrodizisi kullanılarak, COVID-19'li 19 bireyde epitopların serum tanınmasının uzunlamasına analizi. Hasta numunelerindeki (n 5 51) peptid bağlanmasının pozitif tepkisi için kesme değeri, 20 sağlıklı donörden alınan havuzlanmış serumların sinyal yoğunluğunun iki katı olarak ayarlandı. A, 10-60 günde (n 5 18), 100-150 günde (n 5 18) toplanan 1 veya daha fazla örnekte saptanabilen pozitif bağlayıcı peptidlerin peptid sayıları ve dağılımı, ve hastalığın başlangıcından 180- 220 gün (n 5 15) sonra. Sayılar, her bir ORF'den tanımlanan toplam IgG ve IgM epitoplarını gösterir. B, 3 örnekleme zaman noktasının tamamında numunelerin %80'inden fazlasında sürdürülebilir şekilde reaktif olan baskın ve kalıcı IgG ve IgM epitoplarının (x ekseni) sinyal yoğunlukları. Her nokta, sağlıklı donörlerden (üstte) alınan toplanmış serumları veya semptom başlangıcından sonra belirtilen zaman noktalarından toplanan ayrı bir hasta serum örneğini gösterir. E, Zarf proteini.
TABLE II. Epitopes with >Her 3 örnekleme zaman noktasında %80 pozitif oran
SARS-CoV-2 S proteininin baskın ve kalıcı epitopları NTD ve S2 alt birimlerinde bulunur
SARSCoV-2 S proteininden toplam 4 baskın ve kalıcı epitop tanımlandı: peptid 318 (S, aa 45-59) ve peptid 356 (S, aa 197-211) NTD bölgesi içerisinde; S2' bölünme bölgesini ve S2 alt biriminin FP kısımlarını kapsayan peptid 510 (S, aa 893-907) ve bağlantı bölgesinde yer alan peptid 530 (S, aa 893-907) FP ile S2 alt ünitesinin ilk yedili tekrar bölgesi arasında (Şekil 3, B ve Tablo II). Seçtiğimiz S proteininin bu anahtar peptitleri arasında, S proteininin NTD'sinde bulunan peptit 318, en sağlam bağlanma yoğunluğuna sahipti (kontrol ile ilgili kat değişimi; Şekil E13 ve Şekil E14). Yapısal analizler, bu epitopların monomerik S proteininin yüzeyinde tamamen açığa çıktığını ortaya çıkardı; ancak peptidler 318, 356 ve 530'a ait bazı epitop kalıntıları trimerik S proteininin yüzeyi altında gizlenmiştir (Şekil 4, A ve B), bu durum hem S monomer hem de trimer yapılarının belirli koşullar altında konakçı bağışıklık sistemi tarafından etkili bir şekilde tanındığını göstermektedir. durumlar. Spesifik olmak gerekirse, peptid 318'in 2 döngü segmenti (aa 45-46 ve aa 56-59) trimerik S proteini üzerinde açığa çıkarılır ve merkezi b-ipliği içeriye gömülüdür; ve bir çekirdek b-ipliği (aa 203-209) ve bir halka segmenti (aa 210-211) dahil olmak üzere peptid 356'nın çoğu kalıntısına yüzeyden erişilebilir. Peptit 510, bir S2' bölünme bölgesini ve FP'nin merkezi bir sarmalını içerir; bunların her ikisi de tamamen S proteininin yüzeyinde sunulur; Peptit 530'un kalıntıları çoğunlukla kriptiktir ve döngünün yalnızca küçük bir kısmı (aa 893-895) trimerik S proteini üzerinde açığa çıkar (Şekil 4, C). Yaygın olarak görülen 7 insan koronavirüsü arasındaki sekans homoloji analizi, S2 alt ünitesinde bulunan 2 epitopun (peptitler 510 ve 530) diğer koronavirüslerle yüksek sekans özdeşliğini paylaştığını ortaya çıkardı; bu, insan koronavirüsleri arasında bu epitopları hedef alan serolojik çapraz reaktiviteyi akla getiriyor (Şekil 4, D). Peptid 318'in dizisi, SARSCoV ile yüksek benzerlik sergilerken, koronavirusler arasında peptid 356 için düşük düzeyde dizi homolojisi gösterildi; bu, bu bölgeyi hedef alan SARS-CoV-2'ye özgü antikor tepkilerini akla getiriyor (Şekil 4, D). Dünya çapında yeni ortaya çıkan ve dolaşımda olan SARS-CoV-2 varyantlarını göz önünde bulundurarak, erken SARS-CoV-2 suşu (Wuhan-Hu{{52}) arasında S proteininin anahtar epitoplarına ilişkin dizi hizalaması gerçekleştirdik. }) ve endişe verici 5 varyantın (Alfa, Beta, Gamma, Delta ve Omicron) yanı sıra 2 ilgi çekici varyantın (Lambda ve Mu), Dünya Sağlık Örgütü'nün varyant virüs sınıflandırmasına göre (30 Kasım 2021'de güncellenmiştir) ). Sonuçlar, yeni Omicron varyantında tanımlanan tek bir N211I mutasyonu dışında (Şekil 4, E), bu baskın ve kalıcı epitopların dizilerinin analiz edilen varyantlar arasında neredeyse aynı olduğunu gösterdi. Bu veriler, erken SARS-CoV-2 suşları tarafından üretilen antikorların, dolaşımdaki mevcut varyantları tutarlı bir şekilde tanıyabildiğini ve bu baskın epitopların, SARS-CoV-2 enfeksiyonunda sürdürülebilir uzun vadeli antikor yanıtlarına aracılık etme kapasitesine sahip olabileceğini göstermektedir. çeşitleri. S proteini üzerinde tanımlanan epitopların immünolojik özelliklerini daha fazla belirlemek ve bu S-protein epitoplarının peptid aşı adayları olarak potansiyel değerini daha fazla araştırmak için, seçilen peptidleri kullanarak bir fare immünizasyon çalışması gerçekleştirdik. BALB/c fareleri, şap ve CpG adjuvanlarının varlığında her bir peptitle 3 kez aşılandı (Şekil 4, F). Seçilen 4 peptit arasından, peptit 356 ile aşılama, ikinci ve üçüncü dozlardan sonra antijene spesifik antikorları ortaya çıkardı (Şekil 4, G). Serum nötralizasyon tahlilinin sonuçları, doğrusal peptitlerle aşılamanın, SARS-CoV-2'ye karşı önemli düzeyde nötralize edici antikorlar üretmediğini ortaya çıkardı (Şekil 4, H), bu, bu doğrusal peptitlerin, güçlü nötralize edici antikor tepkilerini tetiklemede zayıf performans gösterdiğini öne sürüyor.
SARS-CoV-2'nin N proteini, viral enfeksiyondan sonra kalıcı antikor yanıtlarına aracılık eden çoğu reaktif epitoptan yoksundur
Bir dizi çalışma SARS-CoV-2 N proteininin güçlü antijenitesini açıklığa kavuşturmuştur.4,11,12 Ancak, mevcut seçim kriterlerine dayanarak N proteininde bulunan baskın ve kalıcı epitopları belirlemede başarısız olduk. (3 örnekleme zaman noktasının tamamında %80'in üzerinde pozitif oran). COVID-19'li bireylerde N proteininin epitop profillerinin uzunlamasına değerlendirilmesi için, sürekli olarak pozitif reaktiviteyi koruyan subdominant epitopların seçimi için peptit mikrodizisinden elde edilen verilere dayanan ikinci bir epitop taraması turu gerçekleştirdik. 3 örnekleme zaman noktasının her biri için (subdominant ve kalıcı epitoplar olarak adlandırılır) COVID-19 örneklerinin %60'ından fazlasında. SARS-CoV-2 N proteininin toplam 4 alt baskın ve kalıcı epitopu tanımlandı; bunların arasında peptit 2455 (N, aa 213-227), COVID{{16'da hem IgG hem de IgM antikorlarına reaktivite sergiledi. }} nispeten daha yüksek sinyal yoğunluğu seviyelerine sahip hastalar (Şekil 5, A ve B ve www.jacionline.org adresindeki Çevrimiçi Depodaki Tablo E4'e bakınız). Üst üste binen 2 peptit, peptit 2455 (N, aa 213-227) ve peptit 2456 (N, aa 217-231), N-terminal RNA bağlanma alanı arasındaki Ser/Arg açısından zengin bağlayıcı bölgede bulunur. ve N proteininin C-terminal dimerizasyon alanı. Peptit 2482 (N, aa 321-335) ve peptit 2491 (N, aa 357-371), tamamen veya kısmen N proteininin dimerizasyon alanı içinde bulunur (Tablo E4). N proteininin sağlam yapısına ilişkin 3-D yapılarının bulunmaması nedeniyle, C-terminal dimerizasyon alanının dimerik yapısı üzerinde yalnızca tanımlanmış 2 epitopun yapısal analizini gerçekleştirdik. Peptit 2482'nin kalıntıları, dimerizasyon arayüzlerinde antiparalel bir şekilde düzenlenmiş 2 b iplikçiklerini oluştururken, peptit 2491'in aa 357-364'si, dimerin zıt uçlarında yer alan sarmal bazlı yapılar oluşturur (Şekil 5, C). . Erken SARS-CoV-2 (Wuhan-Hu-1 suşu) ile ortaya çıkan 7 varyant arasındaki sekans hizalaması ayrıca, N proteinindeki bu subdominant ve kalıcı epitopların sekanslarının mevcut dolaşımdaki varyantlar arasında neredeyse aynı olduğunu ortaya çıkardı; Delta varyantında meydana gelen peptit 2455'in tek G215C ikamesi ve Lambda varyantında tanımlanan peptit 2455'in tek bir G214C mutasyonu, bu peptitleri hedef alan antikorların, ortaya çıkan SARS-CoV-2 varyantlarının antijenini potansiyel olarak tanıdığını düşündürmektedir (Şekil 5, D). ).

ŞEKİL 4. Dayanıklı humoral bağışıklık tepkilerine aracılık etme açısından SARS-CoV-2 spike proteininin baskın epitopları. A ve B, Monomerik (A) ve trimerik (B) S proteininin (PDB ID: 6VXX) 3-D yapıları üzerindeki baskın ve kalıcı epitopların konumları. Epitoplar yeşil (peptit 356, aa 197-211), kırmızı (peptit 318, aa 45-59), mavi (peptit 510, aa 813-827) ve mor (peptit 530, aa) renkle vurgulanır 893-907), sırasıyla. Kapalı konformasyondaki üç S monomeri sırasıyla gri, pembe ve camgöbeği renkte gösterilmiştir. C, S trimerinin kapalı durumundaki SARS-CoV-2 S proteinindeki baskın epitopların ayrıntılı yapı analizi (PDB ID: 6VXX). D, Yaygın insan koronavirüsleri arasında tanımlanan epitopların dizi hizalaması. SARS-CoV-2 ve diğer insan koronavirüsleri arasında korunan epitop kalıntıları gri renkle gölgelenmiştir. E, Erken SARS-CoV-2 (Wuhan-Hu-1 suşu) ve ortaya çıkan 7 varyantın epitop koruma analizi. Siyah noktalar, Wuhan-Hu-1 suşu ile belirtilenler arasındaki özdeş kalıntıları temsil eder.

ŞEKİL 5. SARS-CoV-2 nükleokapsid proteininde bulunan alt baskın epitoplar, kalıcı antikor yanıtlarına aracılık etme kapasitesine sahiptir. Hastalığın başlangıcından sonra birden fazla zaman noktasında toplanan hasta serum numuneleri arasında alt baskın peptitlerin (%60'tan fazla numunede kalıcı olarak reaktif) A, IgG ve IgM tanıma frekansları. B, Tanımlanan subdominant epitopların zaman içindeki sinyal yoğunluğu kinetiği. Her nokta, semptom başlangıcından sonra belirtilen zaman noktalarında COVID-19 hastalarından elde edilen farklı bir hasta serum örneğini temsil eder. Noktalı yatay çizgiler, her bir peptit için pozitif yanıtın kesme değerlerini gösterir. C, N proteininin C-terminal dimerizasyon alanındaki epitopların ayrıntılı yapı analizi (PDB ID: 6YUN). Epitoplar mavi (peptid 2482, aa 321-335) ve kahverengi (peptid 2491, aa 357-364) renkle etiketlenmiştir. 2 monomerik yapı sırasıyla gri ve camgöbeği renkte gösterilmiştir. D, Erken SARS-CoV-2 (Wuhan-Hu-1 suşu) ile ortaya çıkan 7 varyant arasında tanımlanan N-protein epitoplarının dizi hizalama analizi. Siyah noktalar, Wuhan-Hu-1 suşu ile belirtilen varyant arasındaki özdeş dizileri belirtir. Amino asit dizisindeki değişiklikler kırmızı renkle vurgulanmıştır.

ŞEKİL 6. SARS-CoV-2 ile enfekte kişiler tarafından tanınan, yüksek bağlanma yoğunluğuna ve zaman içinde azalan reaktif frekanslara sahip astar epitopları. A ve B, Yüksek bağlanma sinyali yoğunluğu sergileyen (test edilen tüm numunelerin sinyal yoğunluklarının ortalama 1 SD'sinin üzerinde) ancak zamanla pozitif oranın azaldığı belirlenen peptitlerin boyuna analizi ve dağılımı. Epitopların tanıma frekansı (A) ve sinyal yoğunluğu (B), semptom başlangıcından sonra 3 örnekleme zaman noktasıyla çizildi. (B)'deki her nokta, semptom başlangıcından sonra belirtilen zaman noktalarında toplanan bireysel hasta serum örneğini temsil eder; noktalı yatay çizgiler, her bir peptit için pozitifliğin kesme değerlerini gösterir. İstatistiksel anlamlılık analizi, R v3.6.3 yazılımının Limma'sına dayanarak yapıldı. *P < .05 ve **P < .01. C, SARS-CoV-2 S protein yapısında (PDB ID: 6ZGI) 2 bitişik epitopun, peptit 510 (baskın ve kalıcı) ve peptit 511'in (yüksek sinyal yoğunluğu ve azalan pozitiflik) konum ve sekans karşılaştırmaları. . 2 epitop arasındaki örtüşen bölgeler yeşil renkle vurgulanmıştır; benzersiz diziler kırmızı ve mavi renkle etiketlenmiştir.
Boyuna serolojik analiz, yüksek sinyal yoğunluğuna sahip ancak zamanla reaktiviteyi azaltan epitopları tanımlar
Yukarıda bahsedilen sürekli humoral bağışıklık tepkilerinden sorumlu seçilmiş yüksek derecede reaktif epitoplara ek olarak, sağlam bağlanma yoğunlukları (test edilen tüm numunelerin sinyal yoğunluklarının ortalama 1 SD'sinin üzerinde) gösteren 9 pozitif peptidden oluşan bir paneli tanımladık ve karakterize ettik. humoral bağışıklık yanıtlarındaki genel azalma eğilimine uygun olarak, zaman içinde COVID-19 hastalarından alınan serum numuneleri arasında reaktivitede azalma eğilimi (pozitif oran %20'nin üzerinde değişir). Bu epitoplar 3 baskın antijen içinde konumlandırılmıştır: ORF1ab, S ve N proteinleri (Şekil 6, A; ve bkz. www.jacionline.org adresindeki Çevrimiçi Depodaki Tablo E5). Ek olarak, ORF1ab'dan (peptitler 784-IgG, 1617-IgM ve 1986-IgM) ve N (peptit 2457-IgG) proteinlerinden gelen 4 peptidin sinyal yoğunluklarında önemli azalmalar gözlendi Örnekleme zaman noktalarının erken periyodundaki örnekler (hastalık başlangıcından 10-60 gün sonra) ile örnekleme zaman noktalarının daha sonraki aşaması (semptom başlangıcından 100-150 gün veya 180-220 gün sonra) arasında (Şekil 6) , B). Özellikle, birbirleriyle büyük ölçüde örtüşmelerine rağmen, S protein peptidi 510'un (baskın ve kalıcı; Şekil 3, B) ve peptid 511'in (yüksek sinyal yoğunluğu ve zamanla azalan pozitif oran; Şekil 6, A) 2 peptidi farklı desenler sergilemiştir. Hasta serum numuneleri arasında zaman içinde reaktivite. Dizi ve konum analizi, peptid 510'un bir S2' bölünme bölgesini ve ek 813-SKRS-816 amino asitlerini içerdiğini, oysa peptid 511'in tamamen uzatılmış 828-LADA{{29) ile FP içinde olduğunu gösterdi. }} trimerik S proteininin yüzeyinde tamamen açığa çıkan kalıntılar (Şekil 6, C). Bu sonuçlar, SARS-CoV-2'ye karşı daha uzun süreli ve daha güçlü humoral bağışıklığa sonuçta katkıda bulunabilecek epitopların yeni özelliklerini ortaya çıkardı.
TARTIŞMA
SARS-CoV-2 enfeksiyonuna karşı uzun vadeli bağışıklık tepkilerinin sistematik karakterizasyonu, gelişmiş teşhislerin, etkili terapötik müdahalelerin ve aşıların geliştirilmesi açısından kritik öneme sahiptir. Mevcut çalışmada, 180 ila 220 günlük takip süresi boyunca KOVİD-19 hastalarının kapsamlı bir boylamsal analizini gerçekleştirdik; viral enfeksiyondan sonra kalıcı humoral bağışıklık tepkilerini ve aktif sitokin üretimini gösterdik.
Önemli ölçüde, SARS-CoV-2'nin proteomunu kapsayan peptit bazlı mikrodiziden yararlanarak, epitop tanıma kinetiğini daha da ortaya çıkardık ve uzun vadeli humoral bağışıklığa aracılık edebilen baskın epitoplardan oluşan bir panel belirledik. SARS-CoV-2 enfeksiyonundan sonra humoral bağışıklık tepkilerinin uzun ömürlülüğüne ilişkin burada bildirdiğimiz bulgular, daha önce yayınlanmış bazı verileri5,10,12,13,42 doğruluyor ancak uzun süreli serum örnekleri kullanarak derin serolojik profilleme ve epitop taraması gerçekleştirerek bunları genişletiyor proteom çapında mikrodizi yaklaşımı aracılığıyla COVID{11}} hastası bireylerden. Bu çalışmada, SARS-CoV-2 S proteini içinde, COVID-19 hastalarının %80'inden fazlasıyla kalıcı olarak reaksiyona girebilen 4 baskın epitop (peptitler 318, 356, 510 ve 530) belirledik numuneler semptomların başlangıcından 180 ila 220 gün sonrasına kadar test edildi. S2 bölünme bölgesini ve S2 alt biriminin FP'sini içeren Peptid 510 (S, aa 813-827), diğer grupların önceki çalışmalarında yaygın olarak tanımlanmıştır.26,28,32-34 Fonksiyonel analizler antikorları gösterdi bu bölgeyi hedeflemek, S proteininin yüzeyinde yüksek düzeyde maruz kalmasına rağmen SARS-CoV-22633'ye karşı sınırlı nötralizasyon potansiyeli sergileyebilir (Şekil 4, AC). FP ile S2 alt biriminin ilk yedili tekrar bölgesi arasında konumlanan peptid 530 (S, aa 893-907) durumunda, kalıntılar genellikle S proteininin trimerik yapısı içine gömülür; SARS-CoV-2'ye karşı güçlü nötralize edici antikorlar aracılığıyla erişilmesi zor (Şekil 4, AC). Ek olarak, SARS-CoV-2'nin uzun vadeli antikor tepkilerine aracılık edebilecek 2 S1-NTD'ye yönelik peptidler de seçilmiştir. Peptit dizisi ve konumu ile ilgili analizler, bu 2 peptidin (peptit 318 (S, aa 45-59) ve peptit 356 (S, aa 197-211)) kalıntılarının, rapor edilen tanınan epitoplara çok yakın olduğunu gösterdi. enfeksiyonu arttırıcı antikorlar tarafından23,25 ancak S1 alt biriminin NTD'sini hedef alan oldukça güçlü nötralize edici antikorların anahtar bölgeleri dışında,16,19,43 bu tanımlanan 2 peptite yönelik nötrleştirici olmayan antikorlar tarafından epitop tanıma olasılığını ortaya koymaktadır. Yukarıda belirtilen ayrıntılara ek olarak, seçilen peptitlerle fare immünizasyonu, bu reseptör olmayan bağlanma alanı doğrusal peptitlerinin güçlü nötralize edici antikor tepkilerini indüklemede düşük etkinliğine de işaret etti (Şekil 4, G). Toplu olarak bu veriler, SARS-CoV-2 enfeksiyonunda uzun vadeli humoral bağışıklık tepkilerine aracılık eden baskın doğrusal epitopların muhtemelen nötralizasyon potansiyeli olmayan veya sınırlı olan antikorları indüklediğini göstermektedir. SARS-CoV-2 antikorlarının, özellikle de S proteinine yönelik epitopların epitop yapısının daha kapsamlı anlaşılması, antikorların işlevsel diseksiyonuna yeni bir bakış açısı kazandırarak yenilikçi ve rasyonel aşı tasarımını daha da kolaylaştırır. Nötralize edici antikorlar, viral enfeksiyonları ortadan kaldırmak için koruma sağlarken, nötrleştirici olmayan antikorlar, virüsün temizlenmesi sırasında faydalı, nötr ve hatta zararlı bir rol oynayabilir. Nötrleştirici olmayan antikorlar, antikora bağımlı fagositoz ve antikora bağımlı sitotoksisite bağlamında bir dizi Fc aracılı efektör fonksiyonu aracılığıyla in vivo ek koruma sağlar. Buna karşılık, bazı çalışmalar, nötrleştirici olmayan antikorların koronavirüs enfeksiyonunda patojenik bir rol oynama olasılığını öne sürüyor. SARS-CoV ve MERS-CoV için birden fazla aşı adayı türünün kullanıldığı önceki çalışmalarda, virüs tehdidi sonrasında aşılanmış küçük hayvanlarda ve insan olmayan primatlarda immünopatolojinin arttığı gözlemlendi.24,44-50 Daha yakın zamanda, 2 grup üzerinde yapılan çalışmalar nötrleştirici olmayan SARS-CoV{80}} S proteininin NTD'sini hedef alan antikorlar, Fcg reseptöründen bağımsız mekanizmalar yoluyla in vitro viral enfeksiyonu artırma yeteneğine sahipti,23,25 ancak hayvan modellerinde pasif olarak uygulanan enfeksiyonu arttırıcı antikorların SARS'a karşı koruyucu olduğu gösterildi -CoV-2 in vivo enfeksiyonu. Antikorların koronavirüs enfeksiyonu sırasındaki tartışmalı rolleri göz önüne alındığında, antikorların in vivo viral enfeksiyonla mücadelede bu baskın ve kalıcı epitopları tanımadaki potansiyel rolünü doğrulamak için daha fazla araştırmaya ihtiyaç vardır. SARS-CoV-2 için rasyonel aşı tasarımının bir sonraki aşaması, son derece güçlü nötralize edici antikorlar ve koruyucu nötrleştirici olmayan antikorların ortaya çıkarılması ve bunun yanı sıra enfeksiyonu güçlendiren epitopların veya bağışıklık sistemini baskılayan epitopların sunumunun azaltılması yoluyla tasarlanabilir. Yararlı etkiler. Nötralizasyona ilişkin antikor işlevlerini tanımlamayı amaçlayan önceki çalışmaların bir kısmı yalnızca SARS-CoV-2'nin S proteinine odaklanmış olsa da, proteom çapında kapsamlı bir epitop haritalaması gerçekleştirdik ve ORF1ab poliproteini içinde, zaman içinde yüksek oranda hasta serum numunesi tarafından tutarlı bir şekilde tanındı. Çoklu yapısal olmayan proteinler üzerinde dağıtılan bu ORF1ab'ye yönelik peptitler, SARS-CoV-2 virüsünü hedef alan fonksiyonel antikorları ortaya çıkaramasa da, doğal enfeksiyonu aşılamadan ayırmaya yardımcı olacak bir teşhis aracı olarak uygulanabilirler. Dünya çapında aşı alıcılarının sayısının artmasıyla birlikte, S proteini ve N proteinine dayalı mevcut serolojik testler, SARS-CoV-2 enfeksiyonunun tespitine yönelik moleküler testlere yardımcı olma ve ayrıca viral enfeksiyondan sonra bağışıklık durumunun belirlenmesi. COVID{101}} ile enfekte kişiler arasında ORF1ab içindeki en yaygın ve kalıcı şekilde reaktif peptitlerden yararlanılarak, doğal enfeksiyonun serolojik tanısı, reseptör bağlanma alanı bazlı S proteinini içeren aşılama durumu dikkate alınmadan gerçekleştirilecektir. bazlı ve inaktif virüs bazlı aşı yaklaşımları. Hem SARSCoV-2 ile enfekte bireyleri hem de aşı alıcılarını içeren daha büyük kohortlarda tanımlanan ORF1ab peptidlerinin reaktivitesini, duyarlılığını ve özgüllüğünü değerlendirmek için gelecekteki çalışmalara ihtiyaç vardır. Ek olarak, tam uzunluktaki proteinle karşılaştırıldığında peptitlerin daha düşük duyarlılığının ve yaygın insan koronavirüsleri arasındaki olası çapraz reaktivitenin üstesinden gelmek için çoklu peptit kombinasyon stratejileri yoluyla tespit verimliliğinin daha fazla değerlendirilmesi gerekecektir. Çalışmamızın en büyük sınırlaması, küçük bir hasta kohortundan elde edilen nispeten az sayıda örnek ve katılımcıların çoğunluğunun ciddi olmayan COVID hastalıkları geçirmiş olmasıdır. Bunlar, hastalığın ciddiyetine göre değişebilen, pozitif yanıt sıklığı ve bağışıklık yanıtlarının büyüklüğü ile ilgili bazı çıkarımlarımızı sınırlayabilir. Bununla birlikte, bu çalışmada sunulan veriler, SARS-CoV{108}} enfeksiyonundan sonra zaman içinde bağışıklık tepkilerinin kinetiğine ve COVID{108}} olan bireylerde sürekli humoral bağışıklığa aracılık edebilen baskın epitopların özelliklerine ilişkin değerli bilgiler sağlar. Birlikte, bu bulgular viral bir enfeksiyonun neden olduğu doğal bağışıklığın uzun ömürlülüğüne dair daha derin bir anlayış sunuyor ve yenilikçi aşılama stratejileri ve gelişmiş teşhis yaklaşımları için geniş çıkarımlara sahip.
REFERANSLAR
1. Lu R, Zhao X, Li J, Niu P, Yang B, Wu H ve diğerleri. 2019 yeni koronavirüsünün genomik karakterizasyonu ve epidemiyolojisi: virüs kökenleri ve reseptör bağlanmasına ilişkin çıkarımlar. Lancet 2020;395:565-74.
2. Dünya Sağlık Örgütü (WHO). DSÖ koronavirüs (COVID-19) kontrol paneli, 2021. Şu adreste mevcuttur: https://COVID19.who.int/. Erişim tarihi: 30 Kasım 2021.
3. Wu Z, McGoogan JM. Çin'deki 2019 koronavirüs hastalığı (COVID-19) salgınının özellikleri ve bundan önemli dersler: Çin Hastalık Kontrol ve Önleme Merkezi'nden alınan 72314 vakanın raporunun özeti. JAMA 2020;323:1239-42.
4. Rydyznski Moderbacher C, Ramirez SI, Dan JM, Grifoni A, Hastie KM, Weiskopf D, ve diğerleri. Akut COVID-19'de SARS-CoV-2'ye karşı antijene özgü adaptif bağışıklık ve yaş ve hastalığın ciddiyeti ile ilişkiler. Hücre 2020;183:996-1012.e19.
5. Wu J, Liang B, Chen C, Wang H, Fang Y, Shen S, ve diğerleri. SARS-CoV-2 enfeksiyonu, semptomatik COVID-19 sonrasında iyileşen hastalarda sürekli humoral bağışıklık tepkilerine neden olur. Nat Commun 2021;12:1813.
6. Long QX, Liu BZ, Deng HJ, Wu GC, Deng K, Chen YK ve diğerleri. COVID-19 hastalarında SARS-CoV-2'ye karşı antikor yanıtları. Nat Med 2020;26:845-8.
7. Sterlin D, Mathian A, Miyara M, Mohr A, Anna F, Claer L, ve diğerleri. IgA, SARS-CoV-2'ye karşı erken nötrleştirici antikor tepkisine hakimdir. Sci Transl Med 2021;13: eabd2223.
8. Zhang J, Wu Q, Liu Z, Wang Q, Wu J, Hu Y, ve diğerleri. COVID-19- iyileşen bireylerde spike'a özgü dolaşımdaki T foliküler yardımcı hücre ve çapraz nötralize edici antikor yanıtları. Nat Microbiol 2021;6:51-8.
9. Wang P, Liu L, Nair MS, Yin MT, Luo Y, Wang Q, ve diğerleri. SARS-CoV-2 nötralize edici antikor yanıtları, ciddi hastalığı olan hastalarda daha güçlüdür. Ortaya Çıkan Mikroplar Bulaşıyor 2020;9:2091-3.
10. Vanshylla K, Di Cristanziano V, Kleipass F, Dewald F, Schommers P, Gieselmann L, ve diğerleri. İnsanlarda SARSCoV-2 enfeksiyonuna karşı nötrleştirici antikor tepkisinin kinetiği ve bağıntıları. Hücre Ana Bilgisayarı Mikrobu 2021;29:917-29.e4.
11. Xiang T, Liang B, Fang Y, Lu S, Li S, Wang H, ve diğerleri. Semptomların başlangıcından bir yıl sonra iyileşme dönemindeki COVID-19 hastalarında SARS-CoV-2'ye karşı nötralize edici antikor seviyelerinde azalma. Ön Immunol 2021;12:708523.
12. Wang Z, Muecksch F, Schaefer-Babajew D, Finkin S, Viant C, Gaebler C, ve diğerleri. Enfeksiyondan bir yıl sonra SARS-CoV-2'ye karşı doğal olarak geliştirilmiş nötralizasyon genişliği. Doğa 2021;595:426-31.
13. Dan JM, Mateus J, Kato Y, Hastie KM, Yu ED, Faliti CE, ve diğerleri. SARS-CoV-2'ye karşı immünolojik hafıza, enfeksiyondan sonra 8 aya kadar değerlendirildi. Bilim 2021;371:eabf4063.
14. Sokal A, Chappert P, Barba-Spaeth G, Roeser A, Fourati S, Azzaoui I, ve diğerleri. SARS-CoV-2 karşıtı bellek B hücresi yanıtının olgunlaşması ve kalıcılığı. Hücre 2021; 184:1201-13.e14. 15. Ju B, Zhang Q, Ge J, Wang R, Sun J, Ge X ve diğerleri. SARS-CoV-2 enfeksiyonunun ortaya çıkardığı insan nötrleştirici antikorlar. Doğa 2020;584:115-9.
16. Liu L, Wang P, Nair MS, Yu J, Rapp M, Wang Q, ve diğerleri. SARS-CoV-2 artışında birden fazla epitopa karşı güçlü nötrleştirici antikorlar. Doğa 2020;584:450-6.
17. Zost SJ, Gilchuk P, Case JB, Binshtein E, Chen RE, Nkolola JP, ve diğerleri. SARS-CoV-2'ye karşı potansiyel olarak nötrleştirici ve koruyucu insan antikorları. Doğa 2020; 584:443-9.
18. Xu C, Wang Y, Liu C, Zhang C, Han W, Hong X ve diğerleri. Kriyo-EM tarafından ortaya çıkarılan ACE2 reseptörü ile kompleks halindeki SARS-CoV-2 trimerik spike glikoproteininin konformasyonel dinamikleri. Sci Adv 2021;7:eabe5575.
19. McCallum M, De Marco A, Lempp FA, Tortorici MA, Pinto D, Walls AC, ve diğerleri. N-terminal alanı antijen haritalaması, SARSCoV-2 için bir güvenlik açığı bölgesini ortaya koyuyor. Hücre 2021;184:2332-47.e16.
20. Sauer MM, Tortorici MA, Park YJ, Walls AC, Homad L, Acton OJ, ve diğerleri. Geniş çaplı koronavirüs nötralizasyonu için yapısal temel. Nat Struct Mol Biol 2021;28:478-86.
21. Tortorici MA, Beltramello M, Lempp FA, Pinto D, Dang HV, Rosen LE, ve diğerleri. Ultra güçlü insan antikorları, birden fazla mekanizma yoluyla SARS-CoV-2 tehdidine karşı koruma sağlar. Bilim 2020;370:950-7.
22. Pinto D, Park YJ, Beltramello M, Walls AC, Tortorici MA, Bianchi S, ve diğerleri. SARS-CoV-2'nin bir insan monoklonal SARS-CoV antikoru tarafından çapraz nötrleştirilmesi. Doğa 2020;583:290-5.
23. Liu Y, Soh WT, Kishikawa JI, Hirose M, Nakayama EE, Li S, ve diğerleri. Antikorlar tarafından hedeflenen SARS-CoV-2 spike proteini üzerinde enfektiviteyi artıran bir bölge. Hücre 2021; 184:3452-66.e18.
24. Liu L, Wei Q, Lin Q, Fang J, Wang H, Kwok H, ve diğerleri. Anti-spike IgG, akut SARS-CoV enfeksiyonu sırasında makrofaj tepkilerini çarpıtarak ciddi akut akciğer hasarına neden olur. JCI Insight 2019;4:e123158.
25. Li D, Edwards RJ, Manne K, Martinez DR, Schafer A, Alam SM, et al. SARS-CoV-2 enfeksiyonunu güçlendiren ve nötralize eden antikorların in vitro ve in vivo işlevleri. Hücre 2021;184:4203-19.e32. 26. Poh CM, Carissimo G, Wang B, Amrun SN, Lee CY, Chee RS, ve diğerleri. SARS-CoV-2 spike proteinindeki iki doğrusal epitop, COVID-19 hastalarında nötralize edici antikorları ortaya çıkarır. Nat Commun 2020;11:2806.
27. Zhang BZ, Hu YF, Chen LL, Yau T, Tong YG, Hu JC, ve diğerleri. COVID-19 hastalarından alınan SARS-CoV-2 spike proteinindeki epitopların madenciliği. Hücre Res 2020;30:702-4.
28. Stoddard CI, Galloway J, Chu HY, Shipley MM, Sung K, Itell HL, ve diğerleri. Epitop profili, doğal enfeksiyondaki SARS-CoV-2 bağışıklık tepkisinin bağlayıcı imzalarını ve endemik insan CoV'leriyle çapraz reaktiviteyi ortaya koyuyor. Hücre Temsilcisi 2021;35: 109164.
29. Shrock E, Fujimura E, Kula T, Timms RT, Lee IH, Leng Y, ve diğerleri. COVID-19 hastalarının viral epitop profili, çapraz reaktiviteyi ve ciddiyet arasındaki ilişkiyi ortaya koyuyor. Bilim 2020;370:eabd4250.
30. Zamecnik CR, Rajan JV, Yamauchi KA, Mann SA, Loudermilk RP, Sowa GM, ve diğerleri. Çok yönlü bir teşhis hattı olan ReScan, insan serumunu SARS-CoV-2- 2 antijenleri açısından tarar. Hücre Temsilcisi Med 2020;1:100123.
31. Haynes WA, Kamath K, Bozekowski J, Baum-Jones E, Campbell M, Casanovas Massana A, ve diğerleri. COVID-19'li büyük denek kohortlarında SARS-CoV-2 antikorlarının yüksek çözünürlüklü epitop haritalaması ve karakterizasyonu. Commun Biol 2021;4:1317.
32. Li Y, Lai DY, Lei Q, Xu ZW, Wang F, Hou H, ve diğerleri. COVID-19 hastalarını izlemek için SARS-CoV-2 spike proteininden türetilmiş peptitlere verilen IgG yanıtlarının sistematik değerlendirmesi. Cell Mol Immunol 2021;18:621-31.
33. Li Y, Ma ML, Lei Q, Wang F, Hong W, Lai DY, ve diğerleri. 1.051 COVID-19 hastadan oluşturulan SARS-CoV-2 spike proteininin doğrusal epitop manzarası. Hücre Temsilcisi 2021;34:108915.
34. Wang H, Wu X, Zhang X, Hou X, Liang T, Wang D, ve diğerleri. Amino Asit Çözünürlüğünde COVID-19 Antikor Etkileşimlerini Haritalamak için SARS-CoV-2 Proteom Mikrodizisi. ACS Cent Sci 2020;6:2238-49.
35. Yi Z, Ling Y, Zhang X, Chen J, Hu K, Wang Y, ve diğerleri. COVID-19 iyileşme dönemindeki popülasyonda SARS-CoV-2'nin B hücresi doğrusal epitoplarının işlevsel haritalaması. Ortaya Çıkan Mikroplar Bulaşıyor 2020;9:1988-96.
36. Ulusal Sağlık Komisyonu ve Geleneksel Çin Tıbbı Ulusal Yönetimi. Yeni Coronavirüs Pnömonisi için Tanı ve Tedavi Protokolü (Deneme Sürümü 7). Chin Med J (İngilizce) 2020;133:1087-95; https://doi.org/10.1097/ CM9.00000000000000819.
37. Li Y, Li CQ, Guo SJ, Guo W, Jiang HW, Li HC, ve diğerleri. Boyuna serum otoantikor repertuar profili, akciğer adenokarsinomunda cerrahiyle ilişkili biyobelirteçleri tanımlar EBioMedicine 2020;53:102674.
38. Zhao J, Yuan Q, Wang H, Liu W, Liao X, Su Y, ve diğerleri. Yeni koronavirüs hastalığı olan hastalarda SARSCoV-2'ye karşı antikor yanıtları 2019. Clin Infect Dis 2020;71: 2027-34.
39. Lucas C, Wong P, Klein J, Castro TBR, Silva J, Sundaram M, ve diğerleri. Uzunlamasına analizler, ciddi COVID-19 vakalarında immünolojik hatalı ateşlemeyi ortaya koyuyor. Doğa 2020;584: 463-9.
40. Moore JB, Haziran CH. Şiddetli COVID'de sitokin salınım sendromu-19. Bilim 2020;368:473-4.
41. Chen J, Malone B, Llewellyn E, Grasso M, Shelton PMM, Olinares PDB, ve diğerleri. SARS-CoV-2 Replikasyon-Transkripsiyon Kompleksinde Helikaz-Polimeraz Bağlantısının Yapısal Temeli. Hücre 2020;182:1560-73.e13.
42. Wajnberg A, Amanat F, Firpo A, Altman DR, Bailey MJ, Mansour M, ve diğerleri. SARS-CoV-2 enfeksiyonuna karşı güçlü nötrleştirici antikorlar aylarca varlığını sürdürür. Bilim 2020; 370:1227-30.
43. Chi X, Yan R, Zhang J, Zhang G, Zhang Y, Hao M, ve diğerleri. Nötralize edici bir insan antikoru, SARS-CoV-2'nin spike proteininin N-terminal alanına bağlanır. Bilim 2020;369:650-5.
44. Tseng CT, Sbrana E, Iwata-Yoshikawa N, Newman PC, Garron T, Atmar RL, ve diğerleri. SARS koronavirüs aşılarıyla aşılama, SARS virüsüyle mücadelede pulmoner immünopatolojiye yol açar. PLoS One 2012;7:e35421.
45. Bolles M, Deming D, Long K, Agnihothram S, Whitmore A, Ferris M, ve diğerleri. Çift etkisizleştirilmiş şiddetli akut solunum sendromu koronavirüs aşısı, farelerde eksik koruma sağlar ve tehdit üzerine artan eozinofilik proinflamatuar akciğer tepkisine neden olur. J Virol 2011;85:12201-15.
46. Weingartl H, Czub M, Czub S, Neufeld J, Marszal P, Gren J, ve diğerleri. Şiddetli akut solunum sendromuna karşı Ankara merkezli modifiye aşı virüsü ile aşılama, gelinciklerde hepatitin artmasıyla ilişkilidir. J Virol 2004;78:12672-6.
47. Yasui F, Kai C, Kitabatake M, Inoue S, Yoneda M, Yokochi S, ve diğerleri. Şiddetli akut solunum sendromu (SARS) ile ilişkili koronavirüs (SARS-CoV) nükleokapsid proteini ile önceden aşılama, SARS-CoV ile enfekte olmuş farelerde ciddi zatürreye neden olur. J Immunol 2008;181:6337-48.
48. Deming D, Sheahan T, Heise M, Yount B, Davis N, Sims A, ve diğerleri. Rekombinant SARS-CoV taşıyan salgın ve zoonotik spike varyantlarıyla mücadele eden yaşlanmış farelerde aşı etkinliği. PLoS Med 2006;3:e525.
49. Wang Q, Zhang L, Kuwahara K, Li L, Liu Z, Li T, ve diğerleri. İnsanlardaki immünodominant SARS koronavirüs epitopları, insan olmayan primatlarda enfeksiyon üzerinde hem artırıcı hem de nötrleştirici etkiler ortaya çıkardı. ACS Bulaşması Dis 2016;2: 361-76.
50. Agrawal AS, Tao X, Algaissi A, Garron T, Narayanan K, Peng BH, ve diğerleri. İnaktive edilmiş Orta Doğu solunum sendromu koronavirüs aşısıyla aşılama, canlı virüsle mücadelede akciğer immünopatolojisine yol açar. Hum Vaccin Immunother 2016;12:2351-6.