NAD(P)(H) Ölçüm Sonuçlarının Meta-analizi, Memeli Dokularında Değişkenlik Gösteriyor
Jun 01, 2023
Nikotinamid Adenin Dinükleotidi (NAD plus), enerji metabolizmasında ve önemli hücresel fonksiyonları kontrol eden sinyal yollarında önemli bir rol oynar. buNAD artı metabolizmaya artan ilgiVeNAD artı artırıcı terapilerdoğru NAD artı miktarının belirlenmesi gerekliliğini güçlendirmiştir. Memeli dokularında yayınlanan NAD(P)(H) ölçümlerini incelemek için birmevcut verilerin meta-analizi. Bir Ovid MEDLINE veri tabanı araması, 1961 ile 2021 yılları arasında yayınlanan memeli dokularından elde edilen NAD(P)(H) ölçüm sonuçlarına sahip makaleleri belirledi. 4890 kaydı taradık ve nicel verileri ve ayrıcaniceleme yöntemleri, analiz öncesi koşullar ve konu özellikleri. Çıkarılan fizyolojik NAD(P)(H) konsantrasyonlarıçeşitli dokularfarelerden, sıçanlardan ve insanlardan, son yayınlara kadar uzanan önemli bir yöntem içi ve yöntem içi değişkenliği ortaya çıkardı. Bu, NAD(P)(H) kantitatif verileri için çapraz deneysel analizler için nispeten zayıf potansiyeli ve NAD(P)(H) niceleme yöntemleri için standardizasyonun önemini vurgular vepreanalitik prosedürlerGelecekteki preklinik veklinik çalışmalar.
Cistanche Anti-Oksidasyon Özellikleri ve Yaşlanma Karşıtı Ürünleri Almak İçin Buraya Tıklayın
Nikotinamid adenin dinükleotid olarak ikili bir rol oynarindirgeme-oksidasyon (redoks)ko-enzim, oksitlenmiş (NAD(P) plus ) veindirgenmiş (NAD(P)H) formlarıve olarakdeasilasyonda yer alan enzimler için yardımcı substrat (NAD(P) plus )1, mono- ve poli-ADP-ribosilasyon2,3 ve adenin bazlı ikinci habercilerin yaratılması4–7. Te NAD(P) artı /NAD(P)H oranı, hücre içi redoks durumunun önemli bir göstergesidir ve temel metabolik yolların düzenlenmesinde kritik bir rol oynar8,9. Örneğin, NAD plus, hücre için ana enerji kaynağı olan adenosin trifosfatın (ATP) üretimi sırasında indirgeyici eşdeğerleri sağlamak için trikarboksilik asit (TCA) döngüsü ile birlikte glikoliz için gereklidir8,9. NAD plus sınırlı olduğunda, memeli hücrelerinde laktat üretmek için piruvat fermantasyonu yoluyla NADH'den yeniden üretilebilir ve böylece hücresel redoks dengesi korunur25. NAD artı ve NADH ayrıca NAD artı Kinazlar (NADK'ler)10,11 tarafından sırasıyla NADP ve NADPH'ye fosforile edilebilir. NADPH, indirgeyici biyosentez, sinyal iletimi, hücresel antioksidan tepkiler ve özellikle glutatyon indirgemesi için gereklidir12-14. Sitosolde NADP plus, diğer reaksiyonların yanı sıra pentoz fosfat yolunun (PPP) glikoz-6-fosfat dehidrojenaz ve 6-fosfoglukonat dehidrojenaz tarafından NADPH'ye indirgenir13. Mitokondride ise NADPH üretimi, nikotinamid nükleotit transhidrogenaz (NNT) ve izositrat dehidrogenazlar (IDH2) enzim aktivitesine bağlı olanlar da dahil olmak üzere çeşitli reaksiyonlarla sürdürülür15. Sonuç olarak, NAD(P)(H) durumunun hücre sinyalleşmesini ve metabolizmasını, enerji homeostazını, mitokondriyal biyogenezi, oksidatif stres tepkilerini ve DNA bakım ve onarımını etkilediği gösterilmiştir16-18. Ayrıca, obezite19, alkolsüz yağlı karaciğer hastalığı20,21, nörodejenerasyon22, mitokondriyal23 ve kardiyovasküler24 hastalıklar ve kas atrofisi veya distrofisi25 gibi yaşa bağlı hastalıkların ilerlemesi NAD artı ilişkili metabolitlerdeki değişikliklerle bağlantılı olduğundan, yaklaşımlar NAD artı homeostazı sürdürmeyi amaçlayan şu anda araştırılmaktadır.
Yaygın redoks geçişlerinin ötesinde, NADP plus, kalsiyum mobilizasyonu, hormon salgılanması ve bağışıklık hücresinde yer alan ikinci haberci NAADP'yi oluşturmak için CD38 gibi cADPR sentazları tarafından katalize edilen bir reaksiyonda nikotinamid grubunu nikotinik asitle değiştirerek tüketilebilir. çoğalma6,7,26. NAD plus, NAM kurtarma yolu aracılığıyla NAD plus'ı yeniden oluşturmak için bir substrat olarak kullanılabilen nikotinamid (NAM) oluşturmak için bir yardımcı substrat olarak hareket ederken de tüketilebilir. NAM ayrıca, N1-metil-2-piridon-5-karboksamid (2py) bozunma ürünlerine oksitlenebilen 1-metil NAM (meNAM) oluşturmak üzere metillenebilir ve N1-metil-4-piridon-3-karboksamid (4py). Sonuçta, metillenmiş katabolitler idrar yoluyla vücuttan temizlenebilir27,28. Te NAD plus havuzu, ikinci haberci NAADP14'ün oluşumu için bir baz değişim reaksiyonu aracılığıyla NADP plus'ın tüketilmesiyle de azaltılabilir. Bu nedenle NAD plus havuzunun sürdürülmesi, Preiss-Handler yolu (yaygın B3 vitamini molekülü niasin (NA; nikotinik asit) ile başlayarak), de novo biyosentez yolu (amino asit triptofan (Trp) ile başlayarak) yoluyla biyosentez gerektirir. veya kurtarma yolu yoluyla NAM'ın NMN'ye ve ardından NAD plus'a dönüştürülmesinden rejenerasyon. Son olarak, kurtarma yolu, nikotinamid ribosid kinaz tarafından NMN'ye fosforilasyonunun ve ardından kurtarma yolu aracılığıyla NAD plus'a dönüştürülmesinin ardından, gıdalarda bulunan alternatif bir B3 vitamini formu olan nikotinamid ribozitten (NR) NAD artı biyosentezi için de önemlidir. .
NAD artı metabolomun dinamiklerini anlamak bu nedenle önemli hale geldi ve sonuçta, normal fizyoloji sırasında veya hastalık ilerlemesi veya sağlıklı yaşlanma sırasında NAD artı metabolitlerin değişimini daha iyi anlamak için titiz metabolit miktarının belirlenmesini gerektiriyor. Bu değişikliklerin net bir resmi, NAD artı metabolomdaki değişiklikleri, doku fenotiplerindeki değişikliklerin anahtarını tutan aşağı akış enzimatik veya redoks reaksiyonlarına bağlamak için gereklidir. İnsanlarda artan sayıda rapor da dahil olmak üzere, memelilerde NAD artı metabolitler hakkında daha önce bildirilen önemli miktarda nicel veri göz önüne alındığında, sağlık ve hastalık sırasında bu değişiklikleri özetlemek çok önemlidir ve zamanındadır. Çok sayıda çalışma, kemirgenlerde ve insanlarda farklı metabolik durumlar, yaşlar ve hastalıklar altında NAD artı metabolom bileşenlerini incelemiştir, ancak numune hazırlama veya miktar tayini için farklı yöntemlere dayanmaktadır. Numune hazırlama, belirli koşullar29,30altında olası bozunma ve dönüşümler nedeniyle redoks reaksiyonlarında yer alan metabolitler için önemlidir. Miktar tayini için, kütle spektrometrisi (LC-MS) ve manyetik rezonans spektrometrisi (MRS) ile birleştirilmiş sıvı kromatografisinin hassas ve spesifik yöntemler olduğu düşünülür31-33, enzim döngü deneyleri ise daha yaygındır. Kantitatif LC-MS yöntemleri, ölçülen bireysel metabolitler ve numunelerin genel matris etkisi için kapsamlı kalite kontrollerinin dahil edilmesini gerektirir; bu, farklı solüsyonlarda ölçüldüğünde belirli bir analit için değişen kütle spektrometrik tepkilerini açıklayan bir etkidir. Bu kontroller olmadan, LC–MS en iyi ihtimalle yarı kantitatiftir. Bu çalışmada, kemirgen ve insan çalışmalarında NAD(P)(H) ölçümlerinde önemli değişkenlik saptadık ve uygun raporlama yöntemlerine ve standart numune işleme ve analitik protokollere duyulan ihtiyacı vurguladık. Genel olarak, NAD artı biyoloji alanındaki mevcut ve gelecekteki verilerin anlamlı bir şekilde yorumlanması için çalışmalar genelinde karşılaştırılabilir NAD(P)(H) veri kümelerine ihtiyaç vardır.

Sonuçlar
Çalışılan türler, cinsiyet ve dokularla birlikte yaygın kantifikasyon yöntemlerinin meta analizi.
Tarihsel olarak, NAD(P)(H) ölçümü için kullanılan erken yöntemler, bu metabolitlerin spektrofotometrik veya florometrik özelliklerine dayanıyordu34,35. Daha yakın zamanlarda, spektrofotometrik veya florometrik algılamayla birleştirilmiş enzim döngüsü yöntemleri, NAD(P)(H) ko-enzim düzeylerini36-38 ayırt etmek için daha yaygın olarak kullanılmaktadır. Diğer NAD artı ilgili metabolitleri ölçme gerekliliği ile birlikte bu ko-enzimlerin miktarının belirlenmesinde yüksek hassasiyet ve çözünürlüğe yönelik artan ihtiyaç, yüksek performanslı sıvı kromatografisi (HPLC) ve LC-MS tekniklerinin kullanılmasına yol açtı. Sıvı kromatografi ile birleştirilmiş kütle spektrometrisi, NAD(P)(H) izotop metabolitlerini dahili spike-in kalitesi olarak dahil etme ek faydasının yanı sıra elute edilen bileşiklerin spesifik olarak tanımlanmasına izin verdiğinden, bu yaklaşımlardan LC-MS tercih edilen yöntem haline geldi. kontroller. Klasik spektrofotometrik veya florometrik deneylere göre avantajlarına rağmen, HPLC ve LC-MS'nin her ikisi de pahalı ve zaman alıcı olmaya devam ediyor, bu da enzim döngüsü deneylerinin son araştırmalarda neden devam ettiğini açıklıyor.
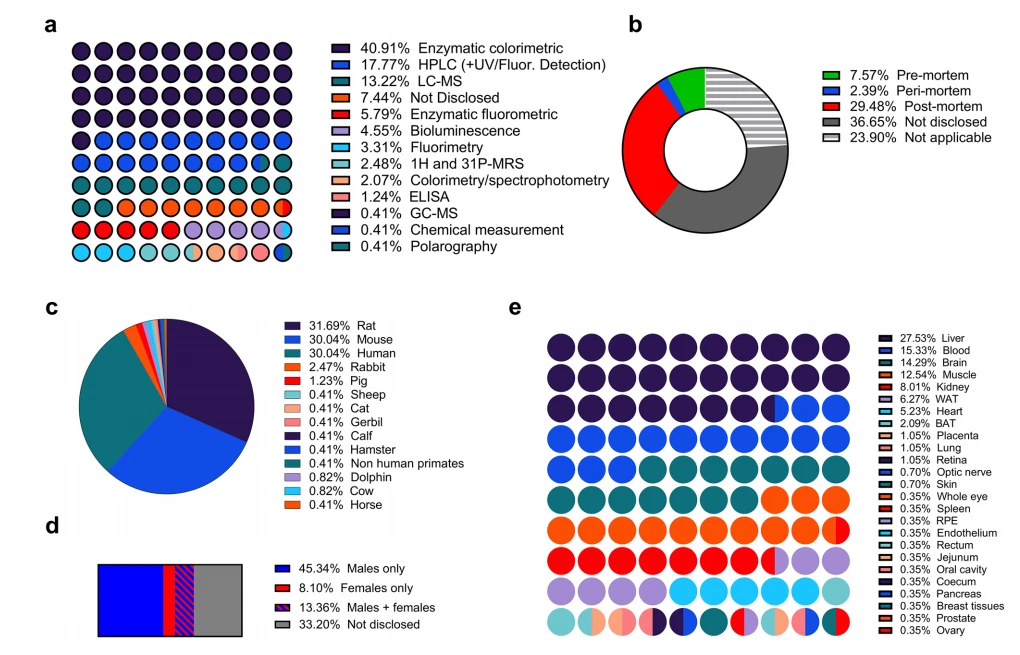
Sistematik bir yaklaşım kullanılarak, 241 uygun çalışmadan (Ek Malzeme 2), fare, sıçan ve insan dokularında NAD(P)(H) konsantrasyonlarının kantitatif bir meta-analizini içeren 205 çalışma daha fazla analiz için seçildi. Bu çalışmaların yüzde 46,7'si, kolorimetrik (yüzde 40,9) veya florometrik (yüzde 5,8) saptamayı içeren enzim döngüsü tahlillerini kullanırken, yüzde 17,8'i HPLC yöntemlerini (UV veya floresan detektörlerle birleştirilmiş) ve yüzde 13,2'si LC-MS tahlillerini kullandı ( Şekil 1a). Çoğu çalışma, metabolit ekstraksiyon prosedürlerinin ayrıntılı bir tanımını içermemektedir. Bununla birlikte, yaygın olarak kullanılan ekstraksiyon prosedürleri, yüzey aktif maddeler (Triton®, Tris, Dodesil trimetil amonyum bromür) içeren veya içermeyen ekstraksiyon tamponlarından veya asetonitril, metanol, etanol veya kloroform gibi polar organik çözücülerden oluşuyordu. Önceki çalışmalar, enzim inaktivasyonunun ve optimum pH ve sıcaklık koşullarının farklı NAD(P)(H) formlarının kararlılığını korumada etkili olduğunu göstermiştir30,39,40. Açıklandığında, numuneler düşük sıcaklık koşullarında işlendi ve dahil edilen çalışmalarda hiçbir redoks katkı maddesinden bahsedilmedi. Redoks reaksiyonları, genellikle etanol, metanol, asetonitril veya perklorik asit (PCA) gibi çözücülerle çökeltme yoluyla NAD(P)(H) metabolit ölçümlerinden önce numunelerdeki enzimlerin etkisizleştirilmesiyle sınırlandırılmıştır. Bununla birlikte, PCA kullanımı, indirgenmiş formların (yani NADH ve NADPH) asit kararsız doğası ve ek bir nötralizasyon adımının gerekliliği nedeniyle nadirdi. Metabolit ekstraksiyonu (yüzde 5,4) sırasında PCA kullanımını bildiren çalışmalar arasında, yüzde 3,7'si yalnızca NAD(P) artı sonuçları bildirdi veya uygun NAD(P)H ölçümü için ikinci bir asidik olmayan ekstraksiyon yöntemi kullandı. Çalışmaların yalnızca yüzde 1,7'si yalnızca PCA ekstraksiyonu kullanılarak NADH, toplam NAD(H) ve/veya NAD artı /NADH sonuçları bildirdi. Bu çalışmalardan elde edilen potansiyel yanlılık, sınırlı veriler nedeniyle analiz edilememiştir.
Kemirgenler ve insanlar için dokulardaki ortalama fizyolojik NAD(P)(H) düzeylerinin karşılaştırılması.
En sık çalışılan fare, sıçan ve insan dokuları için beklenen ortalama fizyolojik NAD(P)(H) seviyelerini belirlemeye yardımcı olmak için, dahil edilen çalışmaların her birinden tüm kontrol ve vahşi tip kohortlardan veriler derledik (Ek Materyal 2) ). Spesifik olarak, doku ağırlığına veya kan söz konusu olduğunda hacme göre normalleştirilmiş ortalama NAD(P)(H) seviyelerini kaydettik. Metabolit seviyelerini protein içeriğine göre normalleştiren çalışmalardan elde edilen veriler, derlenmiş veri setimize (Ek Malzeme 2) dahil edildi, ancak rapor edilen düşük sayıda sonuç göz önüne alındığında daha fazla analiz için kullanılmadı. Ek olarak, mümkün olduğunda, redoks durumunun bir yansıması olarak NAD(P) artı /NAD(P)H oranlarını ve ayrıca toplam NAD(P)(H) seviyelerini (NAD(P) artı artı NAD) hesapladık. NAD(P)(H) düzeltmeleri için ortak raporlama çıktıları olan (P)(H)). Çıkarılan veriler aynı zamanda türleri, suşları, yaşı, cinsiyeti, kantifikasyon yöntemini, diyet ve beslenme programını, numune tipini, numune toplama yöntemini ve hasat zamanını (ölüm öncesi veya sonrası) da içeriyordu.
NAD(H) verilerinin meta-analizi, hayvanlardan fare (Şekil 2a,b, Ek Şekil 1a,b) ve sıçan (Ek Şekil 2a,b) dokularında NAD plus ve NADH için ortalama fizyolojik konsantrasyonları tanımlamıştır. fareler için 14 aydan ve sıçanlar için 18 aydan küçük. Fareler (Şekil 2c, d) ve sıçanlar (Ek Şekil 2c, d) için çıkarılan fizyolojik NAD artı /NADH oranı değerleri aralığı ve toplam NAD(H) seviyeleri (NAD artı artı NADH) çizilmiştir. Fare çalışmalarının aksine, bildirilen fare verilerinin çoğu hayvanların yaşını içermiyordu; ancak, çalışmanın kohortlarını yaşlı olarak sınıflandırmaması koşuluyla bu verileri dahil etmeyi seçtik. En belirgin şekilde incelenen dokular arasında, bu meta-analiz, karaciğer için medyan NAD artı seviyesinin (596 nmol/g, n=26), farelerde diğer tüm dokulardan daha yüksek olduğunu, şaşırtıcı bir şekilde iskelet kasının (162,8 nmol) olduğunu göstermektedir. /g, n=9), doku gramı başına en düşük medyan değerlerden birini sergiler (Şekil 2a). Bu sonuçlar, kasın oldukça lifli yapısından dolayı NAD artı metabolit ekstraksiyonunda azalmış bir etkinlik anlamına gelebilir veya karaciğer ve böbrek gibi diğer yüksek oranda metabolik dokularla karşılaştırıldığında kas NAD artı metabolizmasında önemli farklılıklar olduğunu gösterebilir.

Birkaç kantitatif yaşlanma çalışmasına rağmen, yaşlı farelerden alınan NAD artı seviyeleri, genç kohortlarıyla karşılaştırıldığında ve daha genç farelerle yapılan tüm çalışmaların ortalamasıyla karşılaştırıldığında karaciğer, kas ve retinal pigmentli epitelde (RPE) ortalama olarak azaldı. 14 aylıktan büyük (Ek Şekil 3). Yaşlı hayvanlarda NADH ve NAD artı /NADH oranının bir meta-analizi, bu nicel çalışmalardan yalnızca birinin bu ölçümleri gerçekleştirmesi nedeniyle mümkün değildi.
Bu veriler, yaşlanan hayvanlarda kantitatif NAD(H) verilerinin olmadığını göstermektedir.
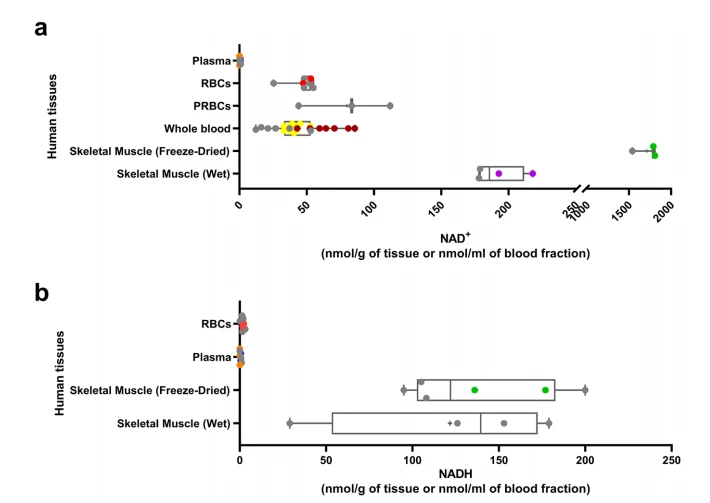
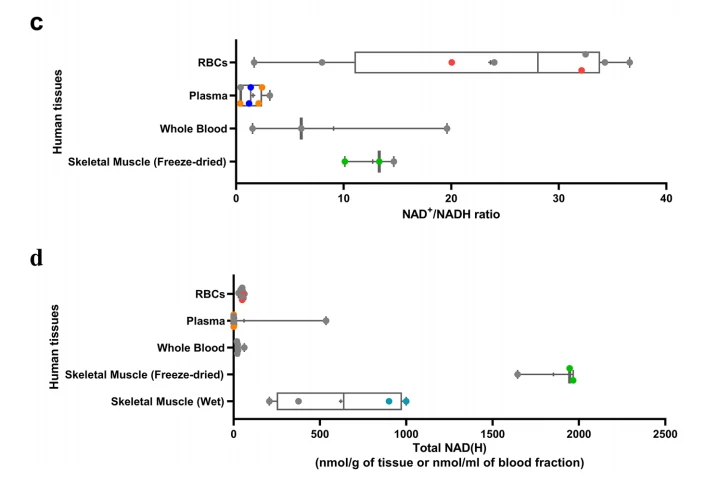
Sağlıklı insanları kullanan çalışmalardan elde edilen veriler için, yaş aralıkları araştırmalar arasında büyük farklılıklar göstermiştir (15 ila 92,3 yaş arası) ve çoğu durumda veriler bu yaşlar arasında sınıflandırılmamıştır. En sık ölçülen insan dokuları, toplamanın daha az invaziv doğası nedeniyle iskelet kası ve kan bileşenlerini içeriyordu (Şekil 3a-d). Diğer insan dokularından elde edilen sonuçlar (n= 1–2), Ek Şekil 4'te gösterilmektedir. Bu analiz, tam kanda ortalama bir NAD artı 44.62 nmol/ml (n=23) konsantrasyon sergiledi; 46.96 nmol/ml'de (n=7) kırmızı kan hücreleri için bildirilen NAD artı konsantrasyonları (Şekil 3a; Ek Tablo 1). Bununla birlikte, kan plazması NAD artı seviyeleri, 0,37 nmol/ml (n=8) medyanıyla önemli ölçüde daha düşüktü (Şekil 3a). İnsanların iskelet kasında bulunan ortalama NAD plus seviyeleri, ıslak kas preparatlarında 191,9 (n=4) nmol/g'ye karşı dondurularak kurutulmuş preparatlarda 1713 (n=3) nmol/g idi, düşük bir sıcaklık muhtemelen metabolitleri yoğunlaştıran dehidrasyon süreci (Şekil 3a). NADH ölçümleri için daha yaygın olarak araştırılan dokularda, insan kırmızı kan hücreleri, plazma ve dondurularak kurutulmuş iskelet kasındaki medyan seviyeler 1,75 nmol/ml (n =7), 0,39 nmol/ml idi. (n=8) ve 136.8 nmol/g (n=6), sırasıyla (Şekil 3b). Karşılık gelen ortanca NAD artı /NADH oranları 23.65 (n{39}}), 1.57 (n=7) ve 12.7 (n=3) idi (Şekil 3c). İlginç bir şekilde, kırmızı kan hücreleri (23.65) ve dondurularak kurutulmuş iskelet kası (12.7) (Şekil 3c) için medyan NAD artı /NADH oranı, çoğu fare ve sıçan dokusundan (Şekil 2c ve Ek Şekil 2c) birkaç kat daha yüksekti. , bu insan dokularında bol miktarda mevcut NAD plus ile oldukça oksidatif bir redoks durumunu gösterir. Kas dokusu söz konusu olduğunda, kastaki NAD artı seviyelerini artırmanın faydalarını tanımlayan kemirgen çalışmalarının translasyonel potansiyeli göz önüne alındığında bunun sonuçları olabilir. Bununla birlikte, kasta yüksek bir NAD artı /NADH oranı, klinik ortamda gecikmiş örnek dondurma prosedürlerinin bir sonucu olabilir ve bu, örnek redoks durumunda fizyolojik olmayan değişikliklere yol açabilir.
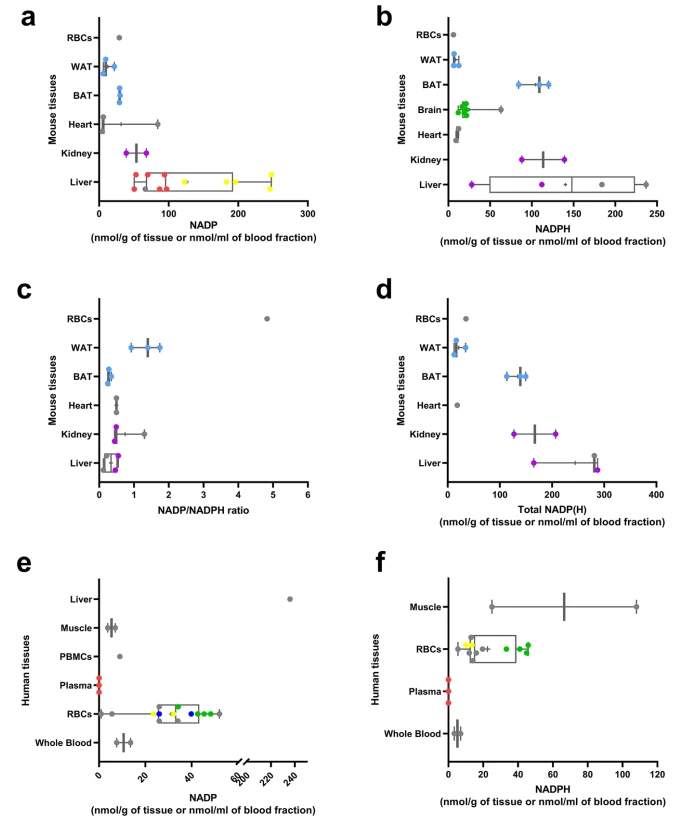
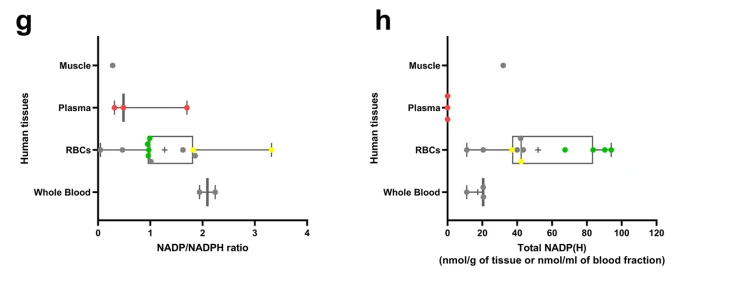
Kemirgen dokularındaki fizyolojik NADP(H) seviyeleri, en yaygın ölçüm karaciğerde olacak şekilde derlendi. Fare karaciğeri, 124,2 nmol/g NADP artı (n=13) ve 140,2 nmol/g NADPH (n=4) şeklinde bir medyan değer sergilemiştir (Şekil 4a,b ), fare karaciğeri medyan 95.11 nmol/g NADP artı (n=10) ve 240.7 nmol/g NADPH (n=9) gösterdi (Ek Şekil 5a,b). Her iki metaboliti de ölçen çalışmalardan elde edilen medyan NADP artı /NADPH oranı, çoğu fare ve sıçan dokusunda 1'den düşüktü (Şekil 4c, Ek Şekil 5c). Fare ve sıçan karaciğerindeki medyan toplam NADP(H) (NADP artı artı NADPH) seviyeleri 244.4 (n=3) (Şekil 4d) ve 342.1 (n=9) (Ek Şekil 5d) idi. , sırasıyla. İnsanlarda en yaygın NADP(H) ölçümleri, NADP artı (n=14) için 33,2 nmol/ml medyan ve NADPH için 22,4 nmol/ml (n{{30}) gösteren kırmızı kan hücrelerinde gerçekleştirilmiştir. }) eşleşmeyen çalışmalardan, medyan NADP artı /NADPH oranı 1,27 ve medyan toplam NADP(H) 52,0 nmol/ml, her iki metaboliti de ölçen çalışmalardan (n=11) (Şekil 4e– H). Genel olarak, NADP(H) için mevcut olan veri miktarı tüm türlerde seyrektir ve bu da her doku için medyan değerlere olan güvenin daha düşük olmasına yol açar.

NAD(P)(H) ölçüm yöntemlerinde yanlılık ve değişkenlik analizi.
Bu meta-analizde yer alan çalışmaların çoğunun kemirgen karaciğer numunelerindeki NAD artı seviyelerini incelediği göz önüne alındığında (Şekil 1c,e), sonuçlarda herhangi bir olası yanlılığı belirlemek için hem fare hem de sıçan karaciğer fizyolojik NAD artı seviyelerini kullandık. niceleme yöntemine (Şekil 5a,b). Bu analize dahil edilen farelerin ortalama yaşı 17,9 haftaydı (Aralık: 2-55 hafta), 6 çalışmada hayvanların yaşı açıklanmadı. Sıçanlar için çoğu çalışma, 2 gün ile 8 ay arasında değişen üç çalışma dışında hayvanların yaşını açıklamadı. Çalışmaların hiçbiri yaşlı hayvanların kullanıldığını bildirmedi. Fare karaciğerinde, NAD plus için bildirilen geniş konsantrasyon aralığı karaciğerin 1,8 ila 1132 nmol/g'ını kapsıyordu ve ortalama değeri 596 idi.0 (n=26) (Şekil 5a) NADH konsantrasyonları, ortalama 66.43 (n{22}}) değeriyle 0,9 ila 109 nmol/g doku arasında değişirken (Ek Şekil 6a). Daha da önemlisi, fare karaciğerindeki ortalama fizyolojik NAD plus ve NADH sonuçları için sırasıyla yüzde 52,5 ve yüzde 76,5'lik bir varyasyon katsayısı hesaplandı ve bu, çalışmalar arasındaki değişkenliğin kapsamını gösteren çoklu niceleme yöntemleriyle ölçülmüştür. Bu sonuçlardan tahmin edildiği gibi, fare karaciğerindeki ortalama NAD artı /NADH oranı (3,41 artı /− 3,16 SD, n=19), yüzde 92,7'lik bir CV ile eşit derecede geniş bir değişkenlik aralığı gösterdi (Ek Şekil 6c) . NAD artı ve NADH ölçümlerinde benzer değişkenlik, sıçan karaciğerinde de gözlendi (NAD artı için CV{36}},6 yüzde ve NADH için CV{38}},4 yüzde). Sıçan karaciğerinde NAD plus ve NADH için karşılık gelen konsantrasyonlar sırasıyla 159 ila 796 (n=16) ve 65 ila 265 (n=12) nmol/g arasında değişmiştir (Şekil 5b, Ek Şekil 6b ), NAD artı /NADH oranları yüzde 50,1'lik bir CV sergilerken (Ortalama: 3,219 artı /− 1,612 SD, n=23) (Ek Şekil 6d). Fare ve sıçan karaciğerindeki NAD artı , NADH, toplam NAD(H) ve NAD artı /NADH oranı verileri için ortalama değerler ve standart sapmalar, miktar belirleme yöntemiyle gruplandırılmış, Ek Tablo 2'de gösterilmektedir. NADP(H) seviyeleri ile ilgili ve NADP artı / NADPH oranı, karaciğer dokularında benzer değişkenlik gözlendi. NADP artı seviyeleri, fareler için 50,4 ila 247,4 nmol/g doku (Ek Şekil 8a) ve sıçanlar için 45,7 ila 171 nmol/g doku (Ek Şekil 8b) arasında değişirken, NADPH seviyeleri fareler için 28 ila 236,9 nmol/g doku (Ek Şekil 8c) ve sıçanlar için 90 ila 409 nmol/g doku (Ek Şekil 8d) arasında değişmektedir. Son olarak, NADP artı /NADPH oranı, fare karaciğerinde (Ek Şekil 8e) 0,12 ila 0,55 ve sıçan karaciğerinde 0,12 ila 1,44 arasında değişmiştir (Ek Şekil 8f).
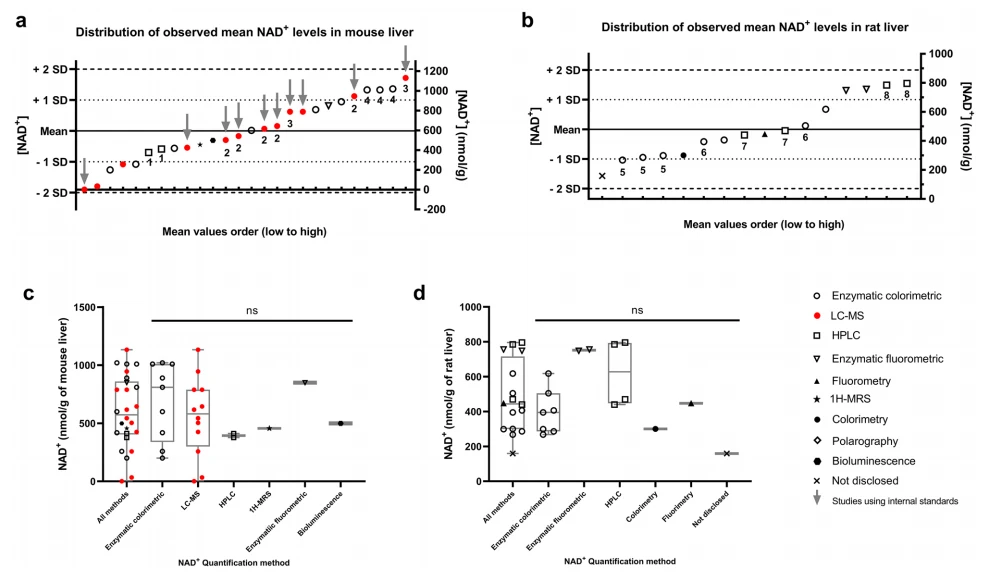

en geniş sonuç aralığında (1,8 ila 1132,3 nmol/g). İncelenen en son LC-MS çalışmaları bile, 1,8 nmol/g41 ve 33,8 nmol/g42 değerleri ve çok daha yüksek 946,3 nmol/g43 ve 1132,3 nmol/g44 değerleri dahil olmak üzere bu NAD artı değerlerinin aralığını örneklendirmiştir. Ek olarak, geniş LC-MS NAD artı değerleri aralığı, izotop etiketli dahili standartları (Şekil 5a) hariç tutan çalışmalarla ilişkili görünmüyordu (Şekil 5a), bu yöntem metabolitin tanımlanmasını ve ölçülen değerin doğruluğunu geliştirmek için kullanılır . Bununla birlikte, bir dahili kontrol dahil etmek yerine yalnızca NAD için harici bir standart eğriye ve kantifikasyona dayanan tanımlanmış iki LC-MS çalışması, ortalama olarak tüm ölçümlerin ortalamasından daha düşüktü (Şekil 5a). Ayrıca dahili standart normalizasyonu kullanan çalışmalarda, tek bir etiketli referans metabolit45,46 veya mayadan43,44 veya hücre kültürlerinden41 etiketli metabolit ekstraktlarının dahil edilmesi gibi farklı türde dahili standartlar kullanılmıştır. İlginç bir şekilde, maya veya hücre kültürü ekstresinden türetilmiş standartları kullanan bu çalışmalar, karaciğer NAD artı seviyeleri için en yüksek veya en düşük LC-MS'den türetilmiş ölçümleri sağladı. Bu, izotop açısından zengin standartların hücresel ekstraktlarının NAD artı ölçümlerdeki değişkenliğe nasıl katkıda bulunabileceğini vurgulamaktadır çünkü eklenen standart maya veya hücresel ekstraktın matris etkisi, iyonizasyon verimliliğine ve sonuç olarak hedef metabolitlerin ölçülen konsantrasyonlarına müdahale edebilir.
Bu niceleme yanlılığı ve değişkenlik analizinin sınırlamaları, çevre, genetik arka plan, kurban etme, cinsiyet ve yaştaki potansiyel farklılıkları içerir. Bu analiz için tüm veriler, yemle beslenen hayvanlardan alınmıştır, ancak tür olarak farklılık gösterebilir. Kurban edildiğinde, hayvanın tok veya aç durumunda ve kurban için günün saatinde bildirilen farklılıklar vardır. Ek olarak, fare çalışmalarının çoğu bir C57BL/6 arka planı üzerinde gerçekleştirilmesine rağmen, çalışmalar genelinde sıçanlar için kullanılan daha geniş bir arka plan aralığı vardı (Wistar: yüzde 38 , Albino Wistar: yüzde 25 ve Hooded Wistar, Sprague–Dawley için yüzde 6, Holtzman, ACI, Long-Evans ve Zucker fareleri). Fare karaciğer çalışmalarında, NAD artı , NADH veya toplam NAD(H) seviyeleri veya NAD artı /NADH oranı için erkek veya dişi değerleri arasında istatistiksel fark yoktu (Ek Şekil 7). Ancak kadın kohort sayısının sınırlı olması nedeniyle bir sonuca varamıyoruz.
Daha fazlasını iste:
E-posta:wallence.suen@wecistanche.com whatsapp: artı 86 15292862950