

Bölüm 2:Huperzine A ve Alzheimer Hastalığında Nöroprotektif Moleküler Sinyali
Mar 21, 2022
İletişim:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Lütfen Bölüm 1 için buraya tıklayın
Lütfen Bölüm 3 için buraya tıklayın
Cistanche Alzheimer hastalığına yardımcı olabilir
3. HupA'nın AD'ye Karşı Nöroprotektif Moleküler Sinyallemesi
businir koruyucuHupA tedavisinin etkileri, nörotrofik faktör ekspresyonunu, sinaptik aktiviteyi, N-metil-D-aspartat (NMDA) reseptörünün (NMDAR) antagonizmini, ROS modülasyonunu ve nöronal sağkalımı artıran kolinerjik sinyallemeden kaynaklanır [3,9].
Sinaptik vezikül salınımı Hupa'nınsinir koruyucumekanizmalar. CNS sinapslarındaki sinaptik vezikül döngüsü sırasında, sinaptik veziküller aktif taşıma yoluyla nörotransmitterlerle doldurulur ve bir vezikül havuzu oluşturur. Doldurulmuş veziküller, onları Ca2 artı tetiklenen füzyon gözenek açılması için yetkin kılan bir hazırlama reaksiyonuna maruz kaldıkları aktif bölgeye kenetlenir [47]. Bu adımda, sinaptotagminler Ca2 artı sensörler olarak işlev görür; aslında, sinaptotagmin- 1 nakavt, nörotransmitterlerin senkronize ve hızlı salınımından yoksundur, bu da işlevlerinin ne kadar alakalı olduğunu gösterir [47]. HupA, sinaptik vezikül ekzositozu ve nörotransmitter salınımını geliştirerek sinaptotagmin ekspresyonunu destekler [48] (bkz. Tablo 1).
Daha önce bahsedildiği gibi, HupA AChE'yi inhibe eder, bu nedenle HupA tedavisinden sonra asetilkolin birikecektir. Asetilkolin sinyali, esas olarak 7nAChR'ler ve 4 2nAChR'ler aracılığıyla etki ederek bir anti-inflamatuar yanıt üretir [39]. Asetilkolin sinyalizasyonu, mitojenle aktive olan protein kinazlar/hücre dışı sinyalle düzenlenen kinazlar (MAPK/ERK) yolu aracılığıyla nöral progenitör hücrelerin işlevini modüle eder;sinir koruyucufonksiyonlar [49]. Aynısı, beyinden türetilen nörotrofik faktör (BDNF)/tropomiyozin reseptör kinaz B (TrkB) sinyallemesi ile olur, bu da fosfatidilinositol 3-kinaz (PI3K)/Akt serin-treonin kinaz yolunu aktive eder (bkz. Tablo 1). BDNF/TrkB'ye bağlı PI3K/TrkB/memeli rapamisin hedefi (mTOR) sinyal yolunun aktivasyonu apoptozu baskılar ve nöronal sağkalıma katkıda bulunur [50]. Bazal ön beyin kolinerjik nöronlarında BDNF'deki kolinerjik artış, uzun süreli güçlenmenin (LTP), sinaptik iletimin (sinaptik öncesi ve sonrası bölgelerde etki ederek) indüksiyonunu ve sürdürülmesini ve uyarıcı nörotransmitter glutamatın presinaptik salınımını geliştirir [51], böylece kolinerjik nöron kaybını önler ve bilişsel işlevleri korur [52,53]. Son olarak, HupA, çoklu gen-biliş-çevre etkileşimlerinde gerekli olan, CREB/BDNF yolunda BDNF ile etkileşime giren hipokampusta fosforile edilmiş siklik adenosin monofosfata yanıt veren element bağlayıcı protein (CREB) düzeylerini artırır [54]. Ana birisinir koruyucuHupA'nın etkileri, farklı kolinerjik mekanizmalar yoluyla A birikimini ve nörotoksisiteyi iyileştirmesidir [55]. İlk olarak, AChEI aktivitesi aracılığıyla, HupA, önceki bölümde açıklandığı gibi (bkz. Şekil 2) [19,56,57] AChE-A etkileşimini bozar ve p53-aracılı nöronal ölümü [37] azaltır. HupA, post-sinaptik hücre adezyon molekülü nöroligin 1 (NL1) ile benzer bir etki gösterir [48]. NL1, kolinesterazlara (ChEs) yüksek derecede benzerlik gösteren hücre dışı bir alana sahiptir [58,59]. NL1 ve A oligomerleri arasındaki etkileşim bildirilmiştir. NL1'in saflaştırılmış hücre dışı ChE benzeri alanı, doğrudan A oligomerlerine [60] bağlanır ve A oligomerleri, uyarıcı hipokampal sinapslarda [61] NL1 ile birleşir. AChE'de olduğu gibi, HupA, NL1'in [46] ChE benzeri alanı ile etkileşime girerek A-NL1 etkileşimini bozar ve oligomerizasyon kaynaklı eksitotoksisiteyi aşağı doğru düzenler (bkz. Tablo 1). HupA, A oligomerleri ile etkileşimi bozmanın yanı sıra, A birikimini de hafifletir. HupA'nın APP üretimi üzerinde hiçbir etkisi olmamasına rağmen, onun bölünmesini modüle eder.
APP, iki olası yoldan biriyle bölünür. -Sekretaz amiloidojenik olmayan yolda, APP, disintegrin ve metalloproteinaz alanı içeren protein 10 (ADAM10) gibi bir -sekretaz tarafından bölünerek APP'nin çözünür ektodomaini (sAPP) ve zara bağlı bir hücre içi C-terminal fragmanı (C83) üretir. ). Bir y-sekretaz tarafından daha fazla işleme, C83'ü parçalayarak bir 3-kDa peptidi (P3) ve bir APP hücre içi alanı (AICD) [62] verir. P3 ve AICD hem nörotrofiktir hem desinir koruyucu[26]. Öte yandan, /y-sekretaz amiloidojenik yolunda, bölünme BACE1 tarafından yapılır ve biraz daha kısa çözünür APP fragmanı (sAPP) ve bir C99 fragmanı verir. Bir y-sekretaz tarafından daha fazla işleme, C99'u parçalar ve AD patolojisinin bir özelliği olan AICD ve A peptidini serbest bırakır [62].
HupA, sAPPa ve C83 fragmanlarının ekspresyonunu arttırır [26,32] ve BACE1-APP birleşmesini engelleyen BACE1'in membran translokasyonunu aşağı regüle ederken doza bağlı olarak ADAM10'un kurucu ekspresyonunu geri yükler (bkz. Şekil 3 ).
Tablo 1. Demansla ilişkili patolojilerde HupA'nın kolinerjik mekanizmalarının moleküler hedefleri ve tedavinin etkileri.
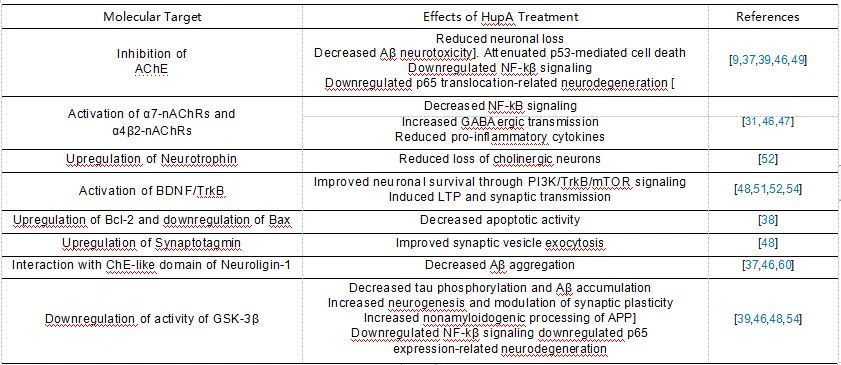
(AChE: asetilkolinesteraz; nAChR'ler: nikotinik asetilkolin reseptörleri; Bcl-2: B hücreli lenfoma-2; Bax: Bcl-2-benzeri protein 4; Gsk-3 : glikojen sentaz kinaz -3 : mTOR: rapamisinin memeli hedefi; BDNF: beyin kaynaklı nörotrofik faktör; TrkB: tropomiyosin reseptör kinaz B).
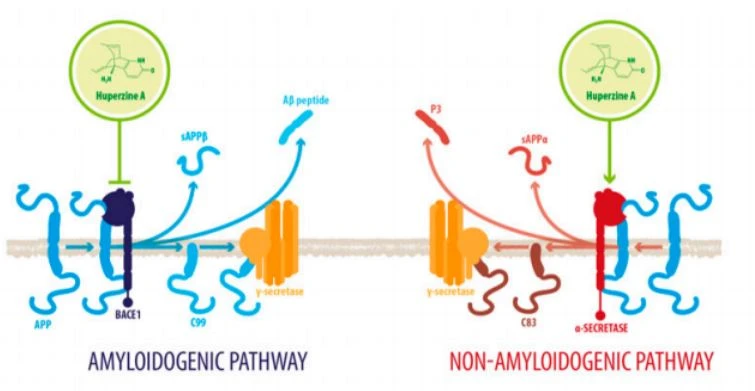
Şekil 3. HupA, APP işlemeyi düzenler. HupA, çözünür -APP fragmanları, P3 peptidi ve bir C83 fragmanı üreten bir -sekretaz tarafından amiloid öncü proteinin (APP) bölünmesi yoluyla amiloidojenik olmayan yolun aktivitesini doza bağlı olarak arttırır. Bunlar hem nörotrofik hem de nöroprotektiftir ve HupA tedavisinden sonra düzenlenir. HupA, A peptidini oluşturmak üzere bölünen C99 fragmanına ek olarak, amiloidojenik yol olarak bilinen şeyde çözünür -APP fragmanları üreten BACE1 a /y-sekretaz seviyelerini de azaltır. Bu ürünler, nöronal membran kabarması ve hücre büzülmesi gibi hücre ölümüne yol açan apoptotik tepkileri tetikler (APP: amiloid öncü protein; BACE1: beta bölgesi amiloid öncü protein parçalayıcı enzim 1; sAPP: çözünür amiloid öncü protein-; sAPP: çözünür amiloid öncü protein- ).
mAChR'lerin ve protein kinaz C (PKC)/MAPK yollarının aktivasyonu, bu etki için bir mekanizma olarak önerilmiştir [15,23,46] ve ayrıca ADAM10 transkripsiyonunu da düzenleyebilen HupA aracılı ERK1 / 2 fosforilasyonu artışı. APP işlemenin kolinerjik modülasyonu için başka bir mekanizma, Wnt sinyalinin aktivasyonudur. Wnt sinyali, presinaptik birleşmede, omurgalı periferik nöromüsküler sinapslarda postsinaptik farklılaşmada, kök hücre farklılaşmasında ve CNS'nin gelişimi ve sürdürülmesinde çok önemli bir rol oynar [63–65]. Son kanıtlar, vasküler stabiliteyi, KBB bütünlüğünü ve inflamasyonu da düzenlediğini göstermektedir [66]. Kanonik Wnt yolunda veya Wnt/ -katenin yolunda, Wnt ligandları, hücre yüzeyinde Frizzled (FZD) ve düşük yoğunluklu lipoprotein ile ilgili protein (LRP) familyalarının reseptörlerine bağlanır ve GSK dahil olmak üzere birçok sitoplazmik röle bileşenini aktive eder{{{ 13}} ve adenomatöz polipozis koli (APC), son olarak -katenin sinyali verir. -katenin çekirdeğe girer ve Wnt hedef genlerinin transkripsiyonunu aktive etmek için lenfoid güçlendirici bağlayıcı faktör 1 (LEF1) ile bir kompleks oluşturur. -katenin'den bağımsız olan Wnt sinyal yollarına, Wnt/Jun N-terminal kinaz (JNK) yolu olarak da bilinen düzlemsel hücre polaritesi (PCP) yolunu ve Wnt/Ca2 yolunu içeren kanonik olmayan yollar olarak atıfta bulunulur. artı yol [63] (bkz. Şekil 4).
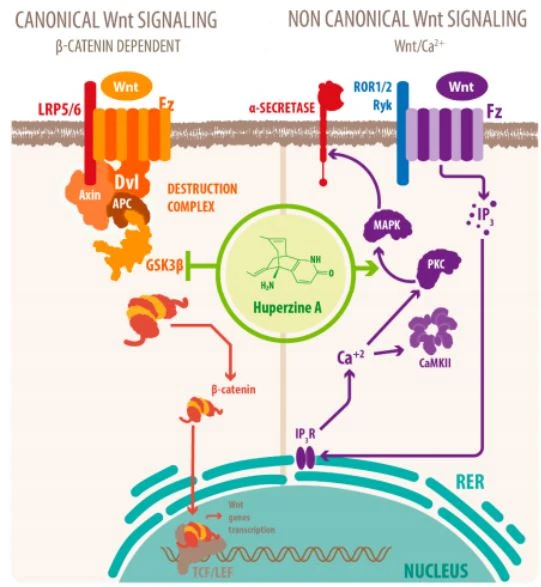
Şekil 4. HupA, Wnt sinyalini etkiler. HupA, hem kurallı hem de kurallı olmayan Wnt sinyalini etkiler. Kanonik sinyalleme ile ilgili olarak, HupA, GSK-3 aktivitesini aşağı regüle ederek Wnt/ -katenin yolunu modüle eder. HupA, -katenin'i stabilize eden ve sinaptik plastisite ve nöronal hayatta kalma ile ilgili hedef genlerinin ekspresyonunu yükselten GSK-3/'nin fosforilasyon seviyelerini arttırırken, tau hiperfosforilasyonu ve A nörotoksisitesini önler. HupA ayrıca PKC/MAPK sinyallemesi yoluyla kanonik olmayan yolla etkileşime girer. PKC aktivasyonu ayrıca GSK-3 aktivitesini de inhibe eder ve -sekretaz ekspresyonunun düzenlenmesinde rol oynar, A birikimini ve nöronal apoptozu önler (Wnt: kanatsız ilişkili entegrasyon bölgesi; GSK3: glikojen sentaz kinaz 3; PKC: protein kinaz C; MAPK: mitojenle aktive olan protein kinaz).
Wnt sinyalinin inhibisyonu bilişsel eksikliklere neden olur, tau fosforilasyonunu arttırır, hipokampusta A 1-42 peptit konsantrasyonlarını ve A 42/A 40 oranını arttırır ve beyin omurilik sıvısındaki A 1-42 konsantrasyonlarını düşürür, bu da yetersiz klirensin göstergesidir BBB boyunca [18]. Böylece, HupA tarafından Wnt sinyalinin aktivasyonu, A yükünü ve bilişsel eksiklikleri iyileştirir [23,25,32].
Wnt hedef genlerinin -katenin translokasyonu ile transkripsiyonel aktivasyonu, APP işlemini ADAM10'a yönlendirirken, BACE1 transkripsiyonunu baskılayarak, böylece daha önce bahsedildiği gibi Wnt sinyalini ve A birikimini [67] bağladığından, Wnt sinyali ayrıca APP'nin amiloidojenik olmayan işlenmesini de modüle eder. GSK-3, Wnt'nin sitoplazmik röle bileşenlerinden biridir ve artan aktivasyonu, kanonik Wnt sinyalini [63] ve aşırı tau protein fosforilasyonu ve A üretimi gibi AD'nin ayırt edici özelliklerini engelleyen -katenin fosforilasyonunun artmasına neden olur. Ek olarak, A'nın PI3K/Akt sinyalini bozarak GSK'nın etkinleştirilmesine yol açtığı gösterilmiştir-3 . Bu, tau hiperfosforilasyonunu, nörofibriler yumak oluşumunu, sinaptotoksisiteyi, sinaptik kaybı ve nihayetinde nöron ölümünü indükleyen bir geri besleme döngüsü yaratır [64]. Bununla birlikte, daha önce bahsedildiği gibi, HupA, PKC sinyalini arttırır ve PKC, GSK-3 aktivitesini inhibe ederek tau fosforilasyonunu ve A üretimini önler (bakınız Şekil 4) [32]. Wnt ve PKC sinyalleşmesinin aktivasyonu yoluyla, HupA tedavisi, APP'nin amiloidojenik olmayan işlenmesini kurtarır ve bu yolların HupA'lar için merkezi olabileceğini gösterir.sinir koruyucuA yüküne karşı etkiler [32] (bkz. Tablo 1). Ayrıca, bu mekanizmalar aracılığıyla HupA, presinaptik yapıyı ve sinaptik plastisiteyi korur [26,32,61,68] (bkz. Tablo 1).

cistanche ilaç özelfor Alzheimer hastalığı
HupA ayrıca kolinerjik olmayan mekanizmalar yoluyla da hareket eder, mitokondriyal yapı ve işlevin yanı sıra Fe2 artı homeostazı hedef alır. Morfolojideki değişiklikler, bozulmuş bir trikarboksilik asit (TCA) döngüsü, azaltılmış sitokrom C (CytoC) oksidaz aktivitesi ve oksidatif stres dahil olmak üzere AD patolojisinde mitokondriyal bozulmalar tanımlanmıştır [69]. A, mitokondride birikerek mitokondriyal protein A - bağlayıcı alkol dehidrojenaz (ABAD) ile etkileşime girerek nörotoksisite ve apoptoza yol açan bozulmalara neden olabilir. Bir birikim ve mitokondriyal disfonksiyon, bilişsel kayıpla ilgili nörodejeneratif yolları aktive etmek için sinerji oluşturur [52,53]. Mitokondri, CytoC gibi proteinleri intermembran ve Intracoastal boşluklardan salarak, ardından kaspazların ve apoptoz indükleyici faktörün (AIF) (kaspazdan bağımsız bir apoptoz yolu) aktivasyonu ile apoptozu başlatır. Dış membran geçirgenliği mitokondriyal metabolik yetmezliğe ve ardından mitokondriyal şişmeye ve nöronal ölüme yol açar [69]. Buna karşılık, APP aşırı ekspresyonu, doğrudan etkileşim yoluyla mitokondriyal matriste NIPSNAP1 protein lokalizasyonunu bozarak, dallı zincirli ketoasit kompleksinin dihidrolipoil transasilaz ve dihidrolipoil transasetilaz bileşenlerinin bağlanmasını değiştirerek ve mitokondriyal iç membranda [iç zarda piruvat dehidrojenaz kompleksi] mitokondriyal fonksiyonu etkileyebilir. 37] (bkz. Şekil 5). HupA, apoptotik indükleyici sinyalleri azaltarak (bkz. Tablo 2) CytoC ve kaspaz -3 bölünmesinin [69] sitoplazmik translokasyonunu inhibe eder ve mitokondriyal matriste NIPSNAP1 protein lokalizasyonunun bozulmasını tersine çevirerek muhtemelen APP ile indüklenen mitokondriyal disfonksiyonu önler [37]. HupA ayrıca glutatyon peroksidazı (GSH-Px), süperoksit dismutazı (SOD) ve katalazı (CAT) yukarı regüle ederek oksidatif stresi önler [70]. HupA aracılı nöroproteksiyon muhtemelen, korunmuş enerji homeostazı anlamına gelen membran potansiyelini ve ATP üretimini geri kazandıran sağlam bir çift zarın restorasyonunu içerir [35,52] (bkz. Tablo 2). Proteomik analiz, HupA'nın oksidatif fosforilasyonda yer alan proteinlerin ekspresyonunu arttırdığını doğrular [37].
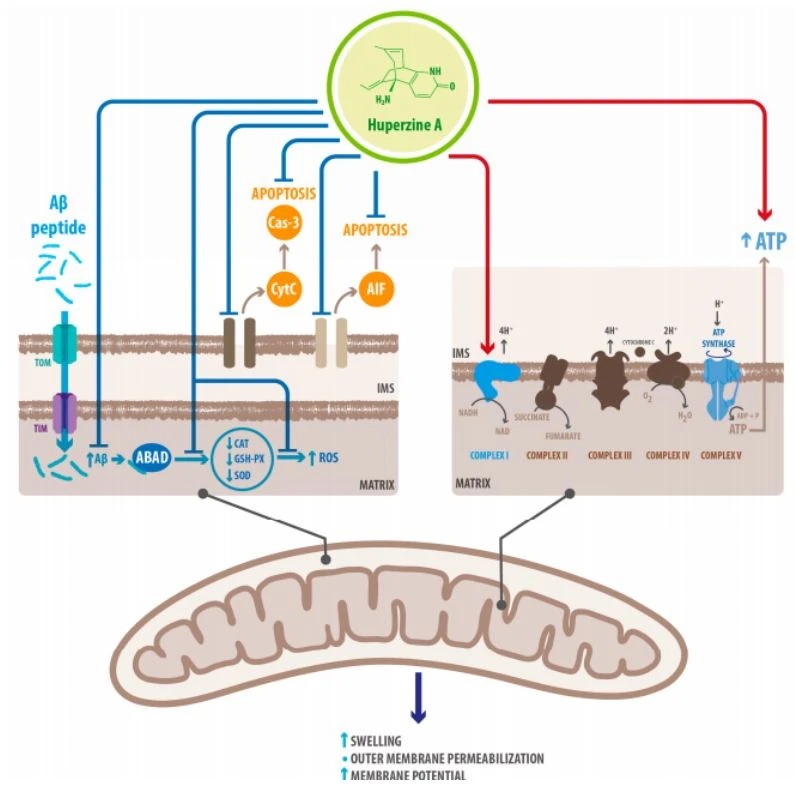
Şekil 5. HupA, A'ya maruz kaldıktan sonra mitokondriyal bütünlüğü kurtarır. A, mitokondriyal çift zarı geçer ve matriste toplanır. Mitokondriyal bozulmalar, morfolojideki değişiklikleri, tehlikeye giren TCA döngüsünü ve azaltılmış CytoC oksidaz aktivitesini içerir. Hücre ölümü, kaspazları ve AIF'yi (kaspazdan bağımsız apoptoz yolu) aktive eden intermembran ve Intracoastal boşluklardan proteinlerin salınmasıyla başlatılır. Dış membran geçirgenliği, müteakip mitokondriyal şişme, ROS birikimi ve nöronal ölümle birlikte mitokondriyal metabolik yetmezliğe yol açar. HupA tedavisi, matriste A birikimini ve mitokondriyal proteinlerle A etkileşimini önler. HupA, CytoC'nin salınmasını ve ardından apoptozu önler. Ayrıca genel membran stabilitesini kurtarır, böylece mitokondriyal enzimatik aktiviteyi, membran potansiyelini ve ATP oluşumunu korur. HupA ayrıca oksidatif fosforilasyonda yer alan proteinleri zenginleştirerek mitokondriyal solunumu iyileştirir (ABAD: amiloid beta bağlayıcı alkol dehidrojenaz; CAT: katalaz; GSH-PX: glutatyon peroksidaz; SOD: süperoksit dismutaz; ROS: reaktif oksijen türleri; IMS: zarlar arası boşluk; CytoC : sitokrom C; Cas-3: kaspaz-3; AIF: apoptozu indükleyen faktör).
Tablo 2. Demansla ilişkili HupA'nın nonkolinerjik mekanizmalarının moleküler hedefleri ve tedavinin etkileri.
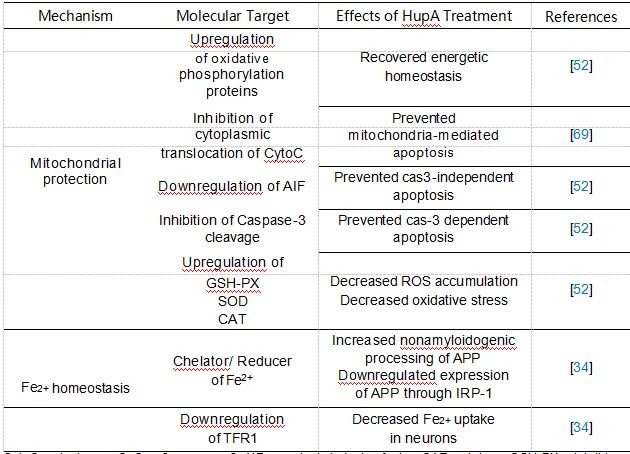
Cytotec: sitokrom C; Cas-3: kaspaz-3; AIF: apoptozu indükleyen faktör; CAT: katalaz; GSH-PX: glutatyon peroksidaz; SOD: süperoksit dismutaz; TFR1: transferrin reseptörü 1; ROS: reaktif oksijen türleri; APP: Amiloid öncü proteini; IRP: demir düzenleyici protein).
Fe2 artı homeostazı ile ilgili olarak, AD fare modellerinin, WT farelerine kıyasla korteks ve hipokampusta yüksek Fe2 artı seviyelerine sahip olduğu bildirilmiştir. Buna göre, transferrin reseptör proteini 1'in (TFR1) ekspresyonu APPswe/PS1dE9 farelerinde yukarı doğru düzenlenir, bu da Fe2 artı alımındaki artışı açıklar [34]. Fe2 artı aracılı nörodejenerasyon, APP promotöründe tanımlanmış olan fonksiyonel bir demire duyarlı element (IRE) nedeniyle APP ekspresyonunda eşzamanlı bir artışla birlikte, nonamilaaoidojenik yolu inhibe ederek -sekretaz aktivitesinin aşağı regülasyonundan kaynaklanabilir. APP seviyelerinin neden Fe2 plus tedavisinden sonra arttığı ve şelatör tedavisinden sonra düştüğü. Alternatif bir açıklama, APP'nin translasyonel ifadesinin, APP mRNA ile demir düzenleyici protein-1 (IRP-1) [34] arasındaki klasik baskılayıcı etkileşimin salınması yoluyla yönlendirilebileceği olabilir. HupA, IRP'nin-1 APP çevirisini başlatma kapasitesini azaltarak, doğrudan bir Fe2 artı şelatör görevi görebilir [34]. HupA ayrıca farelerde in vivo olarak TFR1 ekspresyonunu aşağı regüle eder, bu da nöronlarda transferrine bağlı demir (TBI) alımını azaltır [34] (bkz. Şekil 6) (bkz. Tablo 2).

herba epimedium yay
Son olarak, HupA'nın nAChR'lerin aktivasyonu yoluyla proinflamatuar sitokin ekspresyonunu azaltması dikkate değerdir. Kolinerjik anti-inflamatuar yolu aktive ederek, CNS'deki inflamatuar refleksin efferent arkı, baskılanmış inflamatuar sitokin ekspresyonu ve sistemik inflamatuar yanıtlarla sonuçlanır. 7nAChR'nin aktivasyonu, proinflamatuar sitokinlerin üretimini inhibe ederek makrofajları, mikroglia ve astrosit aktivasyonunu aşağı regüle ederken, anti-inflamatuar sitokin ekspresyonu değişmez [10,46,71]. HupA'nın kolinerjik anti-inflamatuar etkileri, IL-1, IL-6 ve TNF-sekresyonunu ve NF-kB sinyalini aşağı regüle ederek, nöroinflamatuvar yanıtı zayıflatır [72].
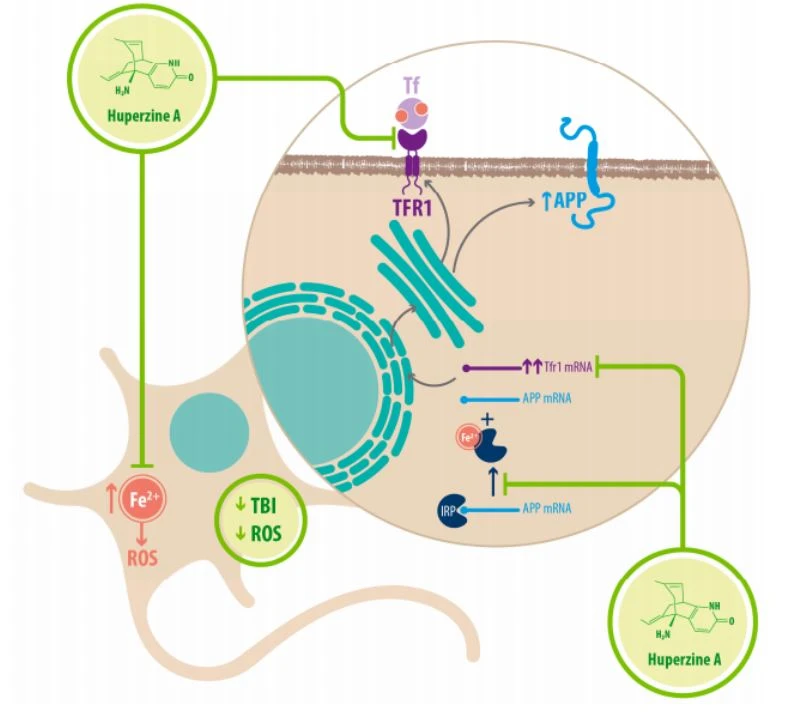
Şekil 6. HupA, Fe2 artı homeostazı düzenler. HupA, nöronların içinde Fe2 plus birikimini engeller. TFR1 ekspresyonunu aşağı regüle ederken ve hücreye Fe2 artı alımını önlerken bir şelatör görevi görebilir. HupA, nöron içindeki Fe2 artı konsantrasyonunu azaltarak APP çevirisini azaltır. Fe2 plus, IRP'yi bağlar ve daha sonra çevrilebilen APP mRNA'dan serbest bırakır. HupA varlığında Fe2 artı konsantrasyon düşer ve daha az IRP salınır, anlamsız APP çevrilir. HupA, tüm bu mekanizmalar yoluyla ROS'u dolaylı olarak azaltır (TFR1: transferrin reseptörü 1; Tf: transferrin; TBI: transferrine bağlı demir; ROS: reaktif oksijen türleri; APP: Amiloid öncü protein; IRP: demir düzenleyici protein).

hafıza için ekinakozit


