

Küçük Ama Güçlü - Eksozomlar, Nörodejenerasyonda Yeni Hücreler Arası Haberciler Bölüm 3
Jun 05, 2024
Mikroglia'dan Türetilmiş Eksozomlar: Mikroglial hücreler beyin ve omuriliğin makrofajlarıdır. Glia'nın yaklaşık %10'unu oluştururlar.
Mikroglia, beyindeki nöron olmayan bir hücre türüdür ve sinir sisteminde en çok bulunan hücrelerdir. Geçmişte mikrogliaların esas olarak oksijen ve besin sağlayan nöron destekleyici hücreler olduğu düşünülüyordu.
Ancak son araştırmalar mikrogliaların insan sağlığı ve bilişsel işlevlerde önemli bir rol oynadığını ortaya çıkardı. Çalışmalar mikroglia'nın öğrenme ve hafıza sürecinde hayati bir rol oynadığını göstermiştir.
Mikroglia esas olarak nöronal büyüme faktörü adı verilen bir maddeyi serbest bırakarak nöronların büyümesini ve gelişmesini destekler. Bu büyüme faktörü sadece nöronların bağlantı kurmasına ve bilgi iletmesine yardımcı olmakla kalmaz, aynı zamanda yeni nöronların oluşumunu da teşvik eder. Bu etkiler sağlıklı öğrenme ve hafızayı sürdürmek için kritik öneme sahiptir.
Öte yandan mikroglia, beyindeki fazla nöronları ve sinapsları da ortadan kaldırabilir ve sinir sisteminin sağlıklı gelişimini destekleyebilir. Bu uzaklaştırma işlemi beyindeki bozucu sinyallerin azaltılmasına ve bilişsel işlevin iyileştirilmesine yardımcı olabilir.
Ek olarak mikroglia, beyne oksijen ve besin maddelerinin ulaşmasını teşvik ederek nöronları oksidatif hasardan koruyabilir. Bu hücreler aynı zamanda bilişsel dejenerasyona ve nörodejenerasyona karşı direnç göstermede de çok önemli bir rol oynar.
Kısacası mikroglia'nın önemi göz ardı edilemez. Hem nöronları koruyabilir hem de öğrenme ve hafıza sürecine yardımcı olabilirler. Beynimizin sağlığını ve canlılığını sağlamak için mikrogliaların sayısını ve fonksiyonunu mümkün olduğu kadar korumalı ve geliştirmeliyiz. Belleği geliştirmemiz gerektiği görülebilir ve Cistanche, hafızayı önemli ölçüde geliştirebilir çünkü aynı zamanda hafıza ve öğrenme için çok önemli olan asetilkolin ve büyüme faktörlerinin seviyelerini arttırmak gibi nörotransmitterlerin dengesini de düzenleyebilir. Ayrıca Cistanche kan akışını iyileştirebilir ve oksijen dağıtımını destekleyebilir, bu da beynin yeterli beslenme ve enerji almasını sağlayarak beyin canlılığını ve dayanıklılığını artırır.

Beyin fonksiyonunu iyileştirmenin yollarını bilin'e tıklayın
Sayıları nispeten az olmasına rağmen, CNS'deki doku enfeksiyonu ve hasarının varlığını izleyerek homeostazın sürdürülmesinde önemli işlevlere sahiptirler.
Homeostatik koşullar altında mikroglia hücreleri hareketsiz bir durumda kalır, ancak sürekli olarak çevrelerini tararlar. Aktive edildiklerinde fagositik aktivitelerini gösterirler ve sitokinler ve kemokinler gibi inflamatuar molekülleri serbest bırakabilirler.
Mikroglia, uyaranlara bağlı olarak M1 (inflamatuar tip) ve M2 alt tipleri (pro-rejeneratif tip) olmak üzere iki fenotip edinebilir ve bu iki karşıt fenotip arasında geçiş yapabilir [140], bu da onların dikkat çekici plastisitesini örneklendirir.
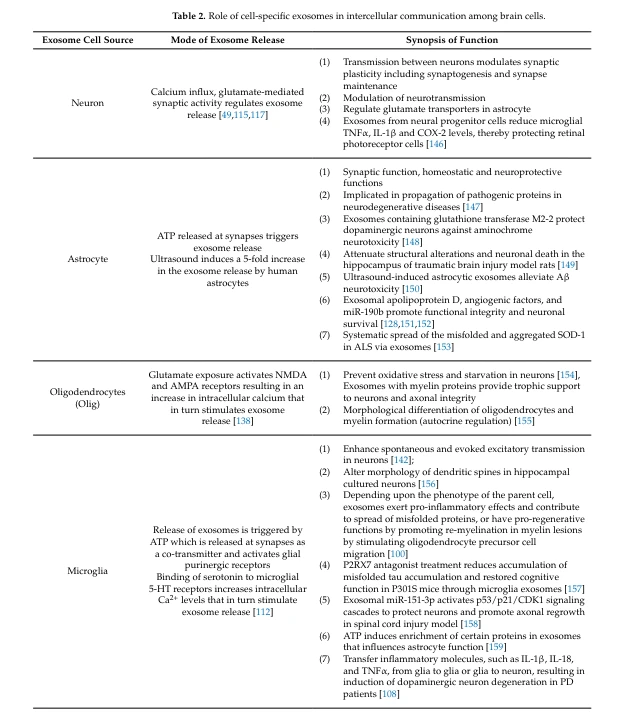
Nöronlara ve diğerglial hücrelere benzer şekilde mikroglia, komşu hücrelerle ve uzaktan hücrelerle iletişim kurmak için eksozomlar salgılar. Mikroglial eksozomların biyoaktif yükü, pro-inflamatuar veya pro-rejeneratif olarak salınan mikroglia'nın fenotipine bağlıdır. Mikroglial eksozomlar anaerobik glikoliz ve laktat üretimi için gerekli olan tüm enzimleri içerir.
Bu nedenle, eksozomlarda paketlenmiş laktatın, sinaptik aktivite sırasında nöronlar için tamamlayıcı bir enerji kaynağı olarak işlev görebileceği öne sürülmektedir [141]. Mikroglial eksozomlar, nöronlarda seramid ve sfingolipid üretimini teşvik ederek sinaptik iletimi düzenler.
Artan sfingolipid metabolizması, mikroglia'nın sinaptik aktiviteyi etkilemesi için yeni bir yol sunarak uyarıcı nörotransmisyonu olumlu yönde etkiler [142]. Enfeksiyon ve/veya yaralanmayla karşı karşıya kalan mikroglial hücreler hızla karmaşık bir inflamatuar tepkiye girer ve M1 fenotipini kazanır.
Artık proinflamatuar bir fenotipe (M1 fenotipi) sahip olan mikroglia, nöroinflamasyonun gelişmesine yardımcı olan eksozomları serbest bırakır. Nöroinflamasyonda mikroglial eksozom tutulumuna ilişkin kanıtlar, lipopolisakkarit (LPS) ile yürütülen bir çalışmadan gelmektedir.
Mikroglia'nın, Gram-negatif bakterilerin önemli bir bileşeni olan LPS'ye maruz kalması, bir proinflamatuar sitokin olan IL-1 ile zenginleştirilmiş eksozomların ve miR-155 ve miR{{4} gibi mikroRNA'ların salınımını artırır. }. MicroRNA 155, bağışıklık sisteminde önemli bir düzenleyici mikroRNA'dır ve inflamatuar hastalıklarda artan seviyeleri tespit edilir [143].
Başka bir çalışmada mikroglial hücreler, N-myc aşağı regüle edilmiş gen 2 (NDRG2) protein seviyelerinin ekspresyonunu artıran LPS ile tedavi edildi. Artan NDRG2 proteini, mikroglia'yı miR-375 ile zenginleştirilmiş eksozomları serbest bırakması için uyardı. miR-375 ile zenginleştirilmiş eksozomların içselleştirilmesi, N2A nöronlarının hücre canlılığını azalttı ve bu eksozomların nörotoksik doğasını gösterir [144].
LPS'ye maruz kalmanın mikroRNA'ları ve eksozomlarda paketlenmiş proteinleri değiştirdiği görülüyor. Doğrulayıcı kanıtlar BV2 hücrelerini içeren bir çalışmadan geldi. C57 Black farelerinin BV2 hücreleri, ölümsüzleştirilmiş mikroglial hücrelerdir. BV2 hücreleri, LPS'ye maruz bırakıldığında, proinflamatuar sitokinler IL-6 ve TNF ile translasyon ve transkripsiyonla ilgili proteinler açısından zengin eksozomlar salgıladılar.
Kütle spektrometresi ile analiz edilen eksozomların proteomik profili, kontrol BV2 hücreleriyle karşılaştırıldığında LPS ile tedavi edilen BV2 hücrelerinden eksozomlarda bulunan 49 benzersiz protein tanımladı.
LPS ile aktifleştirilen mikrogliadan gelen eksozomların 58 proteine sahip olduğunu, kontrol BV2 hücrelerinden gelen eksozomların ise 37 proteine sahip olduğunu belirtmekte fayda var [145]. Yukarıdaki tartışma, mikroglial eksozomların, CNS'de mikroglialin nöroprotektif ve nöroinflamatuar fonksiyonlarını kolaylaştırmada önemli olduğunu göstermektedir.
4. Nörodejeneratif Hastalıklarda Eksozomların Rolü
Birçok nörodejeneratif hastalık, ilerleyici nöral ve glial fonksiyon bozukluğuna yol açan anormal, yanlış katlanmış proteinlerin birikmesiyle ilişkilidir. Genellikle nörodejeneratif hastalıklar beynin ayrı bir bölgesinde fonksiyon bozukluğu ile başlar.
Yanlış katlanmış proteinler hücre dışı boşluğa salındıktan sonra sağlıklı hücrelere aktarılır ve endojen karşılık proteinlerin domino etkisi gibi yanlış katlanmasını tetiklemeye başlar [160].
Bu "enfektif" süreç, patolojinin büyümesine ve hastalığın beynin daha geniş bölgelerine yayılmasına yol açar. Nörodejeneratif hastalıkların bulaşmasında ve ilerlemesinde hücreler arası iletişim önemlidir. Beyindeki tüm hücreler tarafından salınan eksozomlar, nöro-glia iletişiminde tamamlayıcı bir oyuncu haline geldi.
Eksozomların lipitler, RNA'lar ve proteinler gibi biyoaktif kargoları bir hücreden diğerine taşıma ve aktarma yeteneği, onları nörodejenerasyonun aracıları olarak çekici bir aday haline getirir. Aşağıda eksozomların seçici nörodejeneratif hastalıklardaki etkisini tartışıyoruz.

Alzheimer Hastalığı: Alzheimer hastalığı, ilerleyici hafıza ve bilişsel yetenek kaybıyla karakterize edilen nörodejeneratif demansın en yaygın şeklidir.
Alzheimer hastalığının patolojisinin merkezinde, amiloid plakları olarak bilinen hücre dışı -amiloid (A) agregatlarının, tau'nun nörofibriler yumakları ile bir araya gelmesiyle oluşması yer alır. (A) peptidleri, amiloid öncü proteininin (APP) sıralı proteolitik işleminden - ve ile türetilir. -sekretazlar.
APP hücre içi bir protein olduğundan, nörodejeneratif hastalığın patolojik lezyonlarının, yanlış katlanmış proteinin nörondan nörona fiziksel yayılmasını içerdiği yönünde bir hipotez formüle edildi [161].
Bununla birlikte, yanlış katlanmış proteinlerin aktarımına ilişkin mekanizmalar merak uyandırıcı bir soru olarak kaldı. A'nın hücre dışı boşluğa nasıl döküldüğüne dair olası mekanizmalara ışık tutmaya başlayan en eski raporlardan biri Rajendran ve Meslektaşları tarafından yürütülen çalışmadan geldi [162].
APP bölünmesinin yerini araştırırken, erken endozomların bir alt kümesinde APP'nin -sekretaz bölünmesinin meydana geldiğini ve ardından A peptidinin multiveziküler cisimlere trafiğini gözlemlediler.
Eksozom zarıyla ilişkili A peptidinin küçük bir kısmı hücre dışı boşluğa salgılandı. Amiloid plakları içeren eksozomlarda eksozomal işaretleyici proteinler, flotillin-1 ve Alix vardı. Bu nedenle, eksozom membranına bağlı A peptidi, hücre dışı alanda amiloid plak oluşumuna katkıda bulunan yeni bir mekanizmayı temsil edebilir [162].
Bu ilk gözlemden bu yana, eksozomlarda tam uzunlukta APP ve metabolitlerinin çoğu ve APP işlenmesinde yer alan sekretaz proteaz ailesinin birkaç üyesi tespit edildi [163].
A, farklı özelliklere ve fibril oluşumunun ara ürünlerine sahip farklı konformasyonel durumlarda mevcut olabilir. Bunlardan düşük molekül ağırlıklı A ve protofibrillerin özellikle nörotoksik olduğu ve protein toplanması için tohum görevi gördüğü öne sürülmüştür [164,165]. Alzheimer hastalarının ölüm sonrası beyinlerinden izole edilen eksozomların artan A oligomer seviyelerine sahip olduğu gösterilmiştir. Bu eksozomlar, kültürlenmiş nöronlarla inkübe edildiğinde içselleştirildi.
En önemlisi, A oligomerlerini diğer nöronlara yayarak sitotoksisiteye neden olabildiler [166]. İlk gözlemler, APP içeren eksozomların in vitro [167] ve in vivo [168] normal nöronların birincil kültürleriyle inkübe edilmesiyle doğrulandı.
Soru şu: A veya A oligomerleri neden eksozomlara paketleniyor? Nöronlar A veya A oligomerlerinin toksik doğasını algılıyorlar ve dolayısıyla retikülositlerdeki transferrin reseptörlerine benzer şekilde hücre içi olarak mevcut A veya A oligomerlerinden toksik proteinleri temizlemeye çalışıyorlar mı [7,8]? MVB/eksozomlara ayrıştırmak için mono-orbitinasyon gereklidir. Bu, A'nın MVB/eksozomlara ayrılmak üzere her yerde yaygınlaşmaya uğrayıp uğramadığı konusunda ikinci bir soruyu gündeme getiriyor. Amiloid öncü proteininin (APP) C- noktasında beş lizin kalıntısı (Lys-724, Lys-725, Lys-726, Lys-751 veLys-763) bulunur. terminal ucu [169].
Bu kalıntılar, A peptidi oluşturmak üzere APP işlenmesi üzerindeki etkiyi incelemek için tek tek veya kombinasyon halinde mutasyona uğratılmıştır. F-kutusu ve E3 ubikuitin ligazının bir bileşeni olan lösin bakımından zengin tekrar proteini2 (FBL2) aracılığıyla APP'nin Lys-726'de ubiquitinasyonu, A neslini azalttı [170]. Öte yandan, Lys-763'teki APP'nin her yerde bulunması, Golgi kompleksinde APP'yi ayırdı ve APP olgunlaşmasını önledi [171].
APP'nin (C99) C-terminal fragmanındaki beş lizin tortusunun tamamının arginine ikame edilmesi yoluyla ubikuitinasyonun inhibisyonu, APP'nin etkili bir şekilde bozulmasını ve Golgi benzeri görünüme sahip yapılarda protein birikmesini önledi. Bu, endoplazmik retikulumla ilişkili bozunmadaki bir eksikliğe atfedildi. C99, A'yı üretmek için -sekretaz tarafından bölünmeye uğrar [172].
Üç lizin kalıntısının (Lys-724, Lys-725 ve Lys-726) mutasyonu aynı anda proteinin, MVB'lerin intralüminal kesecikleri içine içselleştirilmesi yerine endozomların sınırlayıcı zarında tutulmasına neden oldu [173 ] Beş lizin kalıntısının tümü, her yerde çoğalmayı önlemek için mutasyona uğradığında, protein, MVB/eksozomlara verimli bir şekilde ayrılmadı ve A40'ta seçici bir artış gözlemlendi [174].
Bu bulgu, serebral amiloid anjiyopatideki amiloid birikintilerinde A40'ın varlığıyla karşılaştırılabilir [175]. APP'nin her yerde bulunmasının proteini MVB/eksozomlara yönlendirebileceği açık olsa da, APP, A veya A oligomerlerinin MVB/eksozomları hedeflemeleri için mono-ornatılmış olduklarını ve bunların her yerde bulunmadıklarını kanıtlamak için nöronal kültürler veya in vivo modeller kullanılarak doğrudan kanıt gereklidir. forendoplazmik retikulumla ilişkili bozulmanın (ERAD) hedeflenmesi.
Alzheimer hastalığının bir başka patolojik özelliği, nörofibriler yumaklarda (NFT) anormal şekilde fosforile edilmiş tau proteinidir. Tau, mikrotübülleri stabilize ettiği bilinen sitoplazmik bir proteindir. Giderek artan kanıtlar, patolojik tau proteininin hücreler arasında yayılarak doğal tau'yu toplayarak kümeler oluşturabildiğini gösteriyor. Daha yeni veriler eksozomların tau proteininin taşıyıcısı olduğunu göstermiştir [176,177].
Hücre incelemeleri, tau patolojisine karışan eksozomların mikroglial hücrelerden kaynaklandığını ileri sürdü. Mikrogliadan gelen eksozomlar tauproteini nöronlara aktardı. Deneysel kanıtlar elde etmek için, eksozom biyogenezinin inhibe edildiği veya mikroglial hücrelerin tau'dan yoksun bırakıldığı çalışmalar gerçekleştirildi. Bu çalışmalardan elde edilen sonuçlar, normal nöronlarda tau birikiminin azaldığını göstermiştir [178].
Yazarlar, mikroglia'nın tau içeren sitopatik nöronları fagositozla tau'yu eksozomlar yoluyla geri dönüştürdüğünü ve böylece Alzheimer hastalığının yayılmasında eksozomları suçladığını öne sürdüler. Sağlıklı beyinlerde, tau'nun fosforilasyonundan ve de-fosforilasyonundan sırasıyla çeşitli protein kinaz ve fosfatazlar sorumludur.
Bu önemli enzimlerin düzensizliği, AD'de tau'nun anormal fosforilasyon modellerine yol açabilir. Yakın zamanda yapılan bir çalışmada eksozomal protein yükü Nano-LC-MS/MS ile karşılaştırıldı. Eksozomlar, presenilin 1'in (mPS1) AD ailesel A246E mutant formunu ifade eden insan kaynaklı pluripotent kök hücre (iPSC) nöronlarından ve normal insan iPSC nöronlarından saflaştırıldı.
Her iki eksozom grubunda toplam 1117 protein tanımlandı ve 733 protein, her iki eksozom popülasyonunda ortaktı. mPS1 ile diferansiyel olarak ilişkili proteinler arasında, fosfatazlar ve protein kinazlar ve bunların mPS1 eksozomlarıyla ilişkili protein seviyeleri, kontrol nöronlarıyla karşılaştırıldığında önemli ölçüde düşüktü [179].

Ayrıca bu eksozomlar, kontrol eksozomlarında bulunmayan farklı proteinler içeriyordu. Spesifik olarak, farklı proteinler, hücre dışı matriks yapısında ve fonksiyonunda yer alan proteinler olup, AD'de tau patolojisinin yayılması için başka bir mekanizmayı akla getirmektedir [179]. Alzheimer hastalığındaki araştırmaların ana vurgusu nöronlar üzerinde olmuştur.
Ancak çalışmalar, astroglia atrofisinin nörodejeneratif sürecin erken aşamalarında meydana geldiğini ortaya çıkardı. Körelmiş astroglialardan gelen nöronal desteğin eksikliği, sinaptik bağlantının bozulmasına, sinapsların kaybına ve nörotransmiter homeostazisinin dengesizliğine neden olur. Alzheimer hastalığının daha sonraki bir aşamasında, astrositler ve mikroglia aktive olur ve inflamatuar moleküller ve nörotoksik maddeler salgılar. Nörotoksik kimyasallar nöroinflamasyona ve nöron ölümüne yol açarak beyinde atrofiye neden olur [180].
Alzheimer hastalığının erken evrelerinde, Toll benzeri reseptör 4 yoluyla aktive edilen mikroglial hücreler nöroprotektif bir rol kazanır ve A'yı temizler [181]. Saflaştırılmış polimorf beta-amiloid protein birikintilerinin ve eksozomlarla ilişkili A'nın fagositozu ve bozulması, kültürlenmiş mikroglial hücreler kullanılarak doğrulandı [182,183]. İlginç bir şekilde, astrositler mikroglial hücrelerin nöroprotektif fonksiyonlarını hafifletiyor gibi görünüyor. Media ve meslektaşları, A peptidi ile inkübasyonun glial hücreleri aktive ettiğini ve ardından inflamasyonla sonuçlandığını fark ettiler [184].
Astrositlerle birlikte kültürleme veya astrosit koşullu ortamla inhibe edilmiş mikroglia fagositik eyleminde kültürleme. Fibroblastlardan gelen şartlandırılmış ortam mikroglial fagositik aktiviteyi etkilemediğinden mikroglial fagositozun inhibisyonu oldukça spesifikti. Bu çalışmalardan, astrositlerin, mikroglia'nın fagositik aktivitesine müdahale eden çözünür faktörler formunda sinyaller saldığı açıktır [182]. Mikroglia'nın kronik uyarılmasının ardından astrositlerin ve mikroglia'nın rolleri tersine çevrilebilir.
Birçok bağımsız çalışma, nöronlar, astrositler ve mikroglia tarafından salınan eksozomların temizleyici olarak hareket ettiği ve mikroglia tarafından bozunma için içselleştirilen A toplanmasını teşvik etmek üzere tohumsuz çözünür A'yı emdiği sonucuna varmıştır [185-187]. Beyin hücreleri arasında yakından izlenen hücreler arası iletişim göz önüne alındığında bu gözlem şaşırtıcı değildir (Bölüm 3'te kısaca tartışılmıştır).
Daha önce de belirtildiği gibi A agregatları, glikosfingolipidler, seramid ve/veya eksozomların yüzeyinde ve nöronlarda bulunan GPI bağlantılı protein PrPc (hücresel prionprotein) ile etkileşime girer [185,187]. Nöronal eksozom bağlama A, yüzeylerinde bol miktarda bulunan gangliosid GM1 ve siyalile glikosfingolipidler, özellikle de trisialogangliosid GT1 nedeniyle, astrositik veya mikroglial eksozomlarla karşılaştırıldığında daha verimli bir şekilde toplanır [188-190]. Astrositik eksozomlar sfingolipid seramid ile zenginleştirilmiştir [187].
Astrositik eksozomlara bağlanan A kümeleri, nöronlar tarafından içselleştirilir ve mitokondriye yönlendirilerek mitokondriyal kümelenmeye neden olur ve aynı anda fisyon proteini Drp-1 seviyelerini arttırır. Mitokondrinin dış zarında eksozomal A, ADP/ATP taşıyıcısı, voltaja bağımlı anyon kanalı 1 ile bir kompleks oluşturur ve kaspazları aktive eder.
Aktif kaspazlar, nörit parçalanmasını ve sonuçta nöronal hücre ölümünü indükler [191]. Alzheimer hastalığında proteinler, lipidler ve RNA arasındaki olası dinamik etkileşimleri daha iyi anlamak için, yüksek verimli teknikler yakın zamanda uygulanmıştır. Cohn ve meslektaşları mikroglial eksozomları analiz etmek için 'omik' bütünleştirici bir yaklaşım benimsediler [192].
Bu çalışmada yazarlar, ileri evre Alzheimer hastalarının parietal korteksinden mikroglial eksozomları izole ettiler. Proteomik, transkriptomik ve lipidomik analizleri birleştiren bütünleştirici bir analiz gerçekleştirdiler. Proteinlerin, proteoliz [193] yoluyla proteinden salınan peptitlerin analizi ile karakterize edildiği aşağıdan yukarıya bir protein analizi anlamına gelen av tüfeği proteomiklerini, hedeflenen lipidomikleri ve NanoStringnCounter teknolojisini, bir multipleks nükleik asit hibridizasyon teknolojisini [194] kullandılar.
Bu kombinatoryal yaklaşımı kullanan araştırma grubu, homeostatik mikroglia belirteçleri P2RY12 ve TMEM119'da önemli bir azalma ve hastalıkla ilişkili mikroglia belirteçleri FTH1 ve TREM2 düzeylerinde artış gösterdi. Ek olarak, AD'li beyinden türetilen mikroglial eksozomlardaki tau protein seviyeleri önemli ölçüde daha yüksekti; bu da mikrogliadan türetilen eksozomların tau patolojisinin yayılmasında önemli göründüğünü ortaya koyuyor.
Sinaptik ve nörona özgü proteinler de AD'li beyinden türetilen mikroglial eksozomlarda farklı şekilde zenginleştirildi. Ancak yazarlar, sinaptik ve miyeline özgü proteinlerin mikroglial eksozomlara girmeden önce fagosite edildiğini öne sürdüler. Lipidomik analizler, proinflamatuar bir fenotipi ve asil zincirinin yeniden şekillenmesinde potansiyel bir kusuru ortaya çıkardı.
Son olarak, bağışıklık ve hücresel yaşlanma sinyal yollarıyla ilişkili miRNA'lar, AD beyinden türetilen mikroglial eksozomlarda arttı [192]. Bu veriler, eksozomların moleküler bileşimindeki önemli bir değişikliğin, mikrogliadaki hastalıklı durumla tutarlı değişiklikleri yansıttığını göstermektedir. Eksozomların Alzheimer hastalığında rol oynadığını gösteren büyük miktarda veri topladık.
Önemli bir soru, eksozomların yanlış katlanmış proteinlerin temizlenmesini ne ölçüde desteklediği veya önlediğidir? Ek olarak, farklı beyin hücrelerinden salınan eksozomların yaptığı katkıların aydınlatılması, hastalık bulaşmasına ilişkin anlayışımızı daha da geliştirecektir.
Parkinson Hastalığı: Parkinson hastalığı yaşa bağlı en yaygın beyin bozukluklarından biridir; temel olarak istirahatte titreme, sertlik, bradikinezi ve motor dengesizlik gibi tipik semptomlarla birlikte bir hareket bozukluğu olarak kabul edilir [195].
Ayrıca bu hastalığa bilişsel gerileme, depresyon ve psikoz da eşlik etmektedir [196]. Patolojik olarak, nigrostriatal dopaminerjik nöronların dejenerasyonu ve hayatta kalan nöronlarda yanlış katlanmış -sinüklein proteini içeren Lewybody'lerin varlığı ile karakterize edilir. Alfa-sinükleinler, beyin omurilik sıvısı ve plazma dahil olmak üzere birçok vücut sıvısında tespit edilmiştir [197,198].
Alfa-sinüklein, -sinükleini eksprese eden hücrelerin in vitro kültürlenmesi durumunda bir kültür ortamında bulunur [199]. -Sinükleinin, hücre dışı bir sıralama sinyalinin yokluğunda hücre dışı olarak tespit edildiği göz önüne alındığında, bu protein hücre dışı boşluğa nasıl ulaşır? Birçok araştırmacı, -sinüklein salgılanmasında eksozomların terolü ve patolojisi de dahil olmak üzere -sinüklein salgılanmasının mekanizmasını inceledi.
Eksozomların gerçekten de patogenezde rol oynayabileceğine dair ilk gösterge, -sinükleini eksprese eden SH-SY5Y hücrelerinin kullanıldığı bir in vitro çalışmadan geldi. Yazarlar, -sinükleinin eksozomlar aracılığıyla hücre dışı salgılanmasını kalsiyuma bağımlı bir şekilde göstermiş ve bunların Parkinson hastalığı patolojisinin yayılmasında rol oynadığını öne sürmüştür [200].
Bu çalışmanın ardından, Parkinson hastalarının farklı hücrelerinden, beyin omurilik sıvısından ve plazmasından -sinüklein içeren eksozomlar tanımlanmıştır [201-203]. Ancak farklı çalışmalarda bildirilen birçok değişkenlik vardır [204]. İlginç bir şekilde, eksozomlardaki -sinüklein miktarı, serbest -sinüklein tespit edilen beyin omurilik sıvısı veya şartlandırılmış ortamla karşılaştırıldığında nispeten düşüktür.
Yakından yapılan bir inceleme, -sinüklein eksprese eden nöroglioma hücrelerinin -sinüklein oligomerlerini serbest bırakmak için iki yol kullandığını ortaya çıkardı: biri eksozomlardan ve ikinci olarak serbest -sinükleinin oligomerler olarak doğrudan salınmasından oluşur [205].
Eksozomlar düşük düzeyde -sinüklein içermesine rağmen, eksozomlar toksik etkilerini göstermede serbest -sinükleinden daha etkilidir. Eksozomlarda bulunan alfa-sinüklein oligomerleri, serbest sinüklein oligomerlerine kıyasla insan H4 nöroglioma hücreleri tarafından daha verimli bir şekilde içselleştirilmiştir [205].
Bu çalışmanın devamı olarak, bu araştırmacı grubu, Parkinson hastalarının beyin omurilik sıvısından saflaştırılan eksozomları kullanarak benzer sonuçlar bildirdi. Serbest -sinüklein oligomerleriyle karşılaştırıldığında insanH4 nöroglioma hücre kültürlerinde eksozomal oligomerize -sinükleinin etkili alımı gözlendi [206].
Serbest sinükleinin hücre dışı boşluğa veya sıvıya salgılandığına ilişkin kanıtlar, vakuolar protein sıralama 4'ün (VPS4) multisiküler cisimlere -sinüklein yüklenmesindeki rolünü inceleyen bir çalışmadan geldi. Normalde VPS4, proteinlerin çoklu kesecikli cisimlere ayrılmasını düzenler. Parkinson hastalığında VPS4, -sinükleini bozunması için lizozomlara ve -sinükleinin hücre dışı salgılanması için endozomların geri dönüşümüne yönlendirir [207].
Lizozomal fonksiyon engellendiğinde, eksozomlarda paketlenmiş -sinüklein salınımının, kültürlenmiş SH-SY5Y hücrelerini arttırdığı görülmüştür [208]. -Sinükleinin endozomal fraksiyonu, lizozomal bozukluk koşullarında bozulmadan kurtulur [209].

For more information:1950477648nn@gmail.com


