Cistanche Salsa'dan Tubulosid B, PC12 Nöronal Hücrelerini 1-Metil-4-fenilpiridinyum İyonunun İndüklediği Apoptoz ve Oksidatif Stresten Kurtarıyor
Mar 06, 2022
İletişim: Audrey Hu Whatsapp/hp: 0086 13880143964 E-posta:audrey.hu@wecistanche.com
Guoqing Zheng, Xiaoping Pu, Li Lei, Pengfei Tu, Changling Li
Soyut:
sinir koruyucutubulosit B'nin cistanche üzerindeki etkileriÇinlilerden izole edilen feniletanoidlerden biribitkisel ilaç Cistanche salsa, PC12 nöron hücrelerinde 1-metil-4-fenilpiridinyum iyonu (MPP artı ) ile indüklenen apoptoz ve oksidatif stres üzerinde araştırıldı. MPP + ile tedavi edilen PC12 hücreleri, MTF tahlili, akış sitometrisi ve DNA agaroz jel elektroforezi ile belirlendiği üzere apoptotik ölüme uğradı; reaktif oksijen türlerinin (ROS) hücre içi birikimi lazer taramalı konfokal mikroskopi (LSCM) ile DCFH-DA boyama ile ölçülmüştür. Tuhuloside B ile eş zamanlı tedavi, MPP+ ile indüklenen sitotoksisiteyi, DNA fragmantasyonunu ve ROS'un hücre içi birikimini belirgin şekilde azalttı. Bu sonuçlar, tubulosit B'nin MPP'nin neden olduğu apoptozu ve oksidatif stresi önlediğini kuvvetle göstermektedir. Tubuloside B bir olarak uygulanabilir.antiparkinson hastalığıajanlar.
giriiş
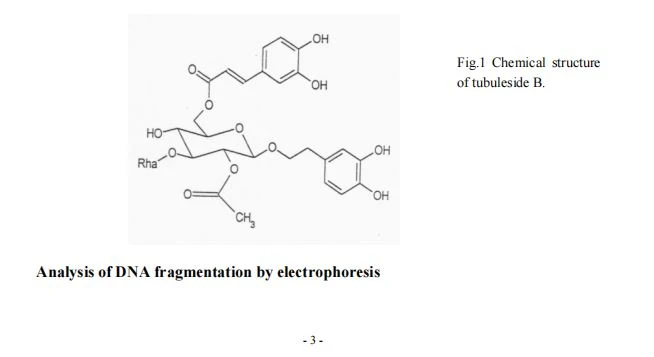
Patolojik olarak, sporadik Parkinson hastalığı (PD) tipik olarak katekolaminerjik nöronların, özellikle de substantia nigra pars compacta'nın (SNc) dopaminerjik nöronlarının kaybı ve karakteristik intranörona| Etkilenen beyin bölgelerinde Lewy cisimcikleri adı verilen kapanımlar. PD'nin patogenezinde yer alan çeşitli faktörlere rağmen, PD'nin başlaması ve ilerlemesi ile ilgili mekanizmalar belirsizliğini koruyor, PD'nin nedeni hala yanıtlanmış olsa da, birkaç kanıt dizisi oksidatif stresin dahil olduğunu kuvvetle öneriyor ve sonunda ölüme yol açıyor. aşırı serbest radikal üretimi ile nöronal ölüm veya apoptoza neden olur [1 ], [2], [3]. Nigral dopaminerjik sistemin yüksek düzeyde serbest radikal üretebilmesi ve nispeten düşük düzeyde antioksidan savunma sistemine sahip olması bu hipotezi daha da desteklemektedir. Hem in vivo hem de in vitro çalışmalar, dopaminerjik nöronlar üzerinde l-metil-4-fenil-l,2,3,6-tetrahidropiridinin (MPTP) aktif bir metaboliti olan MPP+'nin oksidatif stres aracılı nörotoksisitesini göstermiştir [4 ], [5]. PD gibi nörodejeneratif bozuklukların yakın nedeni olarak oksidatif stres tarafından aşırı üretilen serbest radikallerin katılımı, antioksidanlar için çok önemli bir rol olduğunu düşündürmektedir. Tubuloside B (Şekil l), köklerinden izole edilen feniletanoid bileşiklerden biriydi.salata sosu. Önceki çalışmalar, tubulosit B dahil olmak üzere birçok feniletanoidin güçlü bir serbest radikal süpürme aktivitesi gösterdiğini bulmuştu[6], [7].
Bu bulguları göz önünde bulundurarak, bu çalışmada tubu]nside B'nin MPP plus ile indüklenen nörotoksisite üzerindeki etkisini in vitro olarak, nöronal fonksiyonu incelemek için yıllardır başarıyla kullanılan sempatik sinir feokromositoma hücre hattı PC12'yi kullanarak araştırdık [8], [9].

antiparkinson hastalığı:cistanche
Malzemeler ve yöntemler
Malzemeler
Tübülozit Bsalata sosuDr. Li Lei (Doğal Ürünler Departmanı, Farmasötik Bilimler Okulu, Pekin Üniversitesi, Pekin, Çin) tarafından sağlanmıştır. Bileşiğin saflığı, HPLC analizine göre yüzde 98'den fazlaydı. Dulbecco'nun modifiye Eagle's ortamı (DMEM), at serumu ve fetal buzağı serumu, GIBCO BRL, 1-metil~-fenilpiridinyum iyonu (MPP plus), poli-L-lisin, 3-(4,)'den satın alındı. 5 -dimetiltiazol-2 -il)-2,5- difeniltetrazolyum bromür (MTT), propidyum iyodür (PI), RNaz A, proteinaz K ve 2;7'-diklorofloresan diasetat (DCFH-DA) Sigma'dan satın alındı.
Hücre kültürü
PCI2 hücreleri, yüzde 10 at serumu, yüzde 5 cenin buzağı serumu, 100U/ml penisilin ve 100ug/ml streptomisin ile desteklenmiş DMEM'de tutuldu. Hücreler, 37 derecede yüzde 95 hava ve yüzde 5 CO2 ile havalandırılan nemlendirilmiş bir kuluçka makinesinde kültürlendi. Tüm deneyler, hücreler ekildikten 24-48 saat sonra gerçekleştirildi. Hücreler, alt-birleşme aşamasına yaklaştığında yüzde 0.25 tripsinizasyon ile rutin olarak hasat edildi ve 1: 8'de bölünmüş 25 cm'lik kültür şişelerine kaplandı.
Hücre canlılığının analizi
Hücre canlılığı, daha önce tarif edildiği gibi modifiye edilmiş bir MTT tahlili kullanılarak belirlendi [10], Kısaca, PC12 hücreleri 96-kuyucuklu plakalara oyuk başına 1 x 10⁴ hücre yoğunlukta ekildi. Kültürler 48 saat büyütüldü ve daha sonra ortam, çeşitli konsantrasyonlarda tubulnside B veya MPP+ içeren ortamla değiştirildi. 48 saat ve 72 saate kadar inkübasyondan sonra, 96-kuyucuklu plakalara MTr solüsyonu (DMEM içinde 5 mg/ml) ilave edildi ve hücrelerin 4 saat süreyle 37 derecede inkübe edilmesi sağlandı. Ortam çıkarıldıktan sonra hücre ve boya kristalleri, 200 uL DMSO eklenerek çözündürüldü ve absorpsiyon, model 550 mikroplaka okuyucu (Bio-Rad) ile 570 nm'de (referans olarak 540 nm) ölçüldü. Hücre canlılığı, tripan mavisi dışlama yöntemi kullanılarak da analiz edildi. Hücreler toplandı, hafifçe topaklandı ve 3 yağmur için yüzde 0,6 tripan mavisi çözeltisiyle boyandı. Renkli olmayan hücrelerin yüzdesi daha sonra rastgele seçilen on mikroskop alanında değerlendirildi. Pozitif ilaç olarak 100 ng/ml epidermal büyüme faktörü (EGF) kullanıldı.
Akış sitometrisi ile apoptoz tespiti
Apoptotik hücreler, propidium iyodür (PI) [11 ] kullanılarak akış sitometrisi ile saptandı. Kısaca, test maddeleriyle inkübe edilen yaklaşık 1 x 10⁶ hücre, santrifüjleme ile toplandı ve bir kez PBS ile yıkandı. Hücreler 24 saat - 20 derecede yüzde 70 etanol ile sabitlendi ve bir kez PBS ile yıkandı. Hücreler daha sonra 0,5 mg/ml RNase ve 0,5 mg/ml PI içeren 300uL PBS içinde yeniden süspanse edildi. Karanlıkta 30 dakika daha inkübasyondan sonra, bir FACScan (Becton Dickinson, Heidelberg, Almanya) ile akış sitometrisi yapıldı.
Moore'un sadece parçalanmış DNA'yı izole eden protokolünü [12] uyguladık ve deneyler, her bir test grubundan eşit sayıda kültür kullanılarak normalleştirildi. Kısaca, muamele edilen numunelerin her birinden 3 x 10⁶ nöron, Hank'in dengeli tuz çözeltisinde (10 dakika boyunca 1000g) yıkandı ve tüpün altında oluşan peletler homojenleştirildi. 1 ml lizis tamponu ile (pH 7.4.5'te 10 mM Tris, 5 mM EDTA, yüzde 1 Triton X-100) 20 dakika buz üzerinde. 4 derecede 20 yağmur için 11,000 g'de santrifüjlemeden sonra, parçalanmış DNA içeren süpernatanlar çıkarıldı ve 37 derecede 1 saat boyunca 20 mg/ml RNaz A ve 56 derecede 0.1 mg/ml proteinaz K ile sindirildi. ek 1 saat için. Parçalanmış DNA, fenol ve kloroform kullanılarak özümlendi ve 10°C'de 000g'de 1 yağmur için 4°C'de santrifüjlendi. Sulu faz, yeni bir Eppendorf tüpüne aktarıldı, 2 hacim buz gibi soğuk etanol ile karıştırıldı ve daha sonra DNA'yı çökeltmek için en az 1 saat -20 dereceye yerleştirilir. 15°C'de 000g, 4 derecede 20 dakika santrifüj edildikten sonra, süpernatantlar çıkarıldı ve DNA topakları bir kez yüzde 80 etanol ile yıkandı (15.000 g,4 derecede 15 dakika için), havada kurutuldu ve 20μL TE içinde çözüldü. pH 7.6'da tampon. Numunenin tamamı daha sonra 85 V'de 1 saat boyunca yüzde 1.5'lik bir agaroz jel üzerinde elektroforezlendi. Jel incelendi ve bir Ultra Violet Ürünler Jel Dokümantasyon Sistemi (GELDOC-2000, Bio-Rad, ABD) ile fotoğraflandı.
Hücre içi ROS oluşumu için ölçüm
Hücre içi peroksitlerin oluşumu, hücreler içinde endojen esterazlar tarafından iyonize serbest aside, 2 ;7"-diklorofloresein. 2",7-Diklorofiuoresin, hidroantioksidanlar tarafından floresan 2"7"-diklorofloreseine (DCF) oksitlenebilir. Hücreler 10 µM DCFH-DA ile 30 dakika 37 derecede inkübe edildi. Kültürler, Hank'in dengeli tuz çözeltisi ile iki kez yıkandı ve aynı ortamda görüntülendi. Görüntüleme bir konfokal tarama lazer mikroskobu kullanılarak yapıldı, DCF 488 nm'de uyarıldı ve emisyon filtresi 510 nm bariyer filtresiydi, Geçerli bir karşılaştırma sağlamak için tüm gözlemler için aynı edinim parametreleri kullanıldı. Hücrelerin ortasındaki optimal dikey pozisyon ayarlandı ve ardından alan hızla tarandı. 488 nm'lik eksitasyon dalga boyundaki aydınlatma, bu boyanın oksidasyonu nedeniyle artan floresansa neden olduğundan, her alan tam olarak aynı süre Işığa maruz bırakıldı. Uyarılmamış hücrelerden alınan temel değerler, tübülosit B'nin varlığında veya yokluğunda MPP ile tedavi edilen hücrelerle karşılaştırmak için kontrol değerleri olarak kullanıldı. Taramadan sonra, mikroskop alanı başına 15-20 nöronal hücre gövdesindeki ortalama nispi floresan yoğunluğu, dörtte nicelendirildi. tedavi durumu başına ayrı kültürler.

cistanche
istatistiksel analiz
Elde edilen tüm değerler ortalama ±SD olarak ifade edildi. Gruplar arasındaki farklılıkların istatistiksel olarak anlamlılığı Student's t-testi ile belirlendi; 0.05'ten küçük hesaplanan p değerleri istatistiksel olarak anlamlı kabul edildi.
Sonuçlar
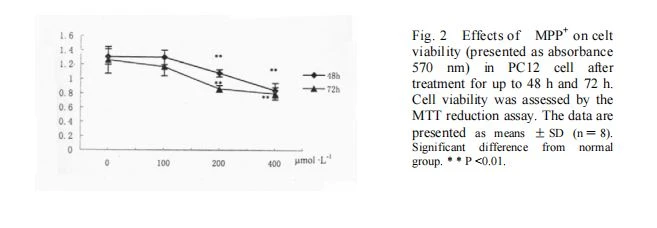
Şekil 2'de gösterildiği gibi, MPP plus, PCI2 hücrelerinin canlılığında doza bağlı bir azalma üretti. Buna karşılık, iyi bilinen bir nörotrofik faktör olan EGF, 100 ng/mL'de hücre canlılığının önemli ölçüde korunmasını sağladı MPP+ kaynaklı sitotoksik etkiler de tübülozit B (5, 10, 50 veya 100 ug-ml-1) varlığında zayıflatıldı. ), referans ilaçtan daha az etkili olmasına rağmen (Şekil 3). Tubulosid B bu konsantrasyonlarda doza bağlı bir şekilde sitoprotektif etkiler sergiledi ve tek başına bileşik herhangi bir belirgin sitotoksisiteye neden olmadı (veriler gösterilmemiştir). 200 µM MPP plus ile 48 saat boyunca işleme tabi tutulan PCI 2 hücrelerinden alınan DNA ekstraktının jel elektroforezi, DNA merdivenlenmesi gösterdi. apoptozun klasik bir özelliği olan tubulosit B, 10 ve 100μ g·ml-1DNaladder'ın azaltılmış formasyonu(Şekil 4).Şekil 5, PC12 hücrelerinde MPP+ tarafından indüklenen apoptotik hücre ölümünün akış sitometrik analizinin tipik histogramlarını gösterir. tübülozid varlığında veya yokluğunda B.Hücre döngüsü profilinin PI ile nicelendirilmesi, apoptotik DNA parçalanmasının göstergesi olan subdiploid özelliklere (M1 bölgesi) sahip hücre sayısını ortaya çıkardı. Muamele edilmemiş hücrelerde, apoptotik subdiploid fraksiyon, toplam 10000 hücrenin 5.94%'sine kadar minimaldi (Şekil 5 A). MPP+'ye 48 saat maruz kaldıktan sonra, apoptoz yüzdesi 43.02;j;(Şekil 5 B).'ye yükseldi. Hücre kültürüne eklendiğinde, tubulosid B, MPP'nin indüklediği apoptozu doza bağlı bir şekilde inhibe etti. 10 ug·ml-1konsantrasyonda, tubulosit B tarafından koruma istatistiksel olarak anlamlı değildi, ancak 50 ve 1 00ug·ml-1'de sırasıyla 45%ve 63%düşüş, hayatta kalan hücrelerin yüzdesinde bir artışla sonuçlanan gözlemlendi(Şekil 5D, E).
Hücre içi ROS birikimi, DCFH-DA boyası ile boyandıktan sonra hücre içinde 48 saat boyunca 200 uM MPP+ ile muamele edilmiş DA.PC12 hücrelerinin kullanımıyla tespit edilebilir (Şekil.6). Tubulosid B ile eş zamanlı tedavi (10 ve 100 ug.ml dozlarında) MPP+一 kaynaklı ROS üretimini inhibe etti (düşük yüzde sırasıyla 24.52% ve 55.63% idi).
Tartışma
PD'nin patogenezi, güçlü oksidatif stres, azaltılmış antioksidan seviyeleri ve mitokondriyal kusurları içerir. hepsinin çeşitli hücresel sistemlerde apoptozu indüklediği bilinmektedir. Özellikle, serbest radikallerin nöronlarda aktif hücre ölümünü tetiklediği gösterilmiştir[14]. MPTP, insanlarda nigrostriatal dopaminerjik nöronların seçici dejenerasyonuna neden olan geri dönüşü olmayan ve şiddetli parkinson benzeri bir sendrom üretir. Bu nörotoksin, PD hayvan modellerini oluşturmak için kullanılmıştır[15].MPTP, monoamin oksidaz B tarafından mitokondride biriken MPP+'ye dönüştürülür. mitokondriyal kompleks I'i ve o mitokondriyal günleri engellediği yer. fonksiyon apoptoza neden olur[16].Bu nedenle, MPP artı 一dopaminerjik nöronlarda indüklenen nörotoksisite, nöroprotektif ajanların taranması için bir etiyolojik PD modeli olarak yaygın olarak kullanılmıştır.
Bu çalışmada, PC12 hücrelerinde oksidatif stres yoluyla MPP plus ile indüklenen hücre ölümünün tubulosit B tarafından azaltıldığını gösterdik. Ayrıca, tubulosit B'nin ayrıca MPP plus ile indüklenen DNA merdivenlenmesine karşı doza bağlı bir şekilde korunduğunu gösterdik. ve DNA jel elektroforezi ve akış sitometrik analizi kullanılarak ölçüldüğü üzere apoptoz. Ayrıca, daha yüksek konsantrasyonlarda tübülozit B ile eşzamanlı tedavi, MPP'nin neden olduğu ROS üretimini inhibe etti. Bu nedenle, tubulosit B, çok işlevli nöroprotektif etkiler göstermiştir. Tubulozid B'nin hareketlerinde ayrı ayrı veya birlikte çeşitli mekanizmalar rol oynayabilir. Antioksidan etki, tübülozit B aracılı nöroproteksiyon için olası bir mekanizmadır. Xiong Q, tübülozit B'nin 1,1-difenil-2-pikrilhidrazil radikali ve ksantin]ksantin oksidaz tarafından üretilen süperoksit anyon radikali [6] üzerinde güçlü bir serbest radikal süpürme aktivitesi gösterdiğini buldu.
Son zamanlarda birkaç feniletanoidin serbest radikal temizleme özelliklerine sahip olduğu ve oksidatif stres kaynaklı toksik yaralanmaları koruduğu rapor edilmiştir. Hidrojen peroksit, süperoksit anyonu ve hidroksil radikali gibi MPP plus tarafından üretilen ROS, biyolojik moleküllere kolayca zarar verir ve bu da nihayetinde apoptotik veya nekrotik hücre ölümüne yol açabilir. Bu nedenle, tubulosit B, ROS'a karşı doğrudan süpürücü etkilere sahip olabilir. Verilerimiz, tübülozit B'nin ROS birikimini baskılamak için etki ettiği yeri tam olarak belirlemese de, nöroprotektif mekanizmanın antioksidan yollarının uyarılmasını içerdiğini öne sürüyorlar. Tubulosid B'nin moleküler yapısı üzerine yapılan bir araştırma, serbest radikalleri temizlemek için güçlü bir kapasiteye sahip olduğunu da gösterir (kişisel iletişim).
Diğer mekanizmalar da ilgili olabilir. Örneğin, tübülozit B, mitokondriyal geçirgenlik geçiş gözeneklerinin açılmasını ve işlev bozukluğunu engelleyerek MPP+'nin toksisitesine karşı koyma kapasitesine sahip olabilir. Ayrıca tubulosit B'nin nöronal hücreler üzerinde doğrudan büyümeyi destekleyici bir etkisinin olup olmadığı da dikkate alınmalıdır. Tubulosid B'nin nöroprotektif etkisinin kesin mekanizması belirsizliğini koruyor. Nöroprotektif etkisinin tam resmini aydınlatmak için ek çalışmalara ihtiyaç vardır.
Sonuç olarak, Cistanche salsa özünden elde edilen tubuloside B, MPP artı kaynaklı apoptoz ve oksidatif stres üzerinde belirgin koruyucu etkilere sahiptir. MPP + toksisitesine karşı nöroprotektif etkileri önemli olabilir ve PD'nin önlenmesi ve tedavisinde terapötik potansiyele sahip olabileceğini düşündürür.

PD tedavisi: cistanche
Referanslar
7. Xiong Q, Tezuka Y, Kaneko 1", Li H, Tran LQ Hase K, Namba T, Kadota S. Aktif makrofajlarda feniletanoidler tarafından nitrik oksit inhibisyonu. Eur J Pharmaco12000; 400:137 –44
8. Greene LA, Tischler AS. Sinir büyüme faktörüne yanıt veren adrenal feokromositoma hücrelerinin noradrenerjik klonal hattının oluşturulması. Proc Nat Acad Sci 1976; 73:2424-8
9. Yao Z, Drieu K, Szweda LI, Papadopoulos V. Serbest radikaller ve lipid peroksidasyonu -amiloid kaynaklı nöronal hücre ölümüne aracılık etmez. Beyin Res 1999; 847: 203- 10
10. Yamamoto T, Yuyama K, Nakamura K, Kato T, Yamamoto H. PC12 hücreleri için nitrik oksit toksisitesinin kinetik karakterizasyonu: NO salınımının yarı ömür süresinin etkisi. Eur J Pharmacol 2000; 397:25-33
11. Nicoletti l, Migliorati G, Pagliacci MC, Grignani E Riccardi C. Propidium iyodür boyama ve akış sitometrisi ile timosit apoptozunu ölçmek için hızlı ve basit bir yöntem. J İmmünol Yöntemleri 1991; 139: 271-9
12. Moore KJ, Matlashewski C. Leishmania do nova tarafından hücre içi enfeksiyon, makrofaj apoptozunu inhibe eder. J Immunol 1994; 152: 2930- 7
13. Mark RJ, Keller JN, Kruman I, Mattson MP. Temel FGF, amiloid peptit kaynaklı oksidatif stresi, mitokondriyal disfonksiyonu ve hipokampal nöronlarda Na+-K+-ATPase aktivitesinin bozulmasını hafifletir. Beyin Araştırması 1997; 756: 205-14
14. Merad-Boudia M, Nicole A, Santiard-Baron D, Saille C, CeballosPicot L Nöronal hücrelerde glutatyon tükenmesi tarafından indüklenen apoptoz sürecinde erken bir olay olarak mitokondriyal bozulma: Parkinson hastalığı ile alaka düzeyi. Biochem Pharmaco11998; 56: 645-55
15. Langston JW, Ballard P, Tetrud JW, Irwin I. Meperidin-analog sentezinin bir ürünü nedeniyle insanlarda kronik Parkinsonizm. Bilim 1983; 219:979-80
16. Mizuno Y, Sone N, Suzuki K, Saitoh T. Fare beyninin mitokondrisine karşı 1-me etil-4-fenilpiridinyum iyonunun (MPP +) toksisitesi üzerine çalışmalar.J Neurol Sci 1988; 86: 97-110