

Zika Virüsü Yapısal Olmayan Protein 4B, Viral Enfeksiyonu Kolaylaştırmak İçin DHCR7 ile Etkileşime Giriyor
Dec 21, 2023
SOYUT
Zika virüsü (ZIKV), bağışıklık tepkisinden kaçmak ve konakçı hücrelerde etkili replikasyonu sağlamak için yapısal olmayan proteinler geliştirir. Kolesterol metabolik enzimi 7-dehidrokolesterol redüktazın (DHCR7) yakın zamanda ZIKV enfeksiyonunda doğuştan gelen bağışıklık tepkilerini etkilediği rapor edildi. Bununla birlikte, hayati önem taşıyan yapısal olmayan protein ve DHCR7-aracılı viral kaçışta yer alan mekanizmalar yeterince açıklanmamıştır. Bu çalışmada ZIKV enfeksiyonunun DHCR7 ekspresyonunu kolaylaştırdığını gösterdik. Özellikle, yukarı regüle edilen DHCR7, ZIKV enfeksiyonunu kolaylaştırdı ve DHCR7'nin bloke edilmesi, ZIKV enfeksiyonunu bastırdı. Mekanik olarak ZIKV yapısal olmayan protein 4B (NS4B), DHCR7 ekspresyonunu indüklemek için DHCR7 ile etkileşime girdi. Ayrıca DHCR7, TANK bağlayıcı kinaz 1 (TBK1) ve interferon düzenleyici faktör 3 (IRF3) fosforilasyonunu inhibe etti; bu, interferon-beta (IFN-) ve interferonla uyarılan genlerin (ISG'ler) üretimlerinin azalmasıyla sonuçlandı. Bu nedenle, ZIKV NS4B'nin TBK1 ve IRF3 aktivasyonunu baskılamak için DHCR7'ye bağlandığını, bunun da IFN- ve ISG'leri inhibe ederek ZIKV'den kaçmayı kolaylaştırdığını öneriyoruz. Bu çalışma, viral yapısal olmayan proteinlerin, kolesterol metabolik enzimleri ve ara maddeler yoluyla viral enfeksiyonu kolaylaştırmak için doğuştan gelen bağışıklığı nasıl antagonize ettiğine dair içgörüleri genişletmektedir.
cistanche tubulosa-bağışıklık sistemini iyileştirir
1. Giriş
Sivrisinek kaynaklı bir flavivirüs olan Zika virüsü (ZIKV), ilk olarak 1947'de Uganda'daki al yanaklı makaklardan tanımlandı. Dünya çapında birçok salgına maruz kalan ZIKV salgını, sivrisinek rotaları yoluyla patlayıcı bir şekilde yayılması, dünya çapında seyahat etmesi nedeniyle kümülatif bir küresel sağlık tehdidi haline geldi. asemptomatik taşıyıcılar ve cinsel yolla bulaşma. Geçmişteki salgınlardaki ZIKV enfeksiyonlarının çoğu asemptomatik veya hafifti (Wang ve ark., 2016), ancak son birkaç salgında ZIKV enfeksiyonu, hamilelik sırasındaki nörolojik sekeller (mikrosefali ve fetal ölüm) ve nörolojik bozukluk dahil olmak üzere yıkıcı hastalıklara yol açtı. (Guillain-Barre sendromu) yetişkinlerde (Cao-Lormeau ve diğerleri, 2016; Pierson ve Diamond, 2020; Rasmussen ve diğerleri, 2016). Doğuştan gelen bağışıklık sistemi, viral enfeksiyona karşı konakçı bağışıklık savunmasının ilk ve kritik hattıdır. ZIKV enfeksiyonundan sonra viral RNA, hücre içi retinoik asitle indüklenebilir gen I (RIG-I) (Chazal ve diğerleri, 2018; Hertzog ve diğerleri, 2018; Kato ve diğerleri, 2006) tarafından tanındı ve bu, aşağı yönde doğuştan gelen bağışıklık sistemini başlattı. TANK bağlayıcı kinaz 1 (TBK1) aktivasyonu, interferon düzenleyici faktör 3 (IRF3) fosforilasyonu ve ardından tip I interferonlar (IFN-I) üretimine yol açan yanıtlar (Fitzgerald ve diğerleri, 2003; Grant ve diğerleri, 2016); Xia ve diğerleri, 2018) ve çeşitli antiviral etkilere sahip düzinelerce interferonla uyarılmış genin (ISG'ler) ekspresyonu (Savidis ve diğerleri, 2016; Schneider ve diğerleri, 2014). Konakçı bağışıklık sistemi, viral enfeksiyonu kısıtlamak için IFN'ler ve ISG'ler üretir, ancak ZIKV'nin kendisi, konakçı hücrede başarılı hayatta kalma ve replikasyonu sağlamak için spesifik yapısal olmayan (NS) proteinleri kodlamak gibi çeşitli kaçış mekanizmaları geliştirmiştir. ZIKV genomik RNA, NS1, NS2A, NS2B, NS3, NS4A, NS4B ve NS5 dahil olmak üzere yedi yapısal olmayan protein üretir (Berthoux, 2020). ZIKV NS1, kaspaz-1'ı stabilize etmek için konakçı deubikuitinaz USP8'i kullanır ve ZIKV enfeksiyonuna fayda sağlamak için tip I IFN sinyalini zayıflatır (Zheng ve diğerleri, 2018). Bir mutant NS1'in TBK1'e bağlandığı ve TBK1'in fosforilasyonunu azalttığı, bunun da IFN üretiminin azalmasına yol açtığı rapor edilmiştir (Xia ve diğerleri, 2018). ZIKV NS3, insan iskele proteinlerine (14-3-3ε ve 14-3-3η) bağlanır ve onları ayırır (Riedl ve diğerleri, 2019), NS4A ise RIG-I- ve MDA'yı azaltmak için MAVS ile etkileşime girer{{50} }aracılı doğuştan gelen bağışıklık tepkileri (Ma ve diğerleri, 2018). Özellikle ZIKV NS5, tip I IFN sinyalini zayıflatmak için sinyal dönüştürücüyü ve transkripsiyon 2 aktivatörünü (STAT2) bağlar ve bozar (Grant ve diğerleri, 2016; Kumar ve diğerleri, 2016). Üstelik NS5'in, RIG-I ile etkileşime girdiği ve RIG-I'in K{59}}bağlantılı çoklu-ornatılmasını baskıladığı, dolayısıyla IFN üretimini baskıladığı da kanıtlanmıştır (Li ve diğerleri, 2020). Ek olarak ZIKV NS2A, NS2B, NS4A ve NS4B'nin, RIG-I yolundaki ayrı elemanları hedefleyerek IFN üretimini güçlendirdiği de gösterilmiştir (Xia ve diğerleri, 2018). Memeli hücrelerinde verimli replikasyonu sağlamak için ZIKV ayrıca bir zarf oluşturmak ve viral parçacık düzeneğini tamamlamak için konakçı hücresel lipit metabolik bileşenlerine de güvenir (Chen ve diğerleri, 2020; Leier ve diğerleri, 2020). Kolesterol, hücre zarlarının lipit bileşenlerinden biridir ve birçok biyolojik fonksiyona katılır (Ikonen, 2008). Hücresel kolesterol homeostazisi, lipoprotein partiküllerinden emilim ve hücre dışı alıcılara salınımı da içeren kolesterol sentezi ile yakından modüle edilir. Neredeyse tüm memeli hücreleri kolesterol metabolizmasına bağımlıdır (Luo ve diğerleri, 2020). Biriken kanıtlar, kolesterol metabolizmasının viral enfeksiyona karşı doğuştan gelen bağışıklık tepkisine katıldığını göstermiştir (Blanc ve diğerleri, 2013; Petersen ve diğerleri, 2014; York ve diğerleri, 2015). Viral enfeksiyon üzerine kolesterol sentezi önemli ölçüde değişti ve buna makrofajlarda IFN-I ve ISG'lerin ekspresyonunun artması eşlik etti (Li ve diğerleri, 2017; Liu ve diğerleri, 2008; York ve diğerleri, 2015). Kolesterol metabolizmasındaki anahtar enzim olan kolesterol-25-hidroksilaz (CH25H), kolesterolü, büyük bir çoğunluğa karşı doğuştan gelen bağışıklık tepkisine katkıda bulunan biyolojik ürün olarak tanımlanan 25-hidroksikolesterol'e (25HC) dönüştürür. insan bağışıklık yetersizliği virüsü 1 (HIV-1), veziküler stomatit virüsü (VSV), herpes simpleks virüsü 1 (HSV-1), Ebola virüsü (EBOV), ZIKV, fare gama herpes virüsü ( MHV68), Rift vadisi ateşi virüsü (RVFV) ve Rus ilkbahar-yaz ensefalit virüsü (RSSEV) (Blanc ve diğerleri, 2013; Li ve diğerleri, 2017; Liu ve diğerleri, 2013). Kolesterol metabolik ürünlerinin (örneğin 25HC) sinyal iletimini nasıl manipüle edebildiğini ve doğal bağışıklığa nasıl katılabileceğini araştırmak için mevcut çalışmalar sınırlıdır. Bugüne kadar kolesterol biyosentezinin yukarısındaki enzimler veya ara maddeler hala tam olarak açıklanamamıştır. Hayati öneme sahip kolesterol metabolik enzimi olan 7-dehidrokolesterol redüktaz (DHCR7), sterollerin B halkasındaki C (7-8) çift bağını silebilir ve kolesterolü 7-dehidrokolesterolden ({{100}) katalize edebilir. }DHC) (Luu ve diğerleri, 2015). 7-DHC aynı zamanda D vitamininin öncüsüdür ve DHCR7 mutasyonları daha yüksek D vitamini ile bağlantılıdır; bu da DHCR7'nin kolesterol ve D vitamini dönüşümünde karmaşık biyolojik etkiler gösterdiğini düşündürür (Kuan ve diğerleri, 2013; Prabhu ve diğerleri. , 2016a). İyi sunulmuş bir çalışma, DHCR7 sessizliğinin PI3K-AKT3 yolunu aktive ederek IRF3 Ser385 fosforilasyonuna yol açtığını ve çoklu viral enfeksiyonu in vitro ve in vivo olarak inhibe etmek için IFN üretimini destekleyebildiğini göstermiştir (Xiao ve diğerleri, 2020). Bununla birlikte, ZIKV NS proteini aracılı bağışıklık kaçakçılığında DHCR{116}}aracılı kolesterol metabolizmasının anlaşılması yeterince tanımlanmamıştır. Burada ZIKV NS4B'nin, IFN-I tepkisini azaltmak ve ZIKV enfeksiyonunu kolaylaştırmak için kolesterol sentezinde anahtar bir enzim olan DHCR7'yi hedeflediği farklı bir mekanizmayı açıklıyoruz. ZIKV enfeksiyonunun DHCR7 ekspresyonunu arttırdığını bulduk. İlginç bir şekilde, geliştirilmiş DHCR7, ZIKV enfeksiyonunu teşvik ederken, DHCR7'yi inhibitörlerle yıkmak veya hedeflemek ZIKV enfeksiyonunu baskılayabilir. Ayrıca ZIKV NS4B, DHCR7'yi bağlayabilir ve dolayısıyla DHCR7 ekspresyonunu indükleyebilir; bu da TBK1 ve IRF3 aktivasyonunu inhibe ederek IFN- ve ISG üretiminin azalmasına yol açar. Bu nedenle ZIKV NS4B'nin DHCR7'ye bağlanmasının IRF3 aktivasyonunu azalttığını, bunun da ZIKV kaçmasını kolaylaştırmak için IFN- ve ISG'leri inhibe ettiğini öneriyoruz. Bu çalışma, ZIKV yapısal olmayan proteininin, kolesterol metabolik enzimleriyle etkileşime girerek viral enfeksiyonu kolaylaştırmak için doğuştan gelen bağışıklığı nasıl ortadan kaldırdığına dair yeni anlayışları genişletiyor.

cistanche tubulosa-bağışıklık sistemini iyileştirir
Cistanche Enhance Immunity ürünlerini görüntülemek için buraya tıklayın
【Daha fazlasını isteyin】 E-posta:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
2. Malzemeler ve yöntemler
2.1. Hücre hatları
U251 hücreleri, Çin Tip Kültür Koleksiyonu Merkezi'nden (CCTCC) (Wuhan, Çin) satın alındı. Cercopithecus aethiops böbrek (Vero) hücreleri, insan embriyonik böbrek (HEK 293T) hücreleri ve insan akciğer adenokarsinomu (A549) hücreleri, Amerikan Doku Kültürü Koleksiyonundan (ATCC) satın alınmıştır. Hücreler, %10 fetal sığır serumu (FBS) (Gibco), penisilin (100 U/mL) ve streptomisin sülfat (100 ug/ mL) ile desteklenmiş Dulbecco Modifiye Eagle Ortamında (DMEM) (Gibco) 37°C'de ve 5°C'de tutuldu. % CO2. Aedes albopictus (C6/36) hücreleri, %10 FBS, penisilin (100 U/mL) ve streptomisin sülfat (100 ug/mL) ile desteklenmiş Minimum Temel Ortamda (MEM) %5 CO2 ile 28°C'de kültürlendi.
2.2. ZIKV amplifikasyonu, titrasyon ve enfeksiyon
ZIKV izolatı z16006 (GenBank erişim numarası, KU955589.1), C6/36 hücrelerinde yetiştirildi ve ZIKV, dondurucu şişelerde bölündü ve 80°C'de saklandı. ZIKV titreleri, plak tahlili ile ölçüldü. Hücreler, belirtilen enfeksiyon çokluğunda (MOI) 2 saat boyunca ZIKV ile enfekte edildi, ardından fosfat tamponlu salin (PBS) ile yıkandı ve daha sonra kültürlendi, toplandı ve incelendi.
2.3. Plazmitler ve reaktifler
İfade plazmidi pcDNA3.1(+)-3 Bayrağı, ZIKV cDNA'nın karşılık gelen parçalarından bireysel ZIKV genlerini klonlamak için kullanıldı. pGEX6p-1-NS4B'yi oluşturmak için ZIKV NS4B, ClonExpress II Tek Adımlı Klonlama Kiti (Vazyme Biotech, Nanjing, Çin) kullanılarak pGEX6p-1 vektörüne alt klonlandı. pCAGGS-HA vektörüne veya pcDNA3.1 (+)-3 Bayrak vektörüne klonlanan insan DHCR7, RIG-I, TBK1 ve IRF3'ü kodlayan cDNA'lar, standart moleküler klonlama yöntemiyle oluşturuldu. DHCR7'nin yanlış anlamlı mutasyonu G410S, sahaya yönelik mutajenez yöntemi kullanılarak oluşturuldu. Monoklonal tavşan anti-ZIKV zarfı (GTX133314) GeneTex'ten (Irvine, CA, ABD) satın alınmıştır. Tavşan poliklonal anti-DHCR7 (A8049), tavşan monoklonal anti-ISG15 (A2416), tavşan monoklonal anti-TBK1 (A3458), tavşan monoklonal anti-P-TBK1 ve Ser172 (AP1026), tavşan poliklonal anti-IRF3 (A11118), anti -tavşan IgG (ac005) ve anti-fare IgG (ac011), ABclonal Technology'den (Wuhan, Çin) satın alınmıştır. Antifare FITC ve anti-tavşan Cy3 ikincil antikorları, Abbkine'den (Wuhan, Çin) satın alındı. Ser396'da (29047S) tavşan monoklonal anti-P-IRF3 ve tavşan monoklonal anti-ISG56 (14769S), Cell Signaling Technology'den (CST, Boston, MA, ABD) satın alındı. Fare monoklonal anti-Flag (F3165), tavşan monoklonal anti-HA (H6908) ve fare monoklonal anti-GAPDH (G9295), Sigma'dan (St Louis, MO, ABD) satın alınmıştır. Fare monoklonal antiFlavivirüs grubu antijen-antikoru (MAB10216), Millipore'dan (Mass, ABD) satın alınmıştır. Lipofectamine 2000 (11668-027) ve Trizol (15596018), Invitrogen Corporation'dan (Carlsbad, CA, ABD) satın alınmıştır. Poly(I: C), InvivoGen'den (San Diego, CA, ABD) satın alındı.
2.4. Plak tahlili
ZIKV içeren süpernatan, serumsuz DMEM ve enfekte Vero hücreleri ile bir 12-kuyu plakasında 2 saat boyunca seyreltildi, ardından 1 mL PBS ile iki kez yıkandı. %2 FBS ve %2 düşük erime noktalı agaroz içeren DMEM, 1:1 hacim oranına göre iyice karıştırıldı ve her kuyucuğa 1 mL karışım ilave edildi. Enfekte olmuş hücreler 5-7 gün boyunca %5 CO2 ile 37°C'de kültürlendi. Hücreler 1 saat boyunca %4 paraformaldehid ile sabitlendi ve 30 dakika boyunca %0,5 kristal viyole ile boyandı. 12-kuyu plakası suyla yıkandı ve plaklar hesaplandı.
2.5. Lentivirüs üretimi ve enfeksiyonu
İnsan DHCR7'sine yönelik shRNA'ların hedefleme dizileri şu şekildeydi: sh-DHCR7-1: 50 -ATTGCCAGCACAGACGGATTT-30, sh-DHCR7-2: 50 -CGTGATTGACTTCTTCTGGAA{ {8}}. Negatif bir kontrol için karıştırılmış bir shRNA taşıyan pLKO.1 vektörü (Sigma-Aldrich, St. Louis, MO, ABD) veya spesifik hedef dizi, psPAX2 ve Lipofectamine 2{{19} ile pMD2.G ile birlikte HEK293T hücrelerine transfekte edildi. }00. Süpernatanları içeren viral parçacıklar, transfeksiyondan 36 saat sonra toplandı ve daha sonra 210 g'de 10 dakika boyunca santrifüjlendi. Hücre içermeyen süpernatan faz, hücre kalıntılarını gidermek için 0,45 μm'lik bir filtreden süzüldü. U251 hücreleri, 8 ug/mL polibren varlığında lentiviral parçacıklarla enfekte edildi. 48 saatlik kültürden sonra U251 hücreleri puromisin (2 ug/mL, Sigma) ile seçildi. Sh-DHCR7'nin yok etme etkinliği RT-PCR ve Western blot analizi ile belirlendi.

cistanche tubulosa-bağışıklık sistemini iyileştirir
2.6. Batı lekesi
Hücreler, 1 saat boyunca buz üzerinde proteaz inhibitörleri ve fosfataz inhibitörleri ile desteklenmiş RIPA tamponu ile lize edildi, daha sonra hücreyi toplamak için 4°C, 13,000 g'de 1{{10}} dakika boyunca santrifüjlendi lizat. Hücre lizatındaki protein konsantrasyonu bisinkoninik asit (BCA) protein tahlili ile ölçüldü. Protein, SDS-PAGE ile ayrıldı ve daha sonra bir polivinil diflorür (PVDF) membranına aktarıldı. PVDF membranı, %5 BSA içeren immünoblotlama bloke edici tampon TBST (10 mmol/L Tris-HCl, pH 7,4, 0,15 mol/L NaCl ve %0,05 Tween-20) ile 1 saat süreyle bloke edildi. TBST ile yıkandıktan sonra membran, birincil antikorlar ve ikinci antikorlarla inkübe edildi ve ardından bir Kemilüminesans görüntüleme sistemi (Bio-Rad) kullanılarak tespit edildi.
2.7. Toplam kolesterol tahlili
Hücrelerdeki toplam kolesterol, Applygen Technologies Inc.'den (Pekin, Çin) alınan bir Doku toplam kolesterol tahlil kiti kullanılarak tespit edildi. 5 mmol/L kolesterol standardı, standart eğrinin çizilmesi için susuz etanol ile seri bir seyreltmeye tabi tutuldu ve hücresel toplam kolesterol miktarları, standart eğrilere göre hesaplandı. Deney, üretici tarafından sağlanan prosedür izlenerek gerçekleştirildi.
2.8. Eş-immünopresipitasyon analizleri
HEK293T hücreleri belirtilen plazmitlerle transfekte edildi. Hücreler toplandı ve proteaz inhibitörleriyle desteklenen RIPA lizis tamponu ile parçalandı. 4°C'de 15 dakika boyunca 18,000 g'de santrifüjlemeden sonra, hücre lizatları toplandı ve Flag-Trap ProteinG Sefaroz (GE Healthcare, Milwaukee, WI, ABD) ile 4°C'de 4 saat süreyle imüno-çökeltildi. Bağlı proteinler 2 yükleme tamponu ile elüt edildi ve immünoblotlama ile analiz edildi.
2.9. Gerçek zamanlı PCR
Toplam RNA'lar, TRIzol reaktifi (Invitrogen Life Technologies) kullanılarak hücrelerden ekstre edildi ve cDNA, bir M-MLV ters transkriptaz kiti (Promega, Madison, WI, ABD) kullanılarak üretildi. RT-PCR, Roche LC480'de SYBR RT-PCR Kitleri (DBI Bio-science) kullanılarak gerçekleştirildi. Gliseraldehit-3-fosfat dehidrojenaz (GAPDH) mRNA, mRNA'ları normalleştirmek için endojen referans olarak belirlendi ve gen ekspresyon seviyeleri, 2 ΔΔCT yöntemi kullanılarak hesaplandı. RT-PCR primerlerinin dizileri Ek Tablo S1'de gösterilmektedir. 2.10. Konfokal mikroskopi
U251 hücreleri plazmid ile transfekte edildi ve 30 saat boyunca kültürlendi, ardından üç kez PBS ile yıkandı. Hücreler 15 dakika boyunca %4 paraformaldehid ile sabitlendi ve 5 dakika boyunca %0,1 TritonX-100 içeren PBS ile geçirildi. PBS ile yıkandıktan sonra hücreler, 30 dakika süreyle %5 BSA içeren PBS ile kapatıldı. Hücreler üç kez PBS ile yıkandı ve anti-HA, anti-FLAG ve anti-flavivirüs ile inkübe edildi, ardından anti-fare FITC ve anti-tavşan Cy3 ikincil antikorları ile inkübe edildi. Hücreler 40,6-Diamidino-2-fenilindol dihidroklorür (DAPI) ile boyandı ve bir Olympus eş odaklı mikroskop kullanılarak gerçekleştirildi.
2.11. GST aşağı çekme analizleri
pGEX6p-1-NS4B plazmidi, Escherichia coli (E. coli) BL21 suşuna transfekte edildi. GST ve GST-NS4B, nihai konsantrasyonu 0.5 mmol/L olan IPTG tarafından indüklendi ve kültürler, 37°C'de ilave 6-8 saat süreyle büyütüldü. Daha sonra GST proteini ve GST- NS4B proteini E. coli bakterisinden saflaştırıldı. GST veya GST-NS4B proteini, glutatyon Sefaroz boncukları (Novagen) ile inkübe edildi ve üç kez PBS ile yıkandı. GST ve GST-NS4B proteini, HA-DHCR7-eksprese edilen HEK293T hücre lizatlarını kodlayan plazmidlerden kaynaklanan ökaryotik füzyon proteini HA-DHCR7 ile 4 saat boyunca 4°C'de inkübe edildi. Çökeltiler beş kez yıkandı, kaynatıldı. 2 SDS yükleme tamponu ve anti-GST ve anti-HA antikorları ile Western blot ile tespit edildi.
2.12. HA-DHCR7 bölgeye yönelik mutajenez
Uygun mutajenik primer çiftleri (Ek Tablo S1) sentezlendi ve mutasyona uğramış yapıyı PCR ile oluşturmak için kullanıldı. HA-DHCR7, PrimeSTAR® HS Premix (Takara) için şablon olarak kullanıldı. PCR sonrasında PCR ürününde kalan vahşi tip plazmit, DpnI (New England Biolabs) tarafından seçici olarak sindirildi. Sindirilen PCR ürünü, E. coli DH5 suşuna transfekte edildi. İstenilen mutant, Sanger sekans analizi ile doğrulandı.

cistanche bitkisi bağışıklık sistemini güçlendiriyor
2.13. istatistiksel analiz
Tüm deneyler benzer sonuçlarla en az üç kez tekrarlandı. Veriler ortalama standart sapma (SD) olarak ifade edilir. Değişkenliğin önemi, GraphPad Prism yazılımı kullanılarak, Dunnett'in çoklu karşılaştırma testi ile iki grup veya tek yönlü ANOVA için Öğrencinin iki kuyruklu eşleştirilmemiş t testi veya Sidak'ın çoklu grup karşılaştırmaları için çoklu karşılaştırma testi ile iki yönlü ANOVA ile belirlendi. (sürüm 8.0.1). P < 0.{{10}}5 değeri istatistiksel olarak anlamlı kabul edildi ve P > 0.05 değeri istatistiksel olarak anlamlı değildi. Tüm veriler için anlamlılık *P < 0,05, **P < 0,01 ve ***P < 0,001 olarak sunuldu.
3. Sonuçlar
3.1. ZIKV enfeksiyonu DHCR7 ekspresyonunu indükler
Biriken kanıtlar, kolesterol metabolizmasının, ZIKV ve Dengue virüsü (DENV) gibi flavivirüs enfeksiyonuna karşı konakçının doğuştan gelen bağışıklık tepkilerini etkilediğini göstermiştir (Leier ve diğerleri, 2020; Randall, 2018). DHCR7, kolesterol biyosentezindeki son adım olan 7-DHC'yi kolesterole dönüştüren bir enzimi kodlar (Moebius ve diğerleri, 1998). İlk olarak ZIKV enfeksiyonu üzerine DHCR7 ifadesini tespit ettik. İnsan astrosit U251, hem mRNA'da hem de proteinde DHCR7 ekspresyonunu doza bağlı olarak artıran ZIKV ile enfekte edildi (Şekil 1A-C). Bu fenomeni doğrulamak için daha sonra Vero hücrelerinde DHCR7 ekspresyonunu inceledik ve ZIKV enfeksiyonunun, U251 hücrelerindeki sonuçlarla tutarlı olan DHCR7 ekspresyonunu (Şekil 1D-F) büyük ölçüde indüklediğini bulduk.

cistanche faydaları-bağışıklık sistemini güçlendirir
3.2. DHCR7'yi hedeflemek kritik bir ZIKV karşıtı aktiviteyi ortaya çıkarır
DHCR7'nin ZIKV enfeksiyonuna karşı etkilerini değerlendirmek için U251 ve A549 hücreleri, HA-DHCR7 kodlayan plazmid ile transfekte edildi ve ardından ZIKV (MOI=1) ile enfekte edildi. Sonuçlar, DHCR7 aşırı ifadesinin ZIKV mRNA ifadesini önemli ölçüde arttırdığını gösterdi (Şekil 2A ve B). Özellikle DHCR7 proteininin birikmesiyle ZIKV yapısal protein E'nin ekspresyonu da arttı (Şekil 2C ve D). Ek olarak, Şekil 2C'deki süpernatantı kullanarak ayrıca bir plak tahlili gerçekleştirdik ve DHCR7 aşırı ifadesinin, kontrol grubuyla karşılaştırıldığında plak oluşturan birimleri önemli ölçüde artırdığını bulduk (Şekil 2E ve F). DHCR7'nin yanlış anlamlı mutasyonu G410S'nin enzim aktivitesini ortadan kaldırdığı rapor edilmiştir (Fitzky ve diğerleri, 1998; Shim ve diğerleri, 2004; Witsch-Baumgartner ve diğerleri, 2000). DHCR7'nin ZIKV enfeksiyonu üzerindeki etkilerini daha da belirlemek için daha sonra DHCR7'nin (G410S) aktif olmayan bir mutantını oluşturduk. DHCR7'nin vahşi türüyle karşılaştırıldığında G410S mutantı, ZIKV enfeksiyonunu önemli ölçüde inhibe edebildi (Şekil 2G). Gözlemi doğrulamak için aynı odaklı bir mikroskopi tahlili de yaptık. Şekil 2H'de gösterildiği gibi DHCR7'nin aşırı ekspresyonu ZIKV enfeksiyonunu arttırdı. Endojen DHCR7 enzim aktivitesinin ZIKV enfeksiyonu için kritik olup olmadığını belirlemek amacıyla, özellikle DHCR7'yi hedef alan iki kısa saç tokası RNA (shDHCR7-1 ve sh-DHCR7-2) tasarladık ve DHCR7-susturulmuş U251 hücresi oluşturduk shRNA sistemine sahip çizgiler (Şekil 3A). Son olarak, daha yüksek susturma verimliliği nedeniyle sh-DHCR7-1'yi seçtik. Hücre hattı ile transdüksiyonlu kontrol shRNA ile karşılaştırıldığında, bu DHCR7 nakavt hücreleri ZIKV enfeksiyonuna karşı daha düşük duyarlılık gösterdi (Şekil 3B ve C). Daha sonra, DHCR7 enzim aktivitesini inhibe ettiği kanıtlanmış olan (Xu ve diğerleri, 2011) 7-DHC'nin kolesterole dönüşmesini önleyen seçici DHCR7 inhibitörü AY9944'ü kullandık (Horlick, 1966; Moebius ve diğerleri, 1998). Kontrol ile karşılaştırıldığında, AY9944 uygulaması doza bağlı olarak U251 hücrelerinde ZIKV enfeksiyonunu inhibe etti (Şekil 3D-F). DHCR7'nin etkilerini daha ayrıntılı değerlendirmek için Vero hücrelerinde plak tahlili de yapıldı ve AY9944'ün ZIKV enfeksiyonunu önemli ölçüde baskılayabildiğini gösterdi (Şekil 3G ve H). Özellikle konfokal mikroskopi, ZIKV E proteininin AY9944 varlığında büyük ölçüde azaldığını gösterdi (Şekil 3I). Bu bulgular DHCR7'yi hedeflemenin ZIKV enfeksiyonunu engelleyebileceğini gösterdi.

Şekil 1. ZIKV enfeksiyonu DHCR7 ekspresyonunu indükler. A–F U251 ve Vero hücreleri, 24 saat boyunca ZIKV (MOI=0, 1 ve 2) ile enfekte edildi ve ZIKV (A, D) ve DHCR7'nin (B, E) hücre içi RNA seviyeleri, şu şekilde belirlendi: Dahili kontrol olarak GAPDH'li RT-PCR. DHCR7 ve ZIKV zarflarının nispi protein seviyeleri Western blot (C, F) ile tespit edildi. Veriler en az üç bağımsız deneyden (ortalama SD) veya temsili verilerden (C, F) alınmıştır. İstatistiksel anlamlılık, Dunnett'in çoklu karşılaştırma testi (A, B, D, E) ile tek yönlü ANOVA kullanılarak hesaplandı. **P < 0.01, ***P < 0,001. SD, standart sapma.
3.3. DHCR7, IFN ve ISG üretimini azaltmak için TBK1 ve IRF3 aktivasyonunu inhibe eder
DHCR7, 7-DHC'yi kolesterole dönüştürmek için hayati bir enzim olduğundan (Moebius ve diğerleri, 1998) ve ZIKV enfeksiyonu, DHCR7 ekspresyonunu artırabildiğinden, ZIKV enfeksiyonu üzerine kolesterol seviyesini bu şekilde ölçtük. DHCR7 artmasına rağmen (Şekil 1A-D), ZIKV enfeksiyonunun U251 ve Vero hücrelerinde kolesterol sentezi üzerinde çok az etkisi olduğunu (Şekil 4A ve B) ortaya çıkardık. ZIKV enfeksiyonu üzerine artan DHCR7 ve IFN'lerin ZIKV enfeksiyonuyla mücadeledeki kilit rolleri göz önüne alındığında, daha sonra DHCR7'nin IFN-I sinyal yolu üzerindeki etkisini belirledik. Kontrol ve DHCR7-susturucu U251 hücreleri ZIKV ile enfekte edildi veya poli(I:C) ile transfekte edildi ve IFN- ifadesi araştırıldı. Kontrol grubuyla karşılaştırıldığında ZIKV enfeksiyonu veya poli(I:C) tedavisi, DHCR7-susturucu U251 hücrelerinde IFN ekspresyonunu belirgin şekilde arttırdı (Şekil 4C ve D). ISG'ler interferon eylemlerinin efektörleridir ve ZIKV enfeksiyonuna karşı doğuştan gelen bağışıklık savunmasında önemli roller oynarlar. Ayrıca DHCR7'nin bloke edilmesinin hem mRNA hem de protein seviyelerinde ISG15 ve ISG56 ekspresyonunu önemli ölçüde güçlendirebileceğini gösterdik (Şekil 4E-J). Tutarlı bir şekilde, DHCR7 inhibitörü AY9944 tedavisi IFN-, ISG15 ve ISG56 ekspresyonunu indükleyebilir (Şekil 4K, L). Önemli olarak, aktif olmayan mutant G410S, DHCR7'nin IFN- ve ISG ekspresyonu üzerindeki önleyici etkilerini kısmen tersine çevirebilir (Şekil 4M, N). TBK1 ve IRF3 aktivasyonu, IFNs-ISG'lerin indüksiyonu için gereklidir, bu nedenle daha sonra DHCR7'nin TBK1 ve IRF3 ekspresyonu ve aktivasyonu üzerindeki etkisini inceledik. DHCR7'nin yalnızca protein seviyesini doza bağlı olarak inhibe etmekle kalmayıp aynı zamanda TBK1 ve IRF3 fosforilasyon seviyesini de baskıladığını gösterdik (Şekil 5A-C). Ayrıca, aktif olmayan mutant G410S, DHCR7'nin IRF3 ve TBK1 fosforilasyonu üzerindeki önleyici etkilerini tamamen tersine çevirdi (Şekil 5D). DHCR7 aşırı ekspresyonu bulgularıyla tutarlı olmayan AY9944 tedavisi, U251 hücresinde IRF3 ve TBK1 aktivasyonunu indükleyebilir (Şekil 5E).
3.4. ZIKV NS4B, TBK1 ve IRF3 fosforilasyonunu inhibe etmek için DHCR7 ile etkileşime girer
Artan deliller, ZIKV'nin, çok sayıda ayrı mekanizma yoluyla konakçının doğuştan gelen ve adaptif bağışıklığından doğrudan kaçarak konakçı hücrelerde verimli replikasyonu kolaylaştırmak için spesifik NS proteinleri geliştirdiğini ortaya çıkardı. DHCR7 ile etkileşime girebilecek bireysel ZIKV NS proteinini taramak için bir ortak IP tahlili gerçekleştirdik. HEK293T hücreleri, pCMV-DHCR7-HA ve Flag-tag ile birleştirilmiş bireysel NS proteinini eksprese eden plazmid ile birlikte transfekte edildi. Şekil 6A'da gösterildiği gibi DHCR7, yalnızca NS4B'ye bağlanır ancak diğer NS proteinleriyle etkileşime giremez. Karşılıklı ortak IP analizleri ayrıca gerçekleştirildi ve NS4B proteininin HEK293T hücrelerinde DHCR7 ile etkileşime girdiğini gösterdi (Şekil 6B ve C). NS4B ve DHCR7'nin etkileşimini doğrulamak için daha sonra eş odaklı bir mikroskop gerçekleştirdik ve NS4B proteini ile DHCR7 proteininin sitoplazmada aynı yerde bulunduğunu bulduk (Şekil 6D). GST aşağı çekme analizi ayrıca NS4B ve DHCR7'nin etkileşimini de göstermiştir (Şekil 6E). Ayrıca U251 hücrelerinde NS4B'nin geçici transfeksiyonu, DHCR7 ekspresyonunu önemli ölçüde indükleyebilir (Şekil 6F). Önemli olarak NS4B, hem TBK1 hem de IRF3'ün fosforilasyonunu doza bağlı olarak bloke edebilir; bu, DHCR7'ye yanıt olarak TBK1 ve IRF3'ün artan aktivasyonuyla pozitif olarak ilişkilidir (Şekil 6G ve H). Bununla birlikte, HEK293T hücrelerinde NS4B'nin aşırı ekspresyonu, TBK1'in protein seviyesini önemli ölçüde azalttı, ancak IRF3 proteini üzerinde çok az etkisi oldu (Şekil 6G ve H). Bu gözlemleri daha da doğrulamak için NS4B, DHCR7'yi yok eden U251 hücrelerine transfekte edildi ve endojen protein ve TBK1 ve IRF3'ün fosforilasyon seviyeleri üzerinde inhibitör etkiler gösterdi (Şekil 6I). Birlikte ele alındığında bu sonuçlar, ZIKV NS4B'nin DHCR7 ile etkileşime girdiğini ve TBK1 ve IRF3 aktivasyonunu bloke etmek ve ardından ZIKV enfeksiyonunu kolaylaştırmak için DHCR7 ekspresyonunu arttırdığını gösterdi.

Şekil 2. DHCR7'nin aşırı ifadesi ZIKV replikasyonunu teşvik eder. A – D U251 ve A549 hücreleri, belirtilen konsantrasyonlarda HA-vektörü veya HA-DHCR7 ile 12 saat boyunca transfekte edildi ve ardından 36 saat daha ZIKV ile enfekte edildi. ZIKV RNA seviyeleri, dahili kontrol (A, B) olarak GAPDH ile RT-PCR ile tespit edildi ve ZIKV zarfı, HA-DHCR7 ve GAPDH'nin protein seviyeleri Western blot (C, D) ile tespit edildi. E, F Vero hücreleri, ZIKV kopyalarını plak tahlili ile belirlemek için 48 saat boyunca Şekil 2C'deki ZIKV içeren süpernatan ile enfekte edildi. G U251 hücreleri, 12 saat boyunca HA-vektörü, HA-DHCR7 veya HA-DHCR7 (G410S) ile transfekte edildi ve 36 saat boyunca ZIKV ile enfekte edildi ve ZIKV zarfı, HA-DHCR7 ve protein seviyeleri GAPDH, Western blot ile tespit edildi. H U251 hücreleri, 12 saat boyunca HA-vektörü veya HA-DHCR7 (1 ug) ile transfekte edildi, 36 saat boyunca ZIKV ile enfekte edildi ve ardından FITC-konjuge antifare ile boyandıktan sonra fare anti-flavivirüs ve tavşan anti-HA antikorları ile inkübe edildi ve Cy3-konjuge anti-tavşan ikincil antikorları. Çekirdekler DAPI ile boyandı. Görüntüler konfokal mikroskopi ile görselleştirildi. Ölçek çubuğu=100 μm. Veriler en az üç bağımsız deneyden (ortalama SD) veya temsili verilerden (C, D, E, G, H) alınmıştır. İstatistiksel anlamlılık, Öğrencinin iki kuyruklu eşleştirilmemiş t testi (F) veya Dunnett'in çoklu karşılaştırma testi (A, B) ile tek yönlü ANOVA kullanılarak hesaplandı. *P < 0,05, ***P < 0,001. SD, standart sapma.
4. Tartışma
Tip I IFN'ler ve bunların aşağı yöndeki ISG'leri, çok sayıda patojenle karşı karşıyadır ve ZIKV'ye karşı konakçı immün savunmasında çok önemli bir rol oynar (Lazear ve diğerleri, 2016). IFN aracılı gözetimden kaçınmak ve yeterli replikasyonu sağlamak için ZIKV, hücresel doğuştan gelen bağışıklık sisteminden kaçmak için IFN sinyal yolunun çeşitli noktalarını hedef alan NS proteinlerini geliştirir (Lee ve diğerleri, 2021). Montaj çalışmaları ZIKV NS1, NS3, NS4A ve NS5'in RIG-I/IFN-I yolunun farklı modüllerini inhibe ettiğini ve bağımsız ve çeşitli mekanizmalar kullanarak viral enfeksiyonu kolaylaştırdığını göstermiştir (Grant ve diğerleri, 2016; Kumar ve diğerleri, 2016). ; Ma ve diğerleri, 2018; Riedl ve diğerleri, 2019; Xia ve diğerleri, 2018; Zheng ve diğerleri, 2018). Bununla birlikte, ZIKV NS4B'nin bağışıklık kısıtlamasını önleyen spesifik mekanizması tam olarak tanımlanmamıştır. ZIKV NS4B, 251 amino asitten oluşan son derece hidrofobik bir proteindir ve N-terminalli endoplazmik retikulum membranında bulunur (Zou ve diğerleri, 2014). IFN-I sinyal yolunun NS4B inhibisyonu, farklı flavivirüslerde tanımlanmıştır (Ding ve diğerleri, 2013; Munoz-Jordan ve diğerleri, 2003, 2005; Shan ve diğerleri, 2021; Yi ve diğerleri, 2016; Zhang ve diğerleri). diğerleri, 2021). Yakın zamanda yapılan bir çalışma, Brezilya'da izole edilen ZIKV INMI1 suşunun, STAT1 fosforilasyonunu ezerek ve sonuç olarak STAT1 nükleer taşınımını kesintiye uğratarak IFN-I sinyal yolunun aşağı akışını antagonize etmek için NS4B'yi kullandığını bildirmiştir (Fanunza ve diğerleri, 2021). Bu çalışmada ZIKV NS4B'nin, IFN-I sinyal yolunun yukarı akış bileşeni olan TBK1 ve IRF3 fosforilasyonunu baskılayarak IFN üretimini ortadan kaldırdığı farklı bir mekanizma bulduk. Özellikle, ZIKV NS4B'de amino asit ikamesi (G18R) keşfedilmiştir; bu, IFN üretiminin azalmasına ve ISG ekspresyonunun zayıflamasına katkıda bulunmuş ve sonuç olarak farelerde viral enfeksiyonu kolaylaştırmıştır; bu da NS4B'nin patogenezin bir belirleyicisi olarak önemini göstermektedir (Gorman ve ark. ., 2018). Ortaya çıkan kanıtlar, doğuştan gelen bağışıklık tepkisine katılan kolesterol metabolizmasının kritik önemini gösterdi (Akula ve diğerleri, 2016; Dang ve diğerleri, 2017; Reboldi ve diğerleri, 2014; York ve diğerleri, 2015). Kolesterol metabolizmasındaki çeşitli ara maddelerin geniş antiviral etkilere sahip olduğu belgelenmiş olsa da (Blanc ve diğerleri, 2013; Li ve diğerleri, 2017; Liu ve diğerleri, 2013; Xiao ve diğerleri, 2020), çalışmamız yeni bir mekanizmayı ortaya koydu. kolesterol metabolik enzimi DHCR7'nin, viral enfeksiyonu kolaylaştırmak için TBK1 ve IRF3 aktivasyonunu zayıflatarak ZIKV enfeksiyonunda rol oynadığını gösterdi. Desmosterol ve kolesterol metabolizmasında rol oynayan anahtar bir enzim olan DHCR7, UVB'ye maruz kalan cilt hücrelerinde 7-DHC'yi D vitaminine dönüştürme anahtarını temsil eder (Prabhu ve diğerleri, 2016b). Üstelik DHCR7, yalnızca Bloch yolunun girişinde değil aynı zamanda kolesterol sentezinin kontrolünde hayati bir rol oynayan Kandutsch-Russell yolunun sonunda da konumlandırılmıştır (Prabhu ve diğerleri, 2016a, 2016b). DHCR7'nin çapraz karışması ve bunun çeşitli yollardaki diğer enzimlerle etkileşimi, farklı hücre tipleri veya organlardaki çoklu fonksiyonları güçlendirebilir. Önceki çalışma, DHCR7'nin bloke edilmesinin, kolesterol biyosentezinin doğrudan öncüsü olan desmosterolün azaltılabileceğini ve dolayısıyla HCV enfeksiyonuna karşı yeterli koruma sağlayabileceğini ortaya çıkarmıştır (Luu ve diğerleri, 2015; Rodgers ve diğerleri, 2012). Daha da önemlisi, Xiao ve ark. VSV enfeksiyonunun DHCR7 ekspresyonunu azalttığını, bunun da kolesterolün azalmasına yol açtığını, ancak makrofajlarda ve karaciğerde çok daha fazla 7-DHC birikimine yol açtığını göstermiştir (Xiao ve diğerleri, 2020). 7-DHC ile tedavi edilen makrofajlar, gelişmiş bir antiviral yanıt oluşturdu; kolesterol ilavesi ise küçük bir koruma gösterdi. DHCR7 inhibitörleri ve 7-DHC'nin uygulanması, HIN1, HSV ve VSV gibi viral enfeksiyonlarla mücadelede yararlı yaklaşımlar olabilir. Bu çalışmada DHCR7 inhibitörü AY9944'ün ZIKV enfeksiyonunu baskılayabildiğini bulduk. Ancak çalışmamız ZIKV enfeksiyonunun DHCR7 ekspresyonunu indüklediğini ancak glial hücrelerde kolesterol biyosentezi üzerinde çok az etkisinin olduğunu ortaya çıkardı. ZIKV enfeksiyonu sonrası 7-DHC ifadesinin düzeyini incelemedik, ancak yine de 7-DHC ve AY9944'ün ZIKV ile enfekte olmuş hastaları tedavi etmek için sinerjik olarak terapötik bir etkinliğe sahip olup olmadığını daha fazla araştırmaya değer. beyinde enfeksiyon. DHCR7 aşırı ekspresyonu ZIKV enfeksiyonunu teşvik ederken, DHCR7 seçici inhibitör (AY9944) tedavisi ZIKV enfeksiyonuna karşı IFN üretimini güçlü bir şekilde arttırdı. TBK1 ve IRF3 aktivasyonu, IFN-I sinyalini hazırlamak için hayati öneme sahiptir. Önceki araştırma, DHCR7 susturmanın veya 7-DHC tedavisinin, makrofajlarda TBK1'i değil, IRF3'ü fosforile etmek için PI3K-AKT3 yolunu aktive ettiğini gösterdi (Xiao ve diğerleri, 2020). Bununla birlikte, bulgularımız DHCR7'nin hem IRF3 hem de TBK1 ekspresyonunun yanı sıra IRF3 ve TBK1 fosforilasyonunu doza bağlı olarak azalttığını gösterdi. Bu araştırmalar, DHCR7'nin beyindeki kolesterol metabolizmasından bağımsız bir mekanizmada ZIKV enfeksiyonuna katkıda bulunabileceğini öne sürdü. ZIKV'nin, bağışıklık tepkisinden kaçınmak ve viral replikasyonu kolaylaştırmak için RIG-I/IFN-I yolunun farklı bileşenleriyle doğrudan etkileşime girmek için NS proteinlerini kullandığı iyi bir şekilde açıklanmıştır. IFN üretimini azaltmak için ZIKV NS5'in RIG-I ile etkileşimini daha önce bildirmiştik (Li ve diğerleri, 2020). Diğerleri, ZIKV NS1 ve NS2B'nin TBK1'i, NS3'ün ise IFN-I ve ISG üretimini azaltmak için RIG-I ve MDA5'i hedeflediğini gösterdi (Lee ve diğerleri, 2021; Riedl ve diğerleri, 2019). Ancak ZIKV NS proteinlerinin kolesterol metabolizmasını hedef alan işlevi büyük ölçüde belirsizliğini koruyor. Bu çalışmada ayrıca kolesterol metabolik enzimi DHCR7 ile ZIKV NS proteinleri arasında bildirilmemiş bir etkileşimi de gösterdik. DHCR7'nin diğer NS proteinlerine değil, spesifik olarak NS4B'ye bağlandığını gösterdik. ZIKV NS4B'nin DHCR7 ile etkileşime girdiğine ve ekspresyonunu büyük ölçüde indüklediğine dair kritik kanıt sağladık; bu, ZIKV enfeksiyonu üzerine U251 hücrelerinde elde edilen sonuçlarla tutarlıydı. Önemli olarak, DHCR7 ve ZIKV NS4B'nin etkileşimini doğrudan göstermenin yanı sıra ZIKV NS4B'nin, TBK1 ve IRF3 fosforilasyonunu inhibe etmek ve ZIKV enfeksiyonunu kolaylaştırmak için DHCR7 ekspresyonunu arttırdığını da bulduk. Sonuçlarımızla uyumlu olarak yakın zamanda yapılan bir çalışma, DHCR7 eksikliğinin makrofajlardaki VSV ve diğer virüsleri inhibe etmek için IRF3 ve IFN sinyalini aktive edebildiğini ortaya çıkardı.

Şekil 3. DHCR7'nin yıkılması, U251 hücrelerinde ZIKV enfeksiyonunu azaltır. U251 hücreleri, DHCR7'ye (shDHCR7-1 ve sh-DHCR7-2) veya hedef olmayan bir diziye (sh-NTC) karşı shRNA içeren lentiviral parçacıklarla transdüksiyona tabi tutuldu, ardından 14 gün boyunca puromisin seçimi yapıldı. Devrilme verimliliği RT-PCR ile belirlendi. B, C DHCR7-susturucu U251 (sh-DHCR7) ve sh-NTC U251 hücreleri, 36 saat boyunca sahte enfekte veya ZIKV enfekte edildi (MOI=1). Hücre içi ZIKV RNA seviyesi, dahili kontrol (B) olarak GAPDH ile RT-PCR ile tespit edildi ve ZIKV zarfı, DHCR7 ve GAPDH'nin protein seviyeleri Western blot (C) ile tespit edildi. D, E U251 hücreleri, belirtilen konsantrasyonda 2 saat boyunca DHCR7 inhibitörü AY9944 ile tedavi edildi, ardından 48 saat boyunca ZIKV (MOI=1) ile enfeksiyon uygulandı. Hücreler ZIKV RNA'yı (D) saptamak için RT-PCR'ye tabi tutuldu. ZIKV zarfının, DHCR7 ve GAPDH'nin protein seviyeleri Western blot (E) ile tespit edildi. FU251 hücreleri, belirtilen konsantrasyonda 36 saat boyunca DHCR7 inhibitörü AY9944 ile muamele edildi ve DHCR7 ve GAPDH, Western blot ile tespit edildi. G, H Vero hücreleri, ZIKV kopyalarını plak tahlili ile belirlemek için 48 saat boyunca Şekil 3E'deki ZIKV içeren süpernatan ile enfekte edildi. I U251 hücreleri, belirtilen konsantrasyonda 2 saat boyunca AY9944 ile muamele edildi, ardından 36 saat boyunca MOI=1'de ZIKV ile enfeksiyon uygulandı. Görüntüler konfokal mikroskopi ile görselleştirildi. Ölçek çubuğu=100 μm. Veriler en az üç bağımsız deneyden (ortalama SD) veya temsili verilerden (C, E, F, G ve I) alınmıştır. İstatistiksel anlamlılık, Dunnett'in çoklu karşılaştırma testiyle (A, D, H) tek yönlü ANOVA veya Sidak'ın çoklu karşılaştırma testiyle (B) iki yönlü ANOVA kullanılarak hesaplanır. ***P < 0,001. SD, standart sapma.
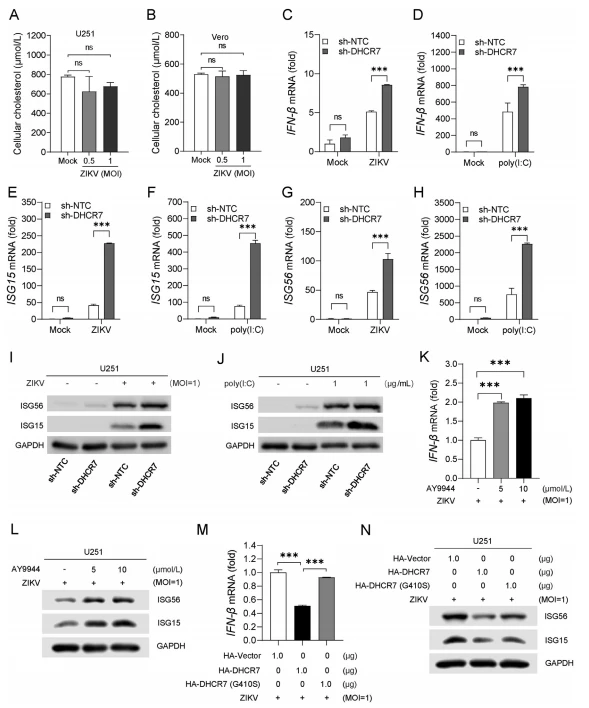
Şekil 4. DHCR7, IFN- ve ISG üretimini inhibe eder. A, B U251 ve Vero hücreleri, 24 saat boyunca ZIKV (MOI=0, 0.5 ve 1) ile enfekte edildi ve hücresel kolesterol, doku toplam kolesterol tahlil kiti ile ölçüldü. C–H DHCR7-susturucu U251 (sh-DHCR7) ve sh-NTC U251 hücreleri, ZIKV (MOI=1) ile enfekte edildi veya 6 saat boyunca Poly(I: C) (1 ug/mL) ile işlendi. Toplam hücresel RNA ekstre edildi ve dahili kontrol olarak GAPDH ile mRNA ekspresyonu için RT-PCR'ye tabi tutuldu. IFN- ve ISG'lerin göreceli ifadeleri, sahte gruptaki sh-NTC örneklerininkine göre normalleştirildi ve kat değişiklikleri düzensiz gösterildi. IFN- (C, D), ISG15 (E, F) ve ISG56 (G, H). I, J DHCR7-susturucu U251 (sh-DHCR7) ve sh-NTC U251 hücreleri, 24 saat boyunca ZIKV (MOI=1) ile enfekte edildi veya Poly(I: C) (1 ug/mL) ile transfekte edildi, ve ISG15, ISG56 ve GAPDH'nin protein seviyeleri Western blot ile tespit edildi. K U251 hücreleri, belirtilen dozda AY9944 ile 2 saat süreyle tedavi edildi, ardından 6 saat boyunca ZIKV (MOI=1) ile enfekte edildi. IFN-RNA seviyesi, dahili kontrol olarak GAPDH ile RT-PCR ile tespit edildi. LU251 hücreleri, belirtilen dozda AY9944 ile 2 saat süreyle tedavi edildi ve ardından 24 saat boyunca ZIKV (MOI=1) ile enfekte edildi. ISG15, ISG56 ve GAPDH'nin protein seviyeleri Western blot ile tespit edildi. M U251 hücreleri, 24 saat boyunca HA-vektörü, HA-DHCR7 veya HA-DHCR7 (G410S) ile transfekte edildi ve 6 saat boyunca ZIKV (MOI=1) ile enfekte edildi. IFN-RNA seviyeleri, dahili kontrol olarak GAPDH ile RT-PCR ile tespit edildi. NU U251 hücreleri, 24 saat boyunca HA-vektörü, HA-DHCR7 veya HA-DHCR7 (G410S) ile transfekte edildi ve ardından 24 saat boyunca ZIKV (MOI=1) ile enfekte edildi. ISG15, ISG56 ve GAPDH'nin protein seviyeleri Western blot ile tespit edildi. Veriler en az üç bağımsız deneyden (ortalama SD) veya temsili verilerden (I, J, L, N) alınmıştır. İstatistiksel anlamlılık, Dunnett'in çoklu karşılaştırma testi (A, B, K, M) ile tek yönlü ANOVA veya Sidak'ın çoklu karşılaştırma testi (C-H) ile iki yönlü ANOVA kullanılarak hesaplanır. ns, P > 0,05, ***P < 0,001. SD, standart sapma.

Şekil 5. DHCR7, TBK1 ve IRF3 aktivasyonunu inhibe eder. A, B HEK293T hücreleri, TBK1-kodlayıcı plazmid ile birlikte DHCR7-eksprese eden plazmid veya boş vektör (A) ile birlikte transfekte edildi. HEK293T hücreleri, IRF3-kodlayan plazmit, RIG-I kodlayan plazmit ve DHCR7-eksprese eden plazmit veya boş vektör (B) ile birlikte transfekte edildi. Hücreler transfeksiyondan 24 saat sonra toplandı ve belirtilen antikorlarla [anti-TBK1, anti-P-TBK1(S172), anti-IRF3, anti-PIRF3(S396), anti-HA ve anti-GAPDH) Western blot'a tabi tutuldu. ] C U251 hücreleri, 24 saat boyunca belirtilen dozda DHCR7 eksprese eden plazmit veya boş vektör ile transfekte edildi. Hücreler daha sonra enfeksiyondan 6 saat sonra hasat edilen ZIKV (MOI=1) ile enfekte edildi ve belirtilen antikorlarla [anti-TBK1, anti-P-TBK1(S172), anti-IRF3, anti-P-IRF3() ile Western blot'a tabi tutuldu. S396), anti-HA ve anti-GAPDH]. D U251 hücreleri, HA-vektörü, HA-DHCR7 veya HA-DHCR7 (G410S) ile 24 saat boyunca transfekte edildi. Hücreler daha sonra enfeksiyondan 6 saat sonra hasat edilen ZIKV (MOI=1) ile enfekte edildi ve belirtilen antikorlarla [anti-TBK1, anti-P-TBK1(S172), anti-IRF3, anti-PIRF3(S396) Western blot'a tabi tutuldu. , anti-HA ve anti-GAPDH]. E U251 hücreleri, 2 saat boyunca belirtilen AY9944 dozu ile tedavi edildi ve 6 saat boyunca ZIKV (MOI=1) ile enfekte edildi, ardından belirtilen antikorlarla [anti-TBK1, anti-P-TBK1(S172), anti-Western blot'a tabi tutuldu) -IRF3, anti-P-IRF3(S396) ve anti-GAPDH]. Veriler en az üç bağımsız deneyden alınmıştır ve temsili veriler (A – E) olarak gösterilmiştir.
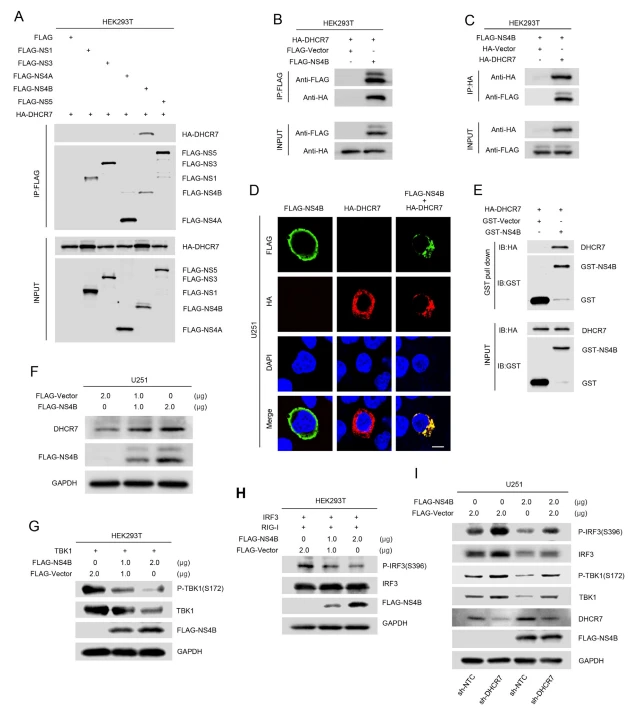
Şekil 6. ZIKV NS4B, TBK1 ve IRF3 fosforilasyonunu inhibe etmek için DHCR7 ile etkileşime girer. Bir HEK293T hücreleri, HA-DHCR7'yi kodlayan plazmidler ve ZIKV yapısal olmayan proteinleri (FLAG-NS1, FLAG-NS3, FLAG-NS4A, FLAG-NS4B ve FLAG-NS5) kodlayan plazmidler veya boş kontrol plazmidiyle 3 süre boyunca birlikte transfekte edildi. 0 sa. Hücre lizatları, Bayrak karşıtı antikorlarla imüno çökeltildi ve daha sonra belirtilen antikorlarla immünoblotlama yoluyla analiz edildi. B, C HEK293T hücreleri, HA-DHCR7'yi kodlayan plazmidler, FLAG-NS4B'yi kodlayan plazmidler veya boş kontrol plazmidiyle 30 saat boyunca birlikte transfekte edildi. Hücre lizatları, anti-HA antikoru (B) veya anti-FLAG antikoru (C) ile immüno-çökeltildi ve daha sonra belirtilen antikorlarla immünoblotlama yoluyla analiz edildi. D U251 hücreleri, HA-DHCR7'yi kodlayan plazmitlerle birlikte FLAG-NS4B plazmidi ile transfekte edildi. FLAG-NS4B (yeşil), HA-DHCR7 (kırmızı), çekirdek işaretleyici DAPI (mavi) ve birleştirmenin lokalizasyonu, konfokal mikroskopi ile analiz edildi. Ölçek çubuğu=10 μm. HA-DHCR7 ile transfekte edilmiş HEK293T hücrelerinden elde edilen E Hücre lizatları, glutatyon-Sefaroz boncukları ile inkübe edilen GST proteini veya GST-NS4B proteini ile inkübe edildi. Karışımlar, anti-HA ve anti-GST antikorları (üstte) içeren Western blot yöntemiyle tespit edildi. Transfekte edilmiş HEK293T hücrelerinden ve saflaştırılmış proteinlerden gelen lizatlar, anti-HA ve anti-GST antikorları (altta) ile Western blot ile tespit edildi. F U251 hücreleri, FLAG-NS4B'yi (0, 1, 2 ug) şifreleyen plazmid ile transfekte edildi. DHCR7, FLAG-NS4B ve GAPDH'nin göreceli protein seviyeleri Western blot ile tespit edildi. G, H HEK293T hücreleri, TBK1-kodlayan plazmid (F), IRF3-eksprese eden plazmit ve RIG-I (G)'yi kodlayan plazmidler ile birlikte NS4B eksprese eden plazmid veya boş vektör ile birlikte transfekte edildi . Hücreler transfeksiyondan 24 saat sonra toplandı ve belirtilen antikorlarla [anti-TBK1, anti-P-TBK1(S172), anti-IRF3, anti-P-IRF3(S396), anti-FLAG ve antiGAPDH) Western blot'a tabi tutuldu. ] I DHCR7-susturucu U251 (sh-DHCR7) ve sh-NTC U251 hücreleri, NS4B eksprese eden plazmit veya boş vektör ile transfekte edildi. Hücreler transfeksiyondan 6 saat sonra toplandı ve belirtilen antikorlarla [anti-TBK1, anti-P-TBK1(S172), anti-IRF3, anti-P-IRF3(S396), anti-FLAG ve antiGAPDH) Western blot'a tabi tutuldu. ] Veriler üç bağımsız deneyi temsil etmektedir.
5. Sonuçlar
Özetle önceki bir çalışma, kolesterol metabolizması enzimi DHCR7'nin çeşitli viral enfeksiyonlara karşı doğuştan gelen bağışıklık tepkisinde rol oynadığını ortaya çıkardı. Çalışmamız ZIKV NS4B'nin DHCR7 ile etkileşime girdiğini ve DHCR7 ekspresyonunu indüklediğini ortaya koydu. Artan DHCR7, TBK1 ve IRF3 aktivasyonunu büyük ölçüde inhibe eder ve IFN- ve ISG üretiminin azalmasına neden olur, bu da glial hücrelerde ZIKV enfeksiyonunu kolaylaştırır. Bu bulgular, ZIKV'nin NS4B ile DHCR7'yi doğrudan hedefleyerek bağışıklık tepkisinin üstesinden geldiği yeni bir viral bağışıklıktan kaçma mekanizmasını ortaya çıkardı.
Referanslar
Akula, MK, Shi, M., Jiang, Z., Foster, CE, Miao, D., Li, AS, Zhang, X., Gavin, RM, Forde, SD, Germain, G., Carpenter, S., Rosadini, CV, Gritsman, K., Chae, JJ, Hampton, R., Silverman, N., Gravallese, EM, Kagan, JC, Fitzgerald, KA, Kastner, DL, Golenbock, DT, Bergo, MO, Wang, D ., 2016. Doğuştan gelen bağışıklık tepkisinin mevalonat yolu ile kontrolü. Nat. İmmünol. 17, 922–929.
Berthoud, L., 2020. Flavivirüslerin kısıtlanması. Virol. Günah. 35, 363–377.
Blanc, M., Hsieh, WY, Robertson, KA, Kropp, KA, Forster, T., Shui, G., Lacaze, P., Watterson, S., Griffiths, SJ, Spann, NJ, Meljon, A., Talbot, S., Krishnan, K., Covey, DF, Wenk, MR, Craigon, M., Ruzsics, Z., Haas, J., Angulo, A., Griffiths, WJ, Glass, CK, Wang, Y. , Ghazal, P., 2013. Transkripsiyon faktörü STAT-1, makrofajlarda 25-hidroksikolesterol sentezini interferon antiviral yanıtıyla birleştirir. Bağışıklık 38, 106–118.
Cao-Lormeau, V.-M., Blake, A., Mons, S., Lastere, S., Roche, C., Vanhomwegen, J., Dub, T., Baudouin, L., Teissier, A., Larre, P., Vial, A.-L., Decam, C., Choumet, V., Halstead, SK, Willison, HJ, Musset, L., Manuguerra, J.-C., Despres, P., Fournier , E., Mallet, H.-P., Musso, D., Fontanet, A., Neil, J., Ghawche, F., 2016. Fransız Polinezyası'nda Zika virüsü enfeksiyonuyla ilişkili Guillain-Barre Sendromu salgını: bir olgu -kontrol çalışması. Lancet 387, 1531–1539.
Chazal, M., Beauclair, G., Gracias, S., Najburg, V., Simon-Loriere, E., Tangy, F., Komarova, AV, Jouvenet, N., 2018. RIG-I, 5'i tanıyor dang humması ve Zika virüsü genomları bölgesi. Hücre Temsilcisi 24, 320–328.
Chen, Q., Gouilly, J., Ferrat, YJ, Espino, A., Glaziou, Q., Cartron, G., El Costa, H., AlDakkak, R., Jabrane-Ferrat, N., 2020. Metabolik Zika virüsünün yeniden programlanması insan plasentasında iltihaplanmaya neden olur. Nat. İletişim 11, 2967. Dang, EV, McDonald, JG, Russell, DW, Cyster, JG, 2017. Oksisterolün kolesterol sentezini kısıtlaması, AIM2 inflamatuar aktivasyonunu önler. Hücre 171, 1057–1071 e1011.
Ding, Q., Cao, X., Lu, J., Huang, B., Liu, YJ, Kato, N., Shu, HB, Zhong, J., 2013. Hepatit C virüsü NS4B, STING ve TBK1, konağın doğuştan gelen bağışıklığından kaçacak. J. Hepatol. 59, 52–58.
Fanunza, E., Grandi, N., Quartu, M., Carletti, F., Ermellino, L., Milia, J., Corona, A., Capobianchi, MR, Ippolito, G., Tramontano, E., 2021 INMI1 Zika virüsü NS4B, STAT1 fosforilasyonunu baskılayarak interferon sinyalini antagonize eder. Virüsler 13, 2448.
Fitzgerald, KA, McWhirter, SM, Faia, KL, Rowe, DC, Latz, E., Golenbock, DT, Coyle, AJ, Liao, SM, Maniatis, T., 2003. IKKε ve TBK1, IRF3 sinyallemesinin temel bileşenleridir patika. Nat. İmmünol. 4, 491–496.
Fitzky, BU, Witsch-Baumgartner, M., Erdel, M., Lee, JN, Paik, Y.-K., Glossmann, H., Utermann, G., Moebius, FF, 1998. Δ{{'deki Mutasyonlar Smith-Lemli-Opitz sendromlu hastalarda 3}}sterol redüktaz geni. Proc. Natl. Acad. Bilim. ABD 95, 8181–8186.
Gorman, MJ, Caine, EA, Zaitsev, K., Begley, MC, Weger-Lucarelli, J., Uccellini, MB, Tripathi, S., Morrison, J., Yount, BL, Dinnon 3rd, KH, Ruckert, C ., Young, MC, Zhu, Z., Robertson, SJ, McNally, KL, Ye, J., Cao, B., Mysorekar, IU, Ebel, GD, Baric, RS, Best, SM, Artyomov, MN, Garcia -Sastre, A., Diamond, MS, 2018. Zika virüsü enfeksiyonunun bağışıklığı yeterli bir fare modeli. Hücre Konağı Mikrobu 23, 672–685.e6.
Grant, A., Ponia, SS, Tripathi, S., Balasubramaniam, V., Miorin, L., Sourisseau, M., Schwarz, MC, Sanchez-Seco, MP, Evans, MJ, Best, SM, Garcia-Sastre , A., 2016. Zika virüsü, tip I interferon sinyalini engellemek için insan STAT2'yi hedef alır. Hücre Konağı Mikrobu 19, 882–890.
Hertzog, J., Dias Junior, AG, Rigby, RE, Donald, CL, Mayer, A., Sezgin, E., Song, C., Jin, B., Hublitz, P., Eggeling, C., Kohl, A., Rehwinkel, J., 2018. Brezilya'daki bir Zika virüsü izolatıyla enfeksiyon, RIG-I uyarıcı RNA üretir ve viral NS5 proteini, tip I IFN indüksiyonunu ve sinyalini bloke eder. Avro. J. Immunol. 48, 1120–1136.
Horlick, L., 1966. Yeni bir kolesterol biyosentezi inhibitörünün (AY 9944) sıçandaki serum ve doku sterolleri üzerindeki etkisi. J. Lipid Res. 7, 116–121.
Ikonen, E., 2008. Hücresel kolesterol ticareti ve bölümlendirme. Nat. Rahip Mol. Hücre Biol. 9, 125–138.
Kato, H., Takeuchi, O., Sato, S., Yoneyama, M., Yamamoto, M., Matsui, K., Uematsu, S., Jung, A., Kawai, T., Ishii, KJ, Yamaguchi , O., Otsu, K., Tsujimura, T., Koh, CS, Reis e Sousa, C., Matsuura, Y., Fujita, T., Akira, S., 2006. MDA5 ve RIG-I'in farklı rolleri RNA virüslerinin tanınmasında helikazlar. Doğa 441, 101–105.
Kuan, V., Martineau, AR, Griffiths, CJ, Hypponen, E., Walton, R., 2013. Daha yüksek D vitamini durumuyla bağlantılı DHCR7 mutasyonları, insanın kuzey enlemlerine erken göçüne olanak sağladı. BMC Evol. Biyol. 13, 144.
Kumar, A., Hou, S., Airo, AM, Limonta, D., Mancinelli, V., Branton, W., Power, C., Hobman, TC, 2016. Zika virüsü, tip I interferon üretimini ve aşağı yöndeki akışı engeller sinyal verme. EMBO Temsilcisi 17, 1766–1775.
Lazear, HM, Govero, J., Smith, AM, Platt, DJ, Fernandez, E., Miner, JJ, Diamond, MS, 2016. Zika virüsü patogenezinin bir fare modeli. Hücre Konağı Mikrobu 19, 720–730. Lee, LJ, Komarasamy, TV, Adnan, NAA, James, W., Rmt Balasubramaniam, V., 2021. Saklambaç: Zika virüsü ile konakçının bağışıklık tepkisi arasındaki etkileşim. Ön. İmmünol. 12, 750365.
Leier, HC, Weinstein, JB, Kyle, JE, Lee, JY, Bramer, LM, Stratton, KG, Kempthorne, D., Navratil, AR, Tafesse, EG, Hornemann, T., Messer, WB, Dennis, EA, Metz, TO, Barklis, E., Tafesse, FG, 2020. Küresel bir lipid haritası, Zika virüsünün replikasyonu için gerekli olan bir ağı tanımlar. Nat. İletişim 11, 3652.
Li, A., Wang, W., Wang, Y., Chen, K., Xiao, F., Hu, D., Hui, L., Liu, W., Feng, Y., Li, G., Tan, Q., Liu, Y., Wu, K., Wu, J., 2020. Zika virüsünün RIG-I sinyalini kısıtlaması için NS5 konservatif bölgesi gereklidir. Ön. İmmünol. 11, 51.
Li, C., Deng, YQ, Wang, S., Ma, F., Aliyari, R., Huang, XY, Zhang, NN, Watanabe, M., Dong, HL, Liu, P., Li, XF, Ye, Q., Tian, M., Hong, S., Fan, J., Zhao, H., Li, L., Vishlaghi, N., Buth, JE, Au, C., Liu, Y., Lu , N., Du, P., Qin, FX, Zhang, B., Gong, D., Dai, X., Sun, R., Novitch, BG, Xu, Z., Qin, CF, Cheng, G. , 2017. 25- Hidroksikolesterol, bir fare modelinde konakçıyı Zika virüsü enfeksiyonuna ve bununla ilişkili mikrosefali'ye karşı korur. Bağışıklık 46, 446–456.
Liu, CI, Liu, GY, Song, Y., Yin, F., Hensler, ME, Jeng, WY, Nizet, V., Wang, AH, Oldfield, E., 2008. Bir kolesterol biyosentez inhibitörü, Staphylococcus aureus virülansını bloke eder . Bilim 319, 1391–1394.
Liu, SY, Aliyari, R., Chikere, K., Li, G., Marsden, MD, Smith, JK, Pernet, O., Guo, H., Nusbaum, R., Zack, JA, Freiberg, AN, Su, L., Lee, B., Cheng, G., 2013. İnterferon ile indüklenebilir kolesterol-25-hidroksilaz, 25- 25-hidroksikolesterol üretimi yoluyla viral girişi geniş ölçüde engeller. Bağışıklık 38, 92–105.
Luo, J., Yang, H., Song, BL, 2020. Kolesterol homeostazisinin mekanizmaları ve düzenlenmesi. Nat. Rahip Mol. Hücre Biol. 21, 225–245.
Luu, W., Hart-Smith, G., Sharpe, LJ, Brown, AJ, 2015. Kolesterol sentezinin terminal enzimleri olan DHCR24 ve DHCR7, fiziksel ve işlevsel olarak etkileşime girer. J. Lipid Res. 56, 888–897.
Ma, J., Ketkar, H., Geng, T., Lo, E., Wang, L., Xi, J., Sun, Q., Zhu, Z., Cui, Y., Yang, L., Wang, P., 2018. Zika virüsü yapısal olmayan protein 4A, RLR-MAVS sinyalini bloke eder. Ön. Mikrobiyol. 9, 1350. Moebius, FF, Fitzky, BU, Lee, JN, Paik, YK, Glossmann, H., 1998.
İnsan delta7-sterol redüktazının moleküler klonlanması ve ifadesi. Proc. Natl. Acad. Bilim. ABD 95, 1899–1902.
Munoz-Jordan, JL, Laurent-Rolle, M., Ashour, J., Martinez-Sobrido, L., Ashok, M., Lipkin, WI, Garcia-Sastre, A., 2005. Alfa/beta interferon sinyallemesinin inhibisyonu flavivirüslerin NS4B proteini tarafından. J. Virol. 79, 8004–8013.
Munoz-Jordan, JL, Sanchez-Burgos, GG, Laurent-Rolle, M., Garcia-Sastre, A., 2003. Dang virüsü tarafından interferon sinyallemesinin inhibisyonu. Proc. Natl. Acad. Bilim. ABD 100, 14333–14338.
Petersen, J., Drake, MJ, Bruce, EA, Riblett, AM, Didigu, CA, Wilen, CB, Malani, N., Erkek, F., Lee, FH, Bushman, FD, Cherry, S., Doms, RW, Bates, P., Briley Jr., K., 2014. Andes virüsü enfeksiyonu için ana hücresel sterol düzenleyici yol gereklidir. PLoS Patog. 10, e1003911.
Pierson, TC, Diamond, MS, 2020. Ortaya çıkan flavivirüslerin devam eden tehdidi. Nat. Mikrobiyol. 5, 796–812. Prabhu, AV, Luu, W., Li, D., Sharpe, LJ, Brown, AJ, 2016a. DHCR7: Kolesterol ve D vitamini üretimi arasında geçiş yapan hayati bir enzim. Prog. Lipid Res. 64, 138–151.
Prabhu, AV, Luu, W., Sharpe, LJ, Brown, AJ, 2016b. 7-Dehidrokolesterol redüktazın kolesterol aracılı bozunması, dengeyi kolesterolden D vitamini sentezine değiştirir. J. Biol. Kimya 291, 8363–8373. Randall, G., 2018. Dang virüsü enfeksiyonu sırasında lipit damlacık metabolizması. Trendler Mikrobiyol. 26, 640–642.
Rasmussen, SA, Jamieson, DJ, Honein, MA, Petersen, LR, 2016. Zika virüsü ve doğum kusurları – nedensellik kanıtlarının gözden geçirilmesi. N. İngilizce J. Med. 374, 1981–1987.
Reboldi, A., Dang, EV, McDonald, JG, Liang, G., Russell, DW, Cyster, JG, 2014. Enflamasyon. 25-Hidroksikolesterol, tip I interferonun aşağısındaki interlökin-1- kaynaklı inflamasyonu baskılar. Bilim 345, 679–684.
Riedl, W., Acharya, D., Lee, JH, Liu, G., Sherman, T., Chiang, C., Chan, YK, Diamond, MS, Gack, MU, 2019. Zika virüsü NS3, hücresel { {2}}RIG-I- ve MDA5-aracılı doğuştan gelen bağışıklığı antagonize etmeye yönelik bağlayıcı motif. Hücre Konağı Mikrobu 26, 493–503 e496.
Rodgers, MA, Villareal, VA, Schaefer, EA, Peng, LF, Corey, KE, Chung, RT, Yang, PL, 2012. Lipid metabolit profili, desmosterol metabolizmasını hepatit C virüsü için yeni bir antiviral hedef olarak tanımlar. J. Am. Kimya Sos. 134, 6896–6899. Savidis, G., Perreira, JM, Portmann, JM, Meraner, P., Guo, Z., Green, S., Brass, AL, 2016. IFITM'ler Zika virüsünün çoğalmasını engeller. Hücre Temsilcisi 15, 2323–2330.
Schneider, WM, Chevillotte, MD, Rice, CM, 2014. İnterferonla uyarılan genler: karmaşık bir konakçı savunma ağı. Annu. Rev. Immunol. 32, 513–545.


