Kanserde APOBEC3-aracılı Mutajenez:nedenler, Klinik Önem ve Tedavi Potansiyeli
Oct 17, 2023
Soyut
Apolipoprotein B mRNA düzenleyici enzim, katalitik polipeptitler (APOBEC'ler), doğal ve edinsel bağışıklıkta rol oynayan sitozin deaminazlardır. Bununla birlikte, bazı APOBEC ailesi üyeleri onkogenik mutasyonlar oluşturmak için konakçı genomlarını da deamine edebilir. Ortaya çıkan mutasyonlar, özellikle de imza 2 ve 13, birçok tümör türünde meydana gelir ve kanserde en yaygın mutasyon belirtileri arasındadır. Bu derleme, APOBEC3'lerin ana mutatörler olduğunu gösteren mevcut kanıtları özetlemekte ve APOBEC3 ekspresyonu ve mutasyon aktivitesinin eksojen ve endojen tetikleyicilerinin ana hatlarını çizmektedir. İnceleme ayrıca APOBEC3-aracılı mutajenezin, sürücü mutasyonları indüklemek ve tümörün bağışıklık mikro ortamını modüle etmek de dahil olmak üzere hem mutajenik hem de mutajenik olmayan yollar yoluyla tümör evrimini nasıl etkilediğini tartışıyor. Moleküler biyolojiden klinik sonuçlara doğru ilerleyen inceleme, APOBEC3'lerin kanser türleri arasındaki farklı prognostik önemini ve bunların mevcut ve gelecekteki klinik manzaralardaki terapötik potansiyellerini özetleyerek sonuçlanıyor.
Anahtar Kelimeler APOBEC'ler, Kanser, Somatik mutasyonlar, Germline genetiği, Tümör mikroçevresi, Biyobelirteçler, İmmünoterapi

Çin otu cistanche bitkisi-Antitümör
Arka plan
polipeptitler (APOBEC'ler), on bir birincil aile üyesine sahip bir sitozin deaminaz sınıfıdır: APOBEC1, Aktivasyonun İndüklediği Deaminaz (AID), APOBEC2, APOBEC3 (A-H) ve APOBEC4. APOBEC3B, APOBEC3H ve APOBEC3F'in alternatif eklenmesi APOBEC süper ailesini daha da çeşitlendirir [1-4]. Tüm APOBEC ailesi üyeleri korunmuş bir katalitik alanı paylaşsa da, farklı işlevlere, mutasyonel substratlara ve doku ekspresyon modellerine sahiptirler [5]. Örneğin AID, aktifleştirilmiş B hücrelerinde eksprese edilir ve immünoglobulin genlerini deamine ederek antikor çeşitlenmesini kolaylaştırır [6]. Buna karşılık, APOBEC1 ince bağırsakta eksprese edilir ve mRNA'yı, kesik fakat fonksiyonel olarak önemli bir gastrointestinal proteinin dokuya spesifik ekspresyonunu mümkün kılacak şekilde düzenler [7-9]. APOBEC3'ler insan dokularında çok daha yaygın şekilde eksprese edilir ve doğuştan gelen bağışıklık tepkisinin bir parçası olarak viral genomları deamine eder ve dolayısıyla hasar verir [10]. APOBEC3'ler hücreleri viral enfeksiyondan korusa da, aynı zamanda konakçı DNA'yı mutasyonlara karşı savunmasız hale getirir. APOBEC3-aracılı mutajenez, sitozin deaminasyonuyla başlar ve tüm APOBEC3'ler, değişen seviyelerde enzimatik aktiviteyle tek iplikçikli DNA'yı (ssDNA) deamine edebilir [11-13]. APOBEC3'lere yönelik ssDNA substratları, DNA replikasyonu, transkripsiyon ve genomik onarım gibi normal hücresel işlemler sırasında çift sarmallı genomda geçici olarak ortaya çıkabilir. Örneğin, hem APOBEC3A hem de APOBEC3B, DNA replikasyonu sırasında gecikmeli iplik şablonlarını deamine edebilir [14-16]. APOBEC3A ayrıca DNA replikasyonu sırasında oluşan saç tokası ilmekleri üzerinde de etkili olabilirken, APOBEC3B tercihen transkripsiyon sırasında R ilmeklerini deamine eder [17, 18]. APOBEC3G, transkripsiyon sırasında, özellikle 5′ UTR'ler içinde, ssDNA üzerinde benzer şekilde etki gösterebilir [15]. Ek olarak, APOBEC3G'nin katlanmamış ve gevşek bir şekilde katlanmış ssDNA'yı deamine ettiği gösterilmiştir (Şekil 1) [19].

Şekil 1 APOBEC3-aracılı mutajenez için mekanizmalar ve tercih edilen substratlar. Üst panel: APOBEC3'ler ssDNA'yı deamine ederek urasil'i DNA şablonunda bırakır. Hatalı replikasyon ve onarım yolları daha sonra 2 ve 13 numaralı mutasyon imzalarını oluşturabilir. Translezyon sentezi (TLS) polimeraz REVI ile onarım, bir C-G mutasyonu (imza 13) oluştururken, DNA polimeraz δ, DNA polimeraz gibi diğer enzimler tarafından onarım yapılır. ε ve TLS polimeraz κ bir C-T mutasyonu oluşturur (imza 2) [20]. Alt panel: APOBEC3 süper ailesi arasındaki ana mutatörler, esas olarak trinükleotid bağlamı ve ssDNA ikincil yapısı tarafından tanımlanan farklı substrat tercihlerine sahiptir.
SsDNA içerisinde çeşitli APOEBC3'ler, farklı trinükleotid bağlamlarında sitozinleri deamine eder. Örneğin, ana mutatörler olan APOBEC3A ve APOBEC3B, tiaminden önceki sitozin (TpC) motiflerini deamine eder; APOBEC3A tercihen pirimidinleri takip eden TpC motifleri üzerinde etki gösterirken, APOBEC3B pürinlerden sonra TpC motiflerini deamine etme eğilimindedir [20-23]. Deaminasyonun ardından farklı hücresel süreçler, COSMIC'de sırasıyla imza 2 ve 13 olarak tanımlanan C-toT ve C-to-G mutasyonlarını oluşturabilir [24-26]. Önceki C'den T'ye geçiş daha yaygındır ve urasil içeren DNA şablonlarının anormal replikasyonundan kaynaklanırken, her iki ikame de urasil glikosilaz aktivitesi tarafından üretilen abazik bölgelerin hatalı onarımı yoluyla meydana gelebilir (Şekil 1) [20, 27-29. ] Geleneksel olarak tanımlanan bu APOBEC3-indüklenen mutasyon imzalarına ek olarak APOBEC3G, TCC, GCC, CCC, CCT ve GCG motiflerinde C'den T'ye geçişlere neden olabilir (Şekil 1) [30]. APOBEC3-'in neden olduğu mutasyonlar kanserde her yerde bulunur ve genom boyunca veya kümeler halinde dağılmış şekilde meydana gelebilir. Tümör genomlarındaki kataegislerin %75'inden fazlası APOBEC3 aktivitesine atfedilirken, %15'i daha yaygın omikli hipermutasyona atfedilmiştir [31, 32]. Genel olarak, APOBEC3-indüklü mutasyonlar, tümör mutasyon yükünün %68'e kadarını oluşturabilir ve tüm tümörlerin yarısından fazlasında bulunur; Yalnızca yaşa bağlı imzalar daha yaygındır [26, 27, 33]. APOBEC3-indüklediği bu değişikliklerin çoğu, onkogenleri ve tümör baskılayıcıları etkileyen oldukça tekrarlayan sürücü mutasyonlardır ve APOBEC3'ler ayrıca tümör mikroçevresindeki bağışıklık modülasyonu gibi mutajenik olmayan yollar yoluyla da hastalığın seyrini etkileyebilir.
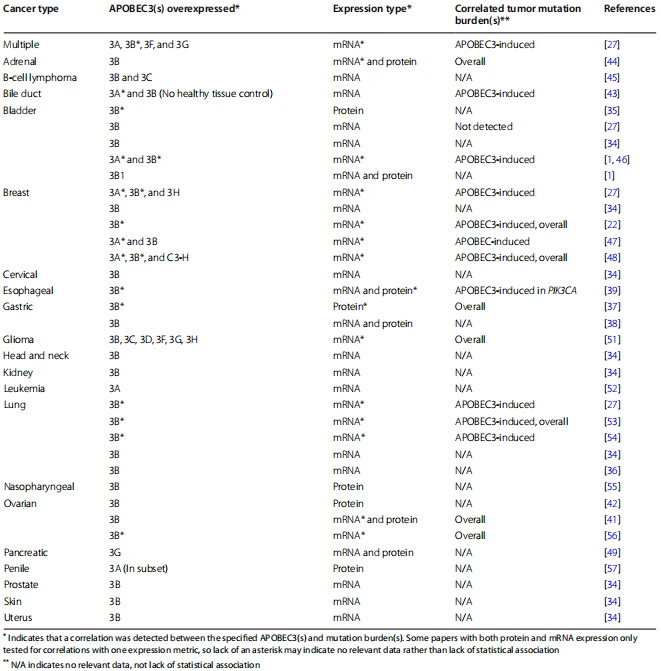
Tablo 1 APOBEC3'lerin aşırı ekspresyonu ve kanserlerdeki mutasyon yükü ile korelasyonu
APOBEC3'ler, bağışıklık sistemiyle aktifleşen veya bağışıklık sistemi baskılanmış fenotipleri destekleyebilir; bu, kanser türleri arasında değişen prognostik önemlerini kısmen açıklayabilir. Klinik ilişkilere ve klinik öncesi çalışmalara dayanarak APOBEC3'ler biyobelirteçler olarak kullanılabilir ve tedaviler için hedeflenebilir. APOBEC3-aracılı mutajenezin nedenleri ve klinik sonuçları bu nedenle önemli araştırma alanlarıdır ve bu incelemenin odak noktasıdır.
APOBEC3'lerin kanserlerde ifadesi
APOBEC3'ler birçok sağlıklı dokuda düşük seviyelerde eksprese edilir, ancak tümörlerde sıklıkla aşırı eksprese edilir. Çoğu çalışmada APOBEC3 ekspresyonunu tespit etmek için RNA bazlı profil oluşturma kullanılmış ve protein bazlı analizler daha sınırlı olmuştur (Tablo 1). APOBEC3B genellikle diğer APOBEC3 ailesi üyelerinden daha yüksek seviyelerde eksprese edilir ve birden fazla kanserin analizi sekiz tümör tipinde APOBEC3B'nin zenginleştiğini tespit etti: mesane, meme, baş ve boyun, akciğer adenokarsinomu, akciğer skuamöz hücreli karsinomu, prostat, berrak hücreli böbrek, ve rahim [34]. Karşılaştırma için sağlıklı doku mevcut olmasa da, rahim ağzı ve cilt kanserlerinde de yüksek APOBEC3B ekspresyonu gözlendi [34]. Benzer şekilde mesane, safra kanalı, akciğer, mide, özofagus, nöroendokrin ve yumurtalık tümörlerinde yüksek APOBEC3B düzeyleri rapor edilmiştir [35-43]. Diğer APOBEC3'lerin ekspresyonu da kanserde düzensiz olabilir. Örneğin APOBEC3G, kolon ve pankreas tümörlerinde yüksek seviyelerde bulunmuştur [49, 50]. Meme kanserinde çalışmalar APOBEC3A, APOBEC3B ve APOBEC3H'nin zenginleştiğini tespit etmiştir [27, 48]. Çoklu hematolojik kanserlerde de yüksek APOBEC3 ekspresyonu gözlemlenmiştir. Örneğin, lösemide APOBEC3A zenginleşmesi kaydedilmiştir ve hem APOBEC3B hem de APOBEC3C, primer efüzyon lenfomada yüksek seviyelerde bulunmuştur [45, 52].

Cistanche tubulosa'nın faydaları-Antitümör
Başlıca değiştiriciler olarak APOBEC3A ve APOBEC3B
APOBEC3 aşırı ekspresyonu muhtemelen mutajenezi teşvik eder, çünkü birçok çalışma APOBEC3 ekspresyonu ile imzaya özgü mutasyon yükü arasındaki korelasyonları tanımlamıştır (Tablo 1). Çoklu tümör tiplerinin birleştirilmiş analizinde, APOBEC3B ekspresyonu, daha yüksek APOBEC3- kaynaklı mutasyon yüküyle güçlü bir şekilde ilişkilendirildi; APOBEC3A, APOBEC3F ve APOBEC3G benzer ancak daha zayıf korelasyonlar gösterdi [27]. Yüksek APOBEC3B ekspresyonu ayrıca akciğer kanserinde daha fazla APOBEC3- kaynaklı mutasyonla ilişkilendirilirken, hem APOBEC3A hem de APOBEC3B seviyeleri meme kanserinde APOBEC3- kaynaklı mutasyonlarla koreleydi [22, 47, 53, 54]. APOBEC{19}}indüklü mutasyon yüklerinin en yüksek olduğu mesane kanserinde de benzer ilişkiler gözlemlenmiştir [1, 27, 34, 46]. Kolanjiyokarsinomda, yalnızca APOBEC3A ekspresyonu APOBEC3-indüklü mutasyon yüküyle ilişkilendirilmiştir [43]. Bu korelasyonlar APOBEC3A ve APOBEC3B'nin her ikisinin de mutageneze katkıda bulunduğunu göstermektedir, ancak bu aile üyelerinin göreceli önemi tartışmalı olmaya devam etmektedir [47, 58]. APOBEC3B'nin çoğu tümörde daha yüksek ekspresyonu göz önüne alındığında genellikle ana mutatör olduğu varsayılmaktadır [22, 26, 34-36, 45, 48, 59]. Bununla birlikte, APOBEC3A daha yüksek enzimatik aktiviteye sahiptir ve bu da genel olarak daha düşük doku ekspresyonuna rağmen daha fazla mutasyon üretmesine izin verebilir [47, 60]. Buna göre, APOBEC3 nakavt hücre dizilerinin bir karşılaştırması, APOBEC3A eksikliğinin mutajenez üzerinde en büyük etkiye sahip olduğunu buldu [58]. Bu sonuç, APOBEC3A ve APOBEC3B'nin indüklediği mutasyonları ilk kez ayırt eden ve ilkinin tümör genomlarında daha bol olduğunu bulan mayadaki daha önceki bulguları desteklemektedir [23]. Ayrıca APOBEC3A'yı baskın bir mutatör olarak dahil ederek, APOBEC3B'nin 5′ UTR'sine kaynaşmış APOBEC3A kodlama bölgesinin bir kimerasını üreten bir APOBEC3B germ hattı silinmesi, bazı kanserlerde daha fazla APOBEC kaynaklı mutasyonla ilişkilendirilmiştir [61-64]. Diğer APOBEC3 ailesi üyeleri, hem APOBEC3A'yı hem de APOBEC3B'yi devre dışı bırakmasına rağmen, 2 ve 13 imzalarının edinilmesinin devam ettiğini (önemli ölçüde azalmış olsa da) in vitro bir analizde tespit edildiğinden muhtemelen mutasyonları indüklemektedir [58]. APOBEC3H, özellikle güçlü enzimatik aktiviteye ve artan nükleer lokalizasyona sahip olan APOBEC3H haplotip I'e sahip kanserlerde bu rezidüel mutageneze katkıda bulunabilir [65]. APOBEC3G aynı zamanda mutajenik de olabilir çünkü ifadesi farklı bir mutasyon imzasıyla ilişkilendirilmiştir [30]. Çoklu APOBEC3'ler bu nedenle kanserde mutasyonlara neden olabilir; en önemli mutasyonlar potansiyel olarak tümörler arasında değişiklik gösterir.
APOBEC3 aracılı mutajenezin eksojen ve endojen tetikleyicileri
Viral enfeksiyon
APOBEC3'ler, polyomavirüsler, parvovirüsler, herpesvirüsler ve hepatit B virüsleri dahil olmak üzere çok çeşitli virüsler tarafından indüklenen interferonla uyarılan genlerdir [66]. Virüsle ilişkili kanserlerin çoğu, bu nedenle, 2 ve 13 numaralı mutasyon imzalarının yüksek yüküne sahiptir. Örneğin rahim ağzı kanseri, vakaların %95'inden fazlasında insan papilloma virüsünden (HPV) kaynaklanır ve bol miktarda APOBEC3-indüklü mutasyona sahiptir [67 , 68]. APOBEC kaynaklı mutasyonlar baş ve boyun skuamöz hücreli karsinomunda da (HNSCC) yaygındır ve HPV pozitifliği ile mutasyon imzaları 2 ve 13 arasında güçlü bir korelasyon vardır [69]. Viral enfeksiyon, geleneksel olarak virüsle ilişkili olduğu anlaşılmayan bazı kanserlerde APOBEC{14}}aracılı mutageneze de katkıda bulunabilir. "Vur ve kaç" hipotezine göre viral enfeksiyon, tümör oluşumunda erken dönemde APOBEC3 aktivitesini tetikleyebilir ancak tümör tespitinden önce temizlenir [70]. BK polyomavirus (BKPyV)-pozitif idrar öyküsünün artan mesane kanseri riski ile ilişkili olması nedeniyle bu varsayım bazı mesane kanseri vakaları için geçerli olabilir [71]. BKPyV enfeksiyonunun, normal insan ürotelyumunun in vitro modelinde APOBEC3 ekspresyonunu ve deaminasyon aktivitesini indüklediği de gösterilmiştir [72]. BKPyV'nin neden olduğu mesane karsinogenezinin potansiyel riski, bağışıklık sistemi baskılanmış popülasyonlarda, özellikle organ nakli alıcılarında özellikle yüksek olabilir. Buna göre, BKPyV viremisi veya diğer polyomavirüs ile ilişkili komplikasyonlar, böbrek transplantasyonunu takiben dört kat daha yüksek mesane kanseri riski ile ilişkilendirilmiştir [73-77].
Organ nakli alıcılarından alınan mesane tümörü genomlarının derin dizilimi de BKPyV entegrasyonunu ortaya çıkarmıştır [78-80]. Bazı viral enfeksiyonlar, geleneksel olarak viral olmayan bazı kanserlerde APOBEC3-aracılı mutageneze katkıda bulunabilirken, tümör evriminin sonlarında ve muhtemelen enfeksiyonun temizlenmesinden sonra APOBEC3-indüklü mutasyonların ediniminin devam ettiği göz önüne alındığında, ek faktörler muhtemelen önemlidir. [22, 56, 81, 82]. Bu tür viral olmayan faktörler, vur-kaç viral etiyolojisinin daha az olası olduğu kanserlerde APOBEC{10}}kaynaklı mutasyonların yaygınlığını da açıklayabilir.
erkekler için cistanche faydaları-bağışıklık sistemini güçlendirir
Cistanche Enhance Immunity ürünlerini görüntülemek için buraya tıklayın
【Daha fazlasını isteyin】 E-posta:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Enflamasyon
Sayısız faktör inflamasyonu indükleyebilir ve bu da önemli bir inflamatuar yol olan NF-κB sinyali yoluyla APOBEC3 ekspresyonunu arttırabilir. Bu hipotezi destekleyen, APOBEC3B promoterinde üç NF-κB bağlanma bölgesi tespit edilmiştir ve kanonik NF-κB yolunun bir parçası olan p65/p50 ve p65/c-Rel heterodimerlerinin APOBEC3B transkripsiyonu için önemli olduğu kanıtlanmıştır [83] . APOBEC3B promotörü bir RelB bağlanma bölgesi içerdiğinden, kanonik olmayan NF-κB sinyali APOBEC3 ifadesini de düzenleyebilir. LPS ve IL-4 gibi bilinen çok sayıda APOBEC3 indükleyicisi aynı zamanda güçlü NF-κB aktivatörleridir; bu da NF-κB'nin iltihaplanma sırasında APOBEC3'lerin transkripsiyonel sürücüsü olduğunu gösterir [84]. NF-κB sinyallemesi ayrıca pro-inflamatuar aracıların transkripsiyonu yoluyla dolaylı olarak APOBEC3 ekspresyonunu artırabilir. Örneğin, NF-κB hedef geni IL-6'nin, hepatoselüler karsinomda JAK/STAT sinyali yoluyla APOBEC3B ekspresyonunu indüklediği gösterilmiştir [85, 86]. Benzer şekilde, TNF-'nin keratinositlerde APOBEC3A ekspresyonunu teşvik ettiği bulunmuştur [87, 88]. Bu bulguları doğrulayan kolanjiyokarsinom ve safra kesesi kanseri üzerine yapılan bir çalışmada, hem APOEBC3A hem de APOBEC3B'nin IL-6 ve TNF'ye maruz kalma ile yukarı regüle edildiği bulunmuştur [43]. Ek olarak IFN-'nin, mesane tümörleri ve akciğer adenokarsinomunda APOBEC3B ekspresyonunun itici gücü olduğu gösterilmiştir [46, 89]. NF-κB sinyallemesi (hem doğrudan APOBEC3 transkripsiyonu yoluyla hem de dolaylı olarak diğer inflamatuar aracılar aracılığıyla etki etme yeteneğiyle) bu nedenle kanserde APOBEC{44}}aracılı mutajenezin olası bir itici gücüdür (Şekil 2). NF-κB'nin bu APOBEC{46}}uyarıcı rolü, yüksek düzeyde iltihaplı mikro ortamlara sahip immünolojik açıdan "sıcak" tümörlerde özellikle önemli olabilir.
İlaca maruz kalma ve replikasyon stresi
Belirli ilaçlara maruz kalma aynı zamanda APOBEC3-aracılı mutajenezi de tetikleyebilir ve bleomisin, sisplatin, etoposid, 5-florourasil, gemsitabin, hidroksiüre, afidikolin, kamptotesin gibi kemoterapilerin hepsinin kanserde APOBEC3 ekspresyonunu indüklediği gösterilmiştir. hücre çizgileri [1, 61, 90, 91]. NF-κB sinyali muhtemelen bu ilaçların bazılarına yanıt olarak APOBEC3 indüksiyonuna aracılık eder, ancak replikasyon stresi ve PI3K sinyali de önemli bir rol oynayabilir (Şekil 2) [1, 90, 92, 93]. APOBEC3 ekspresyonunu artırmanın yanı sıra, genotoksik ilaçlar, genomik hasarı indükleyerek ve dolayısıyla ssDNA substratları oluşturarak APOBEC{16}}aracılı mutajenezi daha da güçlendirebilir (Şekil 3). Genotoksik ilaçların yokluğunda bile kanser hücreleri, birikmiş DNA hasarı ve spesifik onkogenik mutasyonlar nedeniyle APOBEC3-indükleyici replikasyon stresi yaşayabilir. Örneğin meme kanserinde PTEN tükenmesi ve HER2 amplifikasyonunun replikasyon stresini indüklediği ve in vitro APOBEC3B aktivitesini arttırdığı gösterilmiştir [90]. Akciğer kanserinde, replikasyon stresine neden olan yaygın bir genetik değişiklik olan FHIT1 kaybı, daha yüksek APOBEC3- kaynaklı mutasyon yüküyle ilişkilendirilmiştir [53]. Bu replikasyon stresini tetikleyen mutasyonlar, APOBEC{26}}aracılı mutajenezin özellikle güçlü tetikleyicileri olabilir, çünkü bunlar, viral enfeksiyon veya ilaca maruz kalma sonrasındaki daha geçici APOBEC3 indüksiyonunun aksine kalıcı hücresel değişikliklere neden olurlar. Pozitif bir geri besleme döngüsünde, artan APOBEC3 ekspresyonu, ek DNA hasarı, yavaşlayan replikasyon çatalları ve hücre döngüsü durması nedeniyle replikasyon stresini şiddetlendirebilir [52, 97-99]. Replikasyon stresi bağlamında, APOBEC3'ler - özellikle APOBEC3B - daha yaygın mutasyon modellerinden ziyade özellikle kataegise neden olmaya eğilimli olabilir. Buna göre APOBEC3B'nin telomer krizi sırasında kanser hücre hatlarında kataegisi indüklediği gösterilmiştir [94]. APOBEC3B, p{37}}eksik hücre hatlarında kataegis ile benzer şekilde ilişkiliydi ve bir pan-kanser analizi, APOBEC3B ekspresyonunun kataegis ile pozitif korelasyon gösterdiğini buldu [31, 99].

cistanche tubulosa-bağışıklık sistemini iyileştirir
Somatik ve germ hattı değişiklikleri
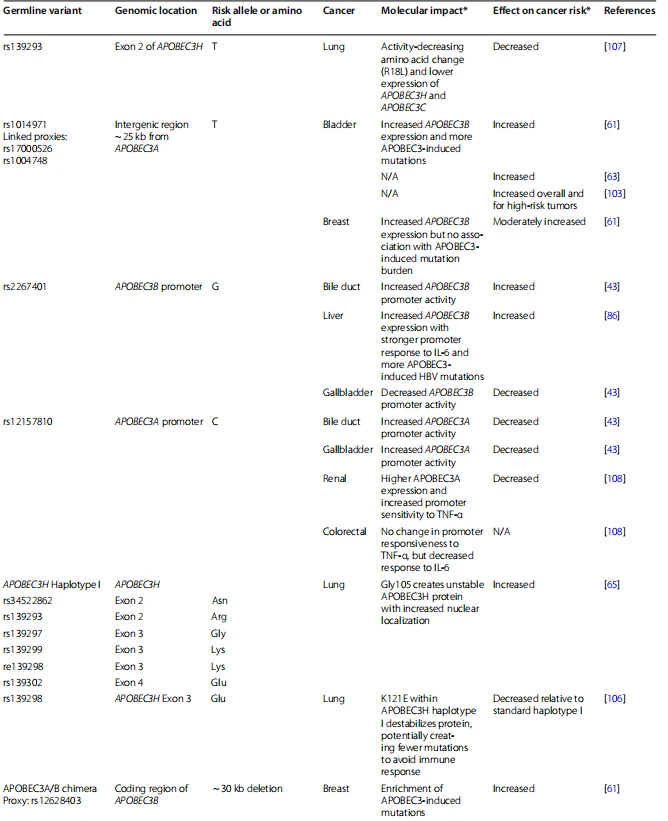
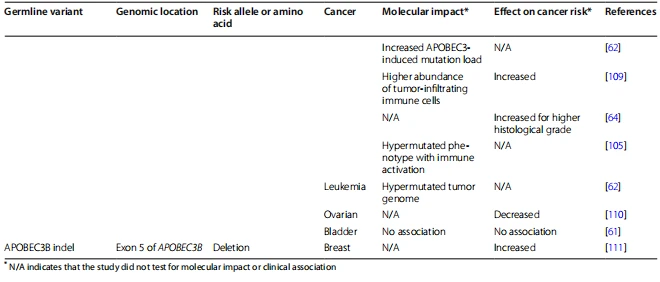
Çoklu genlerdeki somatik mutasyonlar, artan APOBEC{0}}aracılı mutajenez ile ilişkilendirilmiştir, ancak tam genom dizileme analizleri, APOBEC3'lerin kodlama veya düzenleyici bölgelerinde tekrarlayan somatik tek nükleotid varyantlarını tespit etmemiştir [100, 101]. APOBEC3'lerin deaminasyon aktivitesini artıran somatik mutasyonlar, artan promotör veya güçlendirici aktivite yoluyla APOBEC3 ekspresyonunu değiştiren mutasyonlar gibi bu nedenle olası değildir. Ancak kanserlerde kopya sayısı amplifikasyonuna bağlı olarak APOBEC3 ekspresyonunda artış meydana gelebilir. Yalnızca bir kanser türünde belirtilmesine rağmen, akciğer tümörlerinin ~%30'unda APOBEC3 kopya sayısı değişimi bulunmuştur [36, 102]. Bu genetik değişiklik, artan APOBEC3B ekspresyonu ve daha yüksek APOBEC kaynaklı mutasyon yükü ile ilişkilendirilmiştir [36]. APOBEC3 gen lokusundaki germline varyantları daha yaygın görünmektedir ve APOBEC3 ekspresyonunu ve kanser riskini etkileyebilir. Örneğin, APOBEC3 gen kümesinin üst akışında yer alan tek nükleotid polimorfizmi (SNP) rs1014971, artan APOBEC3B ekspresyonu, APOBEC{21}} kaynaklı mutasyonların zenginleşmesi ve daha yüksek mesane kanseri riski ile ilişkilidir [61, 63, 103]. Meme kanserinde, APOBEC3A/B kimera üreten bir delesyon polimorfizmi, artan hastalık riski, daha fazla APOBEC{26}}uyarılmış mutasyon ve zayıf tümör farklılaşması (negatif prognozun bir işareti) ile ilişkilidir [47, 61, 62, 64 , 104, 105]. Aynı delesyon polimorfizmi, akut lenfoblastik lösemide APOBEC3-indüklü hipermutasyona katkıda bulunabilir [62]. Akciğer kanserinde, APOBEC3H haplotip I'i tanımlayan altı SNP'nin kombinasyonu, artan hastalık riski ile ilişkilendirilmiştir [65] (Tablo 2). Bu haplotip içindeki genetik çeşitlilik akciğer kanseri riskini daha da artırabilir [106]. Ek olarak, rs2267401 varyantının safra kesesi kanseri ve hepatoselüler karsinom riskini arttırdığı gösterilmiştir, bunun nedeni muhtemelen artan promoter aktivitesi ve IL-6 yanıtı yoluyla ortaya çıkan artan APOBEC3B ekspresyonudur [43, 86]. Buna karşılık, aynı SNP rs2267401, muhtemelen transkripsiyonel baskılayıcı TFAP2A'nın aşırı ekspresyonuna bağlı olarak kolanjiyokarsinom riskinde azalma ve bu tümör tipinde düşük APOBEC3B promotör aktivitesi ile ilişkilendirilmiştir [43]. Diğer bir varyant olan rs12157810'un da APOBEC3A promoter aktivitesini arttırdığı bulunmasına rağmen daha düşük kolanjiokarsinom ve safra kesesi kanseri riski ile ilişkilendirilmiştir [43]. Böbrek kanserinde uyumlu sonuçlar gözlendi [108]. Başka bir SNP rs139293, akciğer kanseri riskinin azalmasıyla ilişkilendirilmiştir [107]. Bir eksonda yer alan bu varyant, APOBEC3H'de potansiyel olarak aktiviteyi azaltan bir amino asit değişikliği yaratır ve APOEBC3H ve APOBEC3C'nin ekspresyonunu azaltabilir [107] (Tablo 2).

Şekil 2 APOBEC3 Genlerinin transkripsiyonel düzenlenmesi. NF-κB sinyali, endojen ve ekzojen APOBEC3 tetikleyicileri için ortak bir yoldur. APOBEC3'leri indüklemek için, NF-κB sinyali doğrudan APOBEC3'lerin transkripsiyonu yoluyla ve dolaylı olarak diğer iltihaplı aracıların transkripsiyonu yoluyla etki eder. Temel iltihaplı aracılar arasında NF-κB ve JAK/STAT sinyalleme yoluyla APOBEC3 transkripsiyonunu yönlendirebilen interferonlar, TNF- ve IL-6 yer alır. Ek olarak replikasyon stresi, APOBEC3 ifadesini teşvik etmek için PI3K/Akt yoluyla NF-κB sinyalini etkinleştirebilir

Şekil 3 APOBEC3-aracılı mutajenez için iki faktörlü model. İki faktörlü bir modelde, APOBEC3-aracılı mutajenez, hem APOBEC3 ifadesinin indüksiyonuna hem de ssDNA'nın kullanılabilirliğine ihtiyaç duyar. İlaca maruz kalma, telomer krizi ve DNA onarım süreçleri gibi faktörler ssDNA oluşturabilirken, transkripsiyonel tetikleyiciler APOBEC3 ekspresyonunu yukarı doğru düzenleyebilir [94-96]
Retrotranspozon aktivitesi, telomer krizi ve DNA hasarı
Kanser hücreleri genellikle APOBEC{0}}aracılı mutajenezi birden çok farklı yol yoluyla besleyebilen kararsız genomlara sahiptir. Spesifik olarak, genomik kararsızlık retrotranspozon aktivitesini teşvik edebilir ve dolayısıyla APOBEC3-aracılı mutajenezin epizodik patlamalarını tetikleyebilir [112]. Genomik istikrarsızlık aynı zamanda APOBEC3B tarafından deamine edilen ssDNA sınır noktalarını ürettiği gösterilen telomer krizi ve kromotripsis ile de ilişkilidir [94] (Şekil 3). APOBEC3-aracılı mutajenez, DNA hasarının neden olduğu replikasyon stresi ve ssDNA ara maddeleri üreten homolog olmayan uç birleştirme (NHEJ) ve homolog rekombinasyon (HR) gibi ilişkili uyumsuzluk onarım süreçleri sırasında APOBEC3'lerin yukarı regülasyonu ile tetiklenebilir [90 , 95, 96, 113–116] (Şek. 3). APOBEC3'ler gecikmeli zincir şablonlarını deamine edebildiğinden, hızla bölünen kanser hücreleri sıklıkla ssDNA'ya maruz kalabilir ve dolayısıyla APOBEC3- aracılı mutajenezi ateşleyebilir [14]. Kanser hücrelerindeki bu endojen süreçler, eksojen tetikleyicilere maruz kalmadan tümör evriminin sonlarında APOBEC3-indüklü mutasyonların sürekli olarak edinilmesini sağlayabilir [81]. DNA hasarının ve ssDNA substrat mevcudiyetinin önemi, APOBEC3'lerin neden birçok sağlıklı dokuda düşük seviyelerde eksprese edildiğini ve tipik olarak önemli tümör genomu benzeri mutasyon modellerine neden olmadığını da açıklayabilir. Sağlıklı yemek borusu veya endometrial bez dokusunda APOBEC3- kaynaklı önemli mutasyon yükleri tespit edilmemiştir, ancak kanserli olmayan bağırsak kriptaları ve bronşiyal epitel hücrelerinden oluşan bir alt grupta bu tür mutasyonların düşük seviyeleri bulunmuştur [59, 117-120 ] APOBEC3 aktivitesi için iki faktörlü bir model bu nedenle birçok kanserde makuldür; yüksek APOBEC3 ekspresyonu ve önceden mevcut DNA hasarının her ikisi de APOBEC{32}}aracılı mutajenez için gereklidir (Şekil 3).
Sigara içmek?
Sigara içmek, yüksek APOBEC3- kaynaklı mutasyon yüküne sahip birden fazla kanser için önemli bir risk faktörüdür. Örneğin sigara içmek mesane kanseri riskinin %50'sinden fazlasını oluşturur ve akciğer tümörlerinin %80-90'ına neden olduğu tahmin edilmektedir [121, 122]. Sigara içmek en güçlü şekilde 4, 5 ve 29 numaralı mutasyon imzalarıyla ilişkilidir, ancak birçok çalışma tütün maruziyetinin aynı zamanda APOBEC3- kaynaklı 2 ve 13 numaralı imzalarla da bağlantılı olup olmadığını test etmiştir [24-26, 123, 124]. Ancak sonuçlar çelişkili olmuştur. Akciğer adenokarsinomu analizinde, sigara içenlerden alınan tümörlerde 2 ve 13. imzalar zenginleştirilmiştir [123]. Mesane kanserinde imza 13, eski sigara içenlerden alınan tümörlerde zenginleştirilmiştir [125]. Bununla birlikte, yalnızca kasa invaziv mesane tümörlerinin ayrı bir analizi, imza 13'ün sigara içmeyenlerde zenginleştiğini ve imza 5 ile negatif korelasyon gösterdiğini buldu [124]. Ek olarak, normal insan ürotelyumu üzerinde yapılan bir in vitro çalışma, sigara dumanında bulunan bir prokarsinojen olan benzo[a]piren'e maruz kalmanın 2 veya 13 numaralı imzayı tetiklemediğini buldu. Bununla birlikte, bu çalışmanın yalnızca bir prokarsinojen kullanması nedeniyle sınırlamaları vardır. tütün dumanı yaklaşık 60 kanserojen içerir [126]. Sigara içmek APOBEC{29}}aracılı mutajenezi artırıyorsa, bu etki muhtemelen ssDNA substrat kullanılabilirliğini artıran genelleştirilmiş DNA hasarından kaynaklanmaktadır [123]. Tütünün nikotin bileşeni inflamasyonu ve NF-kB sinyalini indükleyebilmesine rağmen, tütün dumanının APOBEC3 ekspresyonunu doğrudan arttırdığına dair bir kanıt yoktur. Küçük hücreli dışı akciğer kanseri üzerine yapılan tek bir çalışma bu hipotezi test etti ancak sigara içme ile APOBEC3B mRNA ekspresyonu arasında hiçbir ilişki bulamadı [54]. Bununla birlikte, APOBEC{36}}aracılı mutajenezin geniş ölçüde işlevsel olduğu kanserler için yaygın bir risk faktörü olarak sigara içmenin yaygınlığı, sigara içme ile APOBEC3'ler arasındaki etkileşimleri ayırt etmeyi zorlaştırabilir.
Tablo 2 APOBEC3'leri ve kanser riskini etkileyen germ hattı varyantları
Tablo 2 (devam)
APOBEC3'lerin mutajenik ve mutajenik olmayan yollar yoluyla etkisi APOBEC3'ün neden olduğu onkogenik kodlama mutasyonları
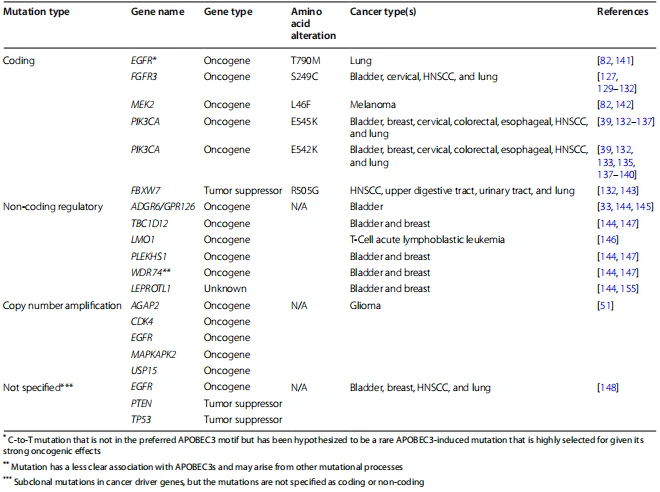
APOBEC3-indüklü mutasyonlar kanserde her yerde bulunur ve onkogenleri aktive ederek veya tümör baskılayıcıları etkisiz hale getirerek karsinojenezi tetikleyebilir (Tablo 3). Örneğin, APOBEC3-indüklenen FGFR3 S249C mutasyonu (mesane kanserinde en yaygın FGFR3 mutasyonu), hücre proliferasyonunu teşvik etmek üzere kodlanmış büyüme faktörü reseptörünün yapısal aktivasyonuna neden olur [127, 128]. Diğer tümör tiplerinde daha az tekrarlasa da, S249C akciğer, serviks ve baş-boyun kanserlerinde de tespit edilmiştir [129-132]. APOBEC3-indüklenen mutasyonlar, reseptörleri aktive etmenin yanı sıra, yüksek derecede onkogenik mutasyon sinerjileri oluşturmak için aşağı yöndeki sinyal yollarını da etkileyebilir. Örneğin APOBEC3-indüklü PIK3CA E545K mutasyonu, büyümeyi teşvik eden PI3K yolunun anormal aktivasyonuna neden olur ve mesane, meme, servikal, kolorektal, özofagus, baş ve boyun ve akciğer tümörlerinde tespit edilmiştir [39, 132–137]. Oldukça benzer PIK3CA E542K mutasyonu mesane, meme, servikal, kolorektal, özofagus, baş ve boyun ve akciğer kanserlerinde bulunmuştur [39, 132, 133, 135, 137-140]. APOBEC3-indüklü ve diğer onkogen aktive edici mutasyonlar, tümör baskılayıcı genlerdeki ek mutasyonların varlığında kanser hücrelerinin kontrolsüz çoğalmasına izin verebilir; bunların bir kısmı APOBEC3-aracılı mutajenezden kaynaklanır. Örneğin, etkisizleştirici R505G FBXW7 mutasyonu APOBEC3'lere atfedilebilir ve HNSCC, üst sindirim sistemi kanserleri, idrar yolu kanserleri ve akciğer kanserlerinde tespit edilmiştir [132, 143]. Mesane, meme, baş ve boyun ve akciğer tümörlerinde tümör baskılayıcı genler PTEN ve TP53'te subklonal APOBEC3-indüklü mutasyonlar da gözlemlenmiştir [148]. Diğer mutasyon süreçleri de tümör baskılayıcıları etkisiz hale getirebilir ve yüksek APOBEC3 aktivitesi, bu tür mutasyonları destekleyen seçici bir baskı oluşturabilir. APOBEC3'ler yüksek bir genel tümör mutasyon yükü oluşturur, dolayısıyla tümör baskılayıcı mutasyonlar nedeniyle bozulmuş DNA hasar tepkisine (DDR) sahip hücrelerin apoptozu önleme ve çoğalmaya devam etme olasılığı daha yüksektir. Buna göre, çoğunlukla APOBEC{42}}kaynaklı olmayan TP53 mutasyonları mesane kanserlerinde, akciğer adenokarsinomlarında ve APOBEC{44}}indüklü mutasyonların yüksek olduğu B hücreli lenfoma hücre hatlarında daha yaygındı [46, 89 , 149]. Benzer şekilde, yüksek APOBEC3B ekspresyonu, meme kanseri ve adrenokortikal karsinomda daha fazla p53 mutasyonu ile ilişkilendirilmiştir [22, 44]. Seçim baskısına ek olarak, p53, p21 ve DREAM proteinleri yoluyla APOBEC3B transkripsiyonunu baskılayabildiğinden, bu eğilim p{53}}mutasyona uğramış tümörlerdeki daha yüksek APOBEC3 ekspresyonundan kaynaklanabilir [150].
Tablo 3 Kanserde tekrarlayan APOBEC3-indüklenen somatik mutasyonlar ve kopya sayısı değişiklikleri
Tekrarlayan APOBEC3 kaynaklı kodlamayan mutasyon
latuvar bölgeler de oldukça tekrarlayıcıdır ve kanserle ilişkili genlerin ekspresyonunu modüle ederek tümör gelişimine katkıda bulunabilir (Tablo 3). Örneğin, birçok mesane ve meme tümörü, invazif hastalık ve kötü prognoz ile ilişkili potansiyel onkogenler olan PLEKHS1 ve TBC1D12 promotörlerinde APOBEC3- ile indüklenen "ikiz mutasyon sıcak noktaları" barındırır [33, 144, 147, 151, 152 ] Anjiyogenezde yer alan APOBEC3-indüklü ADGR6/GPR126 güçlendirici mutasyonları mesane kanserinde de tespit edilmiştir [33, 145]. Mesane kanserinde APOBEC3'lere atfedilebilen kodlamayan mutasyonlara sahip diğer genler arasında LEPROTL1 ve potansiyel olarak tümör baskılayıcı WDR74 yer alır [144, 153, 154]. Ek olarak, birçok T hücreli akut lenfoblastik lösemi, onkogen LMO1 için transkripsiyon başlangıç bölgesinin yukarısında APOBEC3- ile indüklenen bir mutasyonu barındırır [146]. Bu tür birkaç mutasyonun işlevsel olduğu ve meme kanserinde potansiyel onkogenik role sahip olduğu bulunmuştur [155]. Bununla birlikte, kodlamayan genler arası ve promoter bölgelerde APOBEC{28}}aracılı mutajenezi neyin tetiklediği keşfedilmemiştir, ancak muhtemelen DNA replikasyonu ve transkripsiyonun başlatılması sırasında meydana gelir.
APOBEC3'ler, düzenleyici bölgelerde nokta mutasyonları oluşturmanın yanı sıra, artan onkogen kopya sayısını teşvik ederek gen ekspresyonunu daha da düzensiz hale getirebilir (Tablo 3). Örneğin, daha yüksek APOBEC3 ekspresyonu, gliomada ATP2B4, MAPKAPK2 ve USP15 gibi çoklu Ras/MAPK düzenleyici genlerin kopya sayısı varyasyonunun artmasıyla ilişkilendirilmiştir [51]. Her ikisi de bilinen onkogenler olan EGFR ve CDK4'ün amplifikasyonu, APOBEC3-yüksek gliomalarda da gözlemlenmiştir [51]. APOBEC3'lerin kopya numarası değişikliklerini kolaylaştırdığı mekanizmalar hala bilinmemektedir. Bununla birlikte, APOEBC3-indüklenen kataegisin kromozomal dengesizliği ve çift sarmallı kırılmaları teşvik ederek kopya numarası değişiklikleri için fırsatlar yaratması akla yatkındır [156, 157].
Cistanche tubulosa'nın faydaları-Antitümör
Tümör evrimi
Although some APOBEC3-induced mutations are likely important for initial tumor formation, many occur later in tumor evolution. Supporting this paradigm, episodic bursts of APOBEC3-mediated mutagenesis were observed during prolonged culture of numerous cancer cell lines [81, 112]. This repeated APOBEC3 activity can create a high overall tumor mutation burden and fuel subclone heterogeneity in a tumor context. Accordingly, APOBEC3s have been identified as primary drivers of subclonal mutations in bladder, breast, head neck, and lung cancers [48, 148]. In bladder cancer, over 45% of subclonal mutations in driver genes may be attributable to APOBEC3s [148]. Additionally, APOBEC3-induced mutation load has been strongly associated with tumor heterogeneity in metastatic thoracic cancers [89]. APOBEC3-induced tumor heterogeneity can promote resistance to cancer therapies. While the continued acquisition of signatures 2 and 13 is often part of natural tumor evolution, chemotherapy treatment may further fuel APOBEC3-mediated mutagenesis by triggering APOBEC3 expression and inducing DNA damage [1, 81, 90, 91]. Specific therapy resistance mutations can also arise due to APOBEC3 activity. For example, the APOEBC-induced MEK2 L46F mutation may confer resistance to BRAF inhibitors such as vemurafenib and dabrafenib in melanoma [82, 142]. In lung cancer, the potentially APOBEC3-induced C>T EGFR T790 mutasyonu, EGFR inhibitörleri gefitinib ve erlotinib'e karşı direnci arttırabilir [82, 141]. Benzer şekilde, nükseden dirençli multipl miyelomda gözlenen bazı APOEBC3- ile indüklenen mutasyonlar, tedavi direncinin kazanılmasına katkıda bulunabilir [158]. Mutajenik olmayan yollar APOBEC3-indüklenen mutasyonlar, tümör oluşumunun önemli etkenleridir, ancak APOBEC3'ler aynı zamanda mutajenik olmayan yollar yoluyla da kanserde rol oynayabilir. Bu yolakların önemini örnekleyen bir hepatoselüler karsinom çalışması, katalitik olarak aktif olmayan APOBEC3B'nin aşırı ekspresyonunun hücre çoğalmasını, hücre göçünü ve in vitro hücre istilasını arttırdığını buldu [159]. K-Ras mutasyonlarının varlığında, APOEBC3A ayrıca pankreatik duktal adenokarsinomun fare modeline dayanarak STING'e bağımlı metastazı ve kromozomal instabiliteyi destekleyebilir [157]. Katalitik olarak aktif olmayan APOBEC3B'nin aşırı ekspresyonu ayrıca daha sık "G1 kaçışı" ile ilişkilendirilmiştir; bu da APOBEC3B'nin hücre döngüsü düzensizliğine katkıda bulunduğunu düşündürmektedir [159]. Mesane kanserinde benzer APOBEC3B aracılı hücre döngüsü ilerlemesi gözlemlenmiştir [159, 160]. APOBEC3'ler ayrıca çoklu mekanizmalar yoluyla hücre ölümünü de inhibe edebilir: APOBEC3G'nin, pankreas kanserinde Akt aktivasyonu yoluyla anoikis'i inhibe ettiği gösterilmiştir ve APOBEC3B'nin, PDCD2 fonksiyonunu inhibe ederek ve ATM ve Chk1/2 aktivitesini düşürerek mide kanserinde hücre ölümünü azaltabileceği gösterilmiştir [38, 49]. Ek olarak APOBEC3'ler, epigenetik eşleşmiş mekanizmalar yoluyla onkogenlerin ve tümör baskılayıcıların ekspresyonunu etkileyebilir. Örneğin, APOBEC3B'nin, geçici kromatin yeniden yapılanması yoluyla meme kanserinde östrojen reseptörünün (ER) aşırı ekspresyonunu yönlendirdiği gösterilmiştir [161]. APOBEC{33}}aracılı epigenetik düzenlemeye dair daha fazla kanıt sağlayan yüksek APOBEC3B ekspresyonu, özofagus kanserinde daha fazla LINE1 metilasyonu (küresel DNA metilasyonu için bir proxy) ile ilişkilendirilmiştir [39].
Tümör bağışıklık mikro ortamının modülasyonu
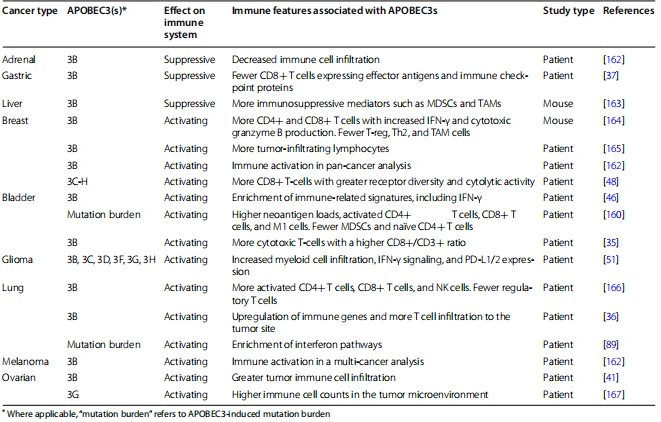
APOBEC3'ler ayrıca tümör immün mikro ortamını şekillendiren mutajenik olmayan yollar yoluyla tümör büyümesini de etkileyebilir (Tablo 4). APOBEC3'ler bazı kanserlerde immün baskılayıcıdır ve daha yüksek APOBEC3B ekspresyonu, adrenokortikal karsinom ve mide kanserinde daha az immün hücre infiltrasyonu ile ilişkilendirilmiştir [37, 162]. APOBEC3 ekspresyonu aynı zamanda hepatoselüler karsinomun bir fare modelinde miyeloid türevli baskılayıcı hücreler (MDSC'ler) ve tümörle ilişkili makrofajlar (TAM'ler) gibi immünosüpresif medyatörlerin daha fazla infiltrasyonu ile ilişkilendirilmiştir [163]. APOBEC3'lerin bağışıklık aktivasyonunu teşvik etmesiyle diğer kanser türlerinde de ters etki gözlemlendi. Bir pan-kanser analizinde, yüksek APOBEC3B ekspresyonu kutanöz melanom ve meme kanserinde artan immün aktivasyon ile ilişkilendirilmiştir [162]. Meme kanseriyle ilgili ek çalışmalar da benzer sonuçlar buldu. Yüksek APOBEC3B ekspresyonu, daha fazla tümör şişiren lenfosit ile ilişkilendirilmiştir ve APOBEC3B indüksiyonu, bir fare modelinde güçlü bir T hücresi aracılı bağışıklık tepkisine yol açmıştır [164, 165]. APOBEC3C-H seviyeleri aynı zamanda tümör mikroçevresindeki daha fazla CD8+ T hücresi, artan T hücresi reseptör çeşitliliği ve daha yüksek sitolitik aktivite ile de ilişkiliydi [48, 64]. Mesane kanserinde de benzer bağışıklık aktivasyonu gözlemlenmiştir; çok sayıda çalışma, APOBEC{26}}yüksek tümörlerde artan bağışıklık imzalarını ve interferon sinyalini saptamıştır [35, 46, 160]. Akciğer kanserinde, T hücresi aracılı bağışıklık aktivasyonu, yüksek APOBEC3B ekspresyonu veya yüksek APOBEC3- kaynaklı mutasyon yükleriyle bağlantılıydı [36, 166]. Yumurtalık kanserinde yüksek APOBEC3B ve APOBEC3G ekspresyonu, daha fazla immün hücre infiltrasyonu ile ilişkilendirilmiştir [41, 167]. Tümörün kendisinde olmasa da, artan APOBEC3A ekspresyonunun makrofaj polarizasyonunu proinflamatuar, immün aktive edici bir duruma kaydırdığı gösterilmiştir [168].
Tablo 4 APOBEC3'lerin kanser türüne göre immün modüle edici etkileri
APOBEC3'lerin kanserlerde klinik ve terapötik önemi
Çoklu kanserlerde kötü prognozla ilişki
İmmünosupresyon, bazı kanserlerde APOBEC{0}}aracılı mutajenez ile sinerji oluşturarak, onkogenik mutasyonların birikmesine ve konakçının bağışıklık tepkisini önlerken tümör oluşumuna yol açmasına izin verebilir. Bu modele uygun olarak, her ikisi de APOBEC3'lerle immünosupresyon gösteren adrenokortikal karsinom ve mide kanserinde yapılan çalışmalar, daha yüksek APOBEC3B ekspresyonunun daha kısa hayatta kalma ile ilişkili olduğunu bulmuştur (Tablo 4 ve 5) [37, 38, 44]. Yüksek APOBEC3 ekspresyonu aynı zamanda nazofaringeal karsinom, berrak hücreli renal karsinom ve nöroendokrin tümörlerdeki olumsuz klinik sonuçlarla da ilişkilendirilmiştir, ancak bu kanserlerdeki APOBEC3-aracılı immün etkiler hakkında çok az şey bilinmektedir (Tablo 5) [55, 169] . Yüksek APOBEC3 ekspresyonu veya indüklenen mutasyon yükü, bazı raporlarda tutarsız sonuçlar bulunmasına rağmen, meme kanserindeki olumsuz sonuçları da öngörebilir (Tablo 5). APOBEC3'ler meme kanserinde immün aktivasyonu indüklediğinden, tümör oluşumuna neden olmak için bu artan immün tepkisinin üstesinden gelmek için ek faktörler gereklidir (.4). APOBEC3B'nin meme kanserinde ER aşırı ekspresyonunu teşvik ettiği gösterildiğinden, daha fazla östrojen reseptör aktivasyonu (ER) olası bir mekanizmadır [161]. Buna göre, yüksek APOBEC3B ekspresyonu ile olumsuz klinik sonuçlar arasındaki ilişkiler ER+ hastalığında daha güçlüdür (Tablo 5).
Tablo 5 APOBEC3 ekspresyonu ve APOBEC3-indüklü mutasyonların kanser türüne göre klinik sonuçlarla ilişkisi

Tablo 5 (devam)


Şekil 4 APOBEC3-indüklenen faktörlerin prognoz üzerindeki etkileri kanser türleri arasında farklılık göstermektedir. APOBEC3'ler, hastalığın seyri üzerinde zıt etkilere sahip olabilecek mutajenik ve mutajenik olmayan yollar yoluyla tümör oluşumunu etkileyebilir. Bu etkilerin göreceli gücü, APOBEC3'lerin prognostik önemini belirleyebilir ve APOBEC3'lerin kanser türüne göre değişen klinik etkilerini açıklayabilir (Tablo 5). Belirli kanser türlerinin örnekleri gösterilmektedir.
APOBEC3'lerin geleneksel olarak tedavi edilen akciğer kanserlerinde benzer şekilde zararlı etkileri vardır. İmmünoterapi bağlamı dışında, birçok çalışma APOBEC3B ekspresyonunun veya indüklenen mutasyon yükünün agresif hastalık veya kötü prognoz ile ilişkili olduğunu bulmuştur (Tablo 5). Akciğer kanserinde, terapi direncini destekleyen APOBEC3-indüklü mutasyonlar gibi ek faktörlerin, kötü klinik sonuçlara yol açacak şekilde APOBEC3-aracılı immün aktivasyonundan daha ağır basması muhtemeldir [141] (Şekil 4).
Olumlu immünoterapi ve platin bazlı tedavi sonuçlarıyla ilişki
Akciğer kanserinde, APOBEC{0}}aracılı bağışıklık aktivasyonu, bağışıklık kontrol noktası blokaj tedavilerine verilen yanıtın artmasıyla ilişkilendirilmiştir (Tablo 5). Tamamı APOBEC3'lerle immün aktivasyon sergileyen meme, mesane ve akciğer kanserlerinde immünoterapi tepkisi için benzer sonuçlar gözlemlenmiştir (Tablo 4 ve 5). Bu kanserlerde, APOBEC3-aracılı bağışıklık aktivasyonu muhtemelen yüksek APOBEC3- kaynaklı neoantijen yüküyle sinerji oluşturarak immünoterapi yanıtını artırır (Şekil 4) [164, 187]. APOBEC3'ler aynı zamanda mide kanserinde immünoterapiye verilen yanıtın artmasıyla da ilişkilidir, ancak bu kanser tipi paradoksal olarak APOBEC3'lerle immünosupresyon göstermiştir [37]. Mevcut veriler biraz belirsiz olsa da, APOBEC3'ler geleneksel kemoterapiyle bile mesane kanseri sağkalımının iyileşmesini kolaylaştırabilir (Tablo 5). Mesane kanseri sıklıkla APOBEC3'lerin varlığında arttırılmış aktiviteye sahip olabilen DNA alkilleyici ajan sisplatin ile tedavi edilir. Mekanik olarak, APOBEC3'ler ilaca bağlı ekstrahelikal sitozinleri deamine ederek sisplatin tepkisine aracılık edebilir ve APOBEC3B, kemoterapinin neden olduğu uyumsuzluk onarımı sırasında daha fazla genotoksik etkiye neden olabilir [188]. Ek olarak APOBEC3'ler, hücreleri ek sisplatin kaynaklı DNA hasarına karşı duyarlı hale getiren yüksek bir arka planda mutasyon yükü oluşturabilir. Bununla birlikte, APOBEC3'lerin mesane kanserindeki klinik faydası, daha yüksek APOBEC3B ekspresyonunun kas invaziv olmayan hastalıktan kas invazif hastalığa ilerlemesine katkıda bulunabilmesi nedeniyle ileri evre hastalıkla sınırlı olabilir [1]. APOBEC3'ler benzer şekilde platin bazlı tedaviler sisplatin ve karboplatin kullanılarak mesane kanseri gibi tedavi edilen yumurtalık kanserlerinde iyileşen klinik sonuçlarla ilişkilendirilmiştir (Tablo 5). Örneğin, yüksek APOBEC3- kaynaklı mutasyon yükü, berrak hücreli yumurtalık karsinomu hastalarında ilerlemesiz ve genel sağkalımın iyileşmesiyle ilişkilendirildi [186]. Yüksek APOBEC3 ekspresyonu, yüksek dereceli seröz yumurtalık tümörü alt tiplerinde sağkalımın artmasıyla ilişkilidir [41, 42, 167]. Mesane kanserinde olduğu gibi, yumurtalık kanserinde de APOBEC{42}} ile ilişkili bu hayatta kalma yararları muhtemelen bağışıklık aktivasyonundan ve platin bazlı tedavilere artan yanıttan kaynaklanmaktadır (Şekil 4).
Biyobelirteçler olarak APOBEC3'ler
APOBEC3 ekspresyonu ve APOBEC3-indüklenen mutasyon yükü, birden fazla kanser ve tedavi bağlamındaki klinik sonuçlarla ilişkilendirilmiştir ve bu da bunların prognostik biyobelirteçler olarak kullanımını mantıklı hale getirmektedir (Tablo 5). Sisplatin/karboplatin ile tedavi edilen kanserlerle ilgili çeşitli çalışmalar, APOBEC3'ler ile olumlu sonuçlar arasındaki ilişkileri bildirmiştir; dolayısıyla APOBEC3'ler, bu yaygın kemoterapi için biyobelirteçler olarak daha fazla değerlendirilmeyi hak etmektedir [41, 46, 61, 167, 170, 186]. APOBEC3'ler ayrıca akciğer, mesane ve meme kanserlerine ilişkin mevcut veriler dikkate alındığında immünoterapi için biyobelirteçler olarak da kullanılabilir [37, 160, 166, 174, 180, 181]. Bu klinik ilişkilere ek olarak, çok sayıda klinik öncesi çalışma, APOBEC3'lerin potansiyel platin bazlı tedavi ve immünoterapi biyobelirteçleri olduğu iddiasını desteklemiştir (Tablo 6). Ayrıca APOBEC3'ler hedefe yönelik tedaviler için özellikle verimli biyobelirteçler olabilir (Tablo 6). Yüksek APOBEC3B ekspresyonu, gliomadaki Raf inhibitörlerine zayıf yanıtla ilişkilendirilmiştir ve bazı APOBEC{26}} kaynaklı mutasyonlar, sırasıyla multipl miyelom ve akciğer kanserinde Raf inhibitörlerine ve EGFR inhibitörlerine direnci öngörebilir [82, 158]. ER+ meme kanserinde yüksek APOBEC3B ekspresyonu, endokrin tedavisi olan tamoksifene direnci öngörebilir [192]. Klinik öncesi çalışmalara dayanarak, APOBEC3'ler ayrıca hedeflenen replikasyon kontrol noktasına ve DDR inhibitörlerine, muhtemelen sitotoksik DNA hasarını indükleyen sentetik güvenlik açıklarından dolayı olumlu bir yanıt öngörebilir [52, 99, 157, 191]. Genel olarak, hasta tümörlerinin APOBEC3 ekspresyonu veya indüklenen mutasyon yükü açısından test edilmesinin tedavi kararlarına rehberlik edebileceğine dair ikna edici kanıtlar vardır. Ancak laboratuvardan kliniğe önemli bir boşluk vardır ve "APOBEC pozitifliğini" tanımlayan anlamlı parametrelerin oluşturulması önemli olacaktır. Bu amaçla gelecekteki çalışmaların, sonunda klinik deneylerde kullanılabilecek APOEBC3 ekspresyonunu veya mutasyon imza puanlarını değerlendirmesi gerekecektir. PD-L1/PD1 ve genel tümör mutasyon yükü için skorlama ve profil oluşturma sistemleri rehberlik amacıyla kullanılabilir [195-199].
Kanser terapötikleri için APOBEC3'lerin inhibisyonu
APOBEC3'ler tümör oluşumunu mutajenik değil mutajenik yollardan yönlendirebildiğinden, APOBEC3'leri spesifik ancak muhtemelen çok sayıda onkogenik bağlamda inhibe etmek faydalı olabilir (Tablo 6). Örneğin, APOBEC3 inhibitörleri, kas invazif olmayan mesane kanserinin, APOBEC3- kaynaklı mutasyon yükünün daha yüksek olduğu kas invaziv hastalığa ilerlemesini potansiyel olarak önleyebilir [1, 200]. APOBEC3 inhibitörleri, özellikle ortaya çıkan STING inhibitörleriyle kombinasyon halinde STING'e bağlı metastazı da yavaşlatabilir [157, 201]. APOBEC3G'nin inhibe edilmesi aynı zamanda anoikis'i de destekleyebilir çünkü APOBEC3'lerin bu hücre ölümü biçimini bozduğu gösterilmiştir [49]. Ek olarak APOBEC3 inhibitörleri, özellikle APOBEC3'lerin kötü prognozu öngördüğü kanserlerde, tümör evrimini, alt klon heterojenliğini ve kemoterapi direncini sınırlamak için kullanılabilir [82, 148]. APOBEC3 inhibitörleri şu anda klinik kullanım için mevcut değildir, ancak APOBEC3 enzimlerinin moleküler yapılarının çözülmesindeki son gelişmeler, bu ilaç sınıfının nihai gelişimi için önemli bir temel oluşturmuştur [202]. Katekol kısımlarına sahip birden fazla bileşiğin APOBEC3G'yi inhibe ettiği, kimyasal modifikasyonların APOBEC3A'nın daha sınırlı hedeflemesini desteklediği gösterilmiştir [203]. AID, APOBEC3A ve APOBEC3B'nin katalitik ceplerini hedefleyebilen, yakın zamanda tanımlanmış bir küçük molekül inhibitörü de rapor edilmiştir ve her APOBEC enzimine özgü inhibitörlerin tasarımına rehberlik edebilir [205]. Küçük molekül inhibitörlerine ek olarak, APOBEC3 aktivitesini azaltmaya yönelik diğer potansiyel stratejiler arasında gen susturma tedavileri, ssDNA içeren 2'-deoksizebularin analogları ve alternatif birleştirme modülatörleri yer alır [204]. İkinci yaklaşım mümkündür çünkü bazı APOBEC3 izoformları mutajenik değildir ve SF3B1 inhibisyonunun, ekson 5 atlamasını indükleyerek ifadeyi mutajenik olmayan bir APOBEC3B izoformuna kaydırdığı gösterilmiştir [1]. Ek olarak, nükleosid takviyesi ve chk1 inhibisyonu yoluyla replikasyon stresinin hafifletilmesinin in vitro APOBEC3B ekspresyonunu azalttığı gösterilmiştir [90].
Tablo 6 APOBEC3'lerin biyobelirteçleri ve terapötik potansiyeli
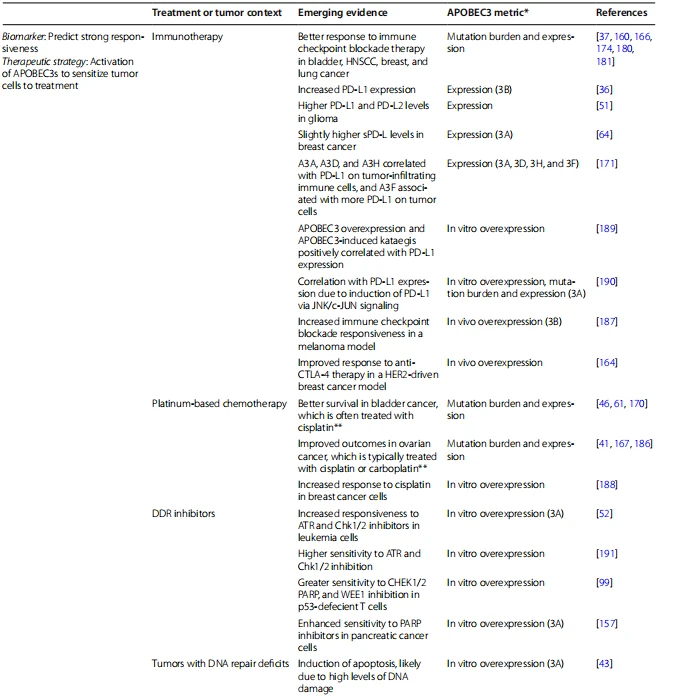
Tablo 6 (devamı)

Kanser terapötikleri için APOBEC3'lerin aktivasyonu
APOBEC3'lerin inhibe edilmesi birçok kanserde faydalı olabilirken, bazı bağlamlarda APOBEC3 aktivitesinin arttırılmasına yönelik görünüşte mantığa aykırı bir strateji benzersiz bir terapötik fırsat sunabilir. Örneğin APOEBC3'lerin hedeflenen aşırı ekspresyonu immünoterapi ajanlarıyla avantajlı olabilir. Bu yaklaşımı destekleyen APOBEC3B indüksiyonunun, melanom ve meme kanseri fare modellerinde immün kontrol noktası blokaj tedavisine duyarlılığı arttırdığı gösterilmiştir [164, 187]. Bu APOBEC3-indüklü duyarlılaşma birden fazla sinerjistik yolla meydana gelebilir (Şekil 5). Birincisi, APOBEC3'ler yüksek bir genel tümör mutasyon yükü oluşturabilir, bu da bazı tümör tiplerinde neoepitop oluşumuna ve immün aktivasyona yol açar [187]. İkincisi, PD-L1 ekspresyonundaki APOBEC{10}}aracılı artışlar aynı zamanda immünoterapi yanıtını da arttırabilir [64, 171, 189]. Mekanik olarak APOBEC3'ler, JNK/c-JUN sinyalini aktive eden DNA hasarı yoluyla PD-L1 ekspresyonunu destekleyebilir [190]. APOBEC3'ler ve IFN- arasındaki sinerji, kanser hücrelerinde PD-L1 ekspresyonunu daha da artırabilir ve immünoterapiye duyarlılığı ilave olarak artırabilir [206, 207]. APOBEC3'ler yüksek düzeyde DNA hasarına neden olduğundan, kanser hücrelerinde hedeflenen aşırı ekspresyonu da sitotoksik olabilir [208]. APOBEC3A'nın aktivasyonu, APOBEC3'ler arasında en yüksek deaminasyon aktivitesine sahip olduğundan spesifik olarak in vitro apoptoza neden olabilir [43, 108]. Ayrıca, APOBEC3'lerin hedeflenen aşırı ekspresyonu, bozulmuş urasil glikosilaz fonksiyonuna veya abazik bölge sensörü HCES'in kaybına (sentetik hassasiyet yaratabilecek mutasyonlar) sahip tümörler için özellikle sitotoksik olabilir [209, 210]. APOBEC3-aktive edici tedaviler aynı zamanda genotoksik ilaçların kullanımını da etkileyebilir. Örneğin, APOBEC3 indükleyicileri, tümörleri platin bazlı kemoterapilere ve DDR inhibitörlerine yanıt vermeye hazırlayabilir. Konseptin bir kanıtı olarak, in vitro bir meme kanseri çalışması, düşük bazal ekspresyona sahip hücre hatlarında APOBEC3'lerin uyarılmasının sisplatine duyarlılığı önemli ölçüde arttırdığını buldu [188]. APOBEC3'lerin aşırı ekspresyonunun, akut miyeloid lösemi ve osteosarkom hücre hatlarında hedeflenen ATR ve Chk1/2 inhibitörlerine duyarlılığı arttırdığı da gösterilmiştir [52, 191]. Benzer şekilde, APOBEC3B'nin aşırı ifadesi, p53-eksik hücreleri CHEK1/2, WEE1 ve PARP inhibisyonuna karşı duyarlı hale getirdi [99]. Pankreas kanseri hücrelerinde APOBEC3A yukarı regülasyonu ile PARP inhibitörlerine karşı artan hassasiyet de gözlenmiştir [157]. Bazı bağlamlarda terapötik potansiyele sahip olmasına rağmen, APOBEC3 indüksiyonu tüm kanserlerde, özellikle de yüksek APOBEC3 ekspresyonunun immünosupresyonla ilişkili olduğu tümörlerde immünoterapi yanıtını kolaylaştırmayabilir (Tablo 4). APOBEC{57}}güçlendirici ilaçlar da yeni sürücü mutasyonları, artan tümör heterojenliği ve kemoterapi direnci riskleri göz önüne alındığında dikkatle araştırılmalıdır. Bununla birlikte, APOBEC3 aktivitesinin aktivasyonu ve inhibisyonu, yarının klinik ortamı için yeni tedavi seçenekleri yaratabilecek umut verici yaklaşımlardır.

Şekil 5 İmmünoterapiye yanıtı arttırmak için APOBEC3'lerin aktivasyonu. APOBEC3 aktivitesinin arttırılması, fare modelleri kullanılarak yapılan çalışmalarda gösterildiği gibi, neoepitop oluşumu, artan PD-L1 ekspresyonu ve immün aktivasyon yoluyla immünoterapi yanıtını artırabilir.
Sonuçlar
APOBEC3'ler kanserde başlıca mutajenik sürücülerdir ve APOBEC3A ve APOBEC3B muhtemelen APOBEC3 süper ailesi arasındaki en önemli mutatörlerdir. APOBEC3A ve APOBEC3B birçok kanserde aşırı eksprese edilir ve bunların ekspresyonu, daha yüksek APOBEC3- kaynaklı mutasyon yüküyle ilişkilidir. Bununla birlikte, her iki aile üyesinin de nakavt edilmesinden sonra kalan deaminasyon aktivitesinin tespiti, diğer APOBEC3'lerin de aktif mutatörler olduğunu göstermektedir. Her APOBEC3'ün kansere nasıl katkıda bulunduğunun daha iyi anlaşılması, tümör etiyolojisini daha da aydınlatacak ve APOBEC3'lerin hedeflenmesinde terapötik açıdan anlamlı hale gelebilecektir.

Şekil 6 Kanserde APOBEC3-aracılı mutajenezin nedenleri, sonuçları ve klinik yönleri. Çeşitli eksojen ve endojen faktörler APOBEC3'leri indükleyebilir ve bu da daha sonra mutajenik ve mutajenik olmayan yollarla kanser büyümesini etkileyebilir. Bu APOBEC3-aracılı etkiler klinik sonuçları şekillendirebilir ve hem mevcut hem de gelecekteki tedavi ortamlarıyla alakalı olabilir
APOBEC{0}}aracılı mutajenezi tetikleyen faktörlerin daha kapsamlı anlaşılması, kanser önleme stratejilerinin iyileştirilmesine de yol açabilir. APOBEC3 ekspresyonunun şu anda bilinen tetikleyicileri arasında viral enfeksiyon, inflamasyon ve bazı genotoksik ilaçlar yer alır, ancak artan ekspresyon tek başına yüksek düzeyde mutageneze neden olmayabilir (Şekil 6). İki faktörlü bir modelde, genotoksik ilaca maruz kalma, genomik dengesizlik vb. nedenlerden kaynaklanabilen ssDNA, APOBEC3'ler için birincil mutasyonel substratlar oluşturur ve mutajenezi kolaylaştırır. Mutajenez, APOBEC3'lerin kanserdeki rolünün merkezinde olmasına rağmen, APOBEC3'ler ayrıca hücre döngüsü modülasyonu, epigenetik düzenleme, STING'e bağımlı metastaz ve hücre ölümü inhibisyonu gibi mutajenik olmayan yollar yoluyla tümör oluşumuna da katkıda bulunabilir (Şekil 6). Ek olarak APOBEC3'ler, kanser türüne göre değişen etkiyle tümör immün mikro ortamını modüle edebilir. APOBEC3'ler meme, akciğer ve mesane kanserinde bağışıklık aktivasyonuyla ilişkilendirilirken, APOBEC3-aracılı immün baskılama karaciğer kanseri, mide kanseri ve adrenokortikal karsinomda gözlemlenmiştir. APOBEC3'lerin bağışıklık modüle edici etkileri muhtemelen hastalığın gidişatını etkiler, ancak APOBEC{15}}aracılı bağışıklık aktivasyonu, sürücü mutasyonları ve hücre ölümü inhibisyonu gibi diğer faktörlerin karşıt etkilere sahip olabilmesi nedeniyle her zaman iyileştirilmiş klinik sonuçlara dönüşmez. APOBEC{16}}aracılı bağışıklık aktivasyonu, artan neoepitop yükü ve daha yüksek PD-L1 ekspresyonu, immünoterapilere verilen yanıtı artırmak için sinerji oluşturabilir (Şekil 6). APOBEC3'ler ayrıca platin bazlı tedavilere yanıt vermeyi kolaylaştırabilir. Klinik öncesi çalışmaların yanı sıra çeşitli klinik ilişkiler, APOBEC3'lerin mevcut immünoterapiler ve kemoterapiler için biyobelirteçler olarak kullanılabileceğini, APOBEC3 aktivasyonuna yönelik yeni stratejilerin ise belirli tümörleri artan terapötik yanıt için hazırlayabileceğini göstermektedir (Şekil 6).

Cistanche tubulosa'nın faydaları-Bağışıklık sistemini güçlendirmek
Buna karşılık, APOBEC3'lerin inhibe edilmesi, tümör gelişimini yavaşlatabilir, alt klon heterojenliğini azaltabilir ve bazı kanserlerde ve spesifik tedavi türlerine yönelik bağlamda tedaviye direnci önleyebilir. APOBEC3'ler çok çeşitli ve yüksek oranda insan tümörlerinde düzensizdir, dolayısıyla bu alanlardaki araştırmalar büyük potansiyele sahiptir ve birçok kanser türü için yeni tedavi seçeneklerine yol açabilir.
Referanslar
1. Rouf Banday A, Onabajo OO, Lin SHY, Obajemu A, Vargas JM, Delviks Frankenberry KA, ve diğerleri. APOBEC3B'nin doğal ekleme plastisitesini hedeflemek, ifadesini ve mutajenik aktivitesini kısıtlar. Komün Biol.
2.2021;4(1):386. Ebrahimi D, Richards CM, Carpenter MA, Wang J, Ikeda T, Becker JT, ve diğerleri. APOBEC3H alternatif birleştirme, retrovirüs kısıtlaması ve HIV-1 proteazıyla karşı koymanın genetik ve mekanik temeli. Nat İletişim.
3.2018;9(1):4137. Harari A, Ooms M, Mulder LCF, Simon V. Polimorfizmler ve ekleme varyantları, insan APOBEC3H'nin antiretroviral aktivitesini etkiler. J Virol. 2009;83(1):295–303.
4. Lassen KG, Wissing S, Lobritz MA, Santiago M, Greene WC. HIV-1 antiviral aktivitesi ve Vif*'e karşı zıt duyarlılık sergileyen iki APOBEC3F ekleme varyantının tanımlanması. J Biol Kimya. 2010;285(38):29326–35.
5. Salter JD, Bennett RP, Smith HC. APOBEC protein ailesi: yapı olarak birleşik, fonksiyon bakımından farklı. Trendler Biyokimya Sci. 2016;41(7):578–94.
6. Chaudhuri J, Evans T, Kumar R, DiMenna L. Aktivasyonun neden olduğu sitidin deaminazın (AID) biyolojik fonksiyonu. Biomed J. 2014;37(5):269.
7. Chen SH, Habib G, Yang CY, Gu ZW, Lee BR, Weng SA, ve diğerleri. Apolipoprotein B-48, organa özgü çerçeve içi durdurma kodonuna sahip bir haberci RNA'nın ürünüdür. Bilim. 1987;238(4825):363–6.
8. Powell LM, Wallis SC, Pease RJ, Edwards YH, Knott TJ, Scott J. Dokuya özgü RNA işlemenin yeni bir formu, bağırsakta apolipoprotein-B48 üretir. Hücre. 1987;50(6):831–40.
9. Hirano K, Min J, Funahashi T, Baunoch DA, Davidson NO. İnsan aerobik-1 geninin karakterizasyonu: gastrointestinal dokulardaki ekspresyon, yeni bir kesik peptidin üretimi ile alternatif birleştirme yoluyla belirlenir. J Lipid Res. 1997;38(5):847–59.
10. Harris RS, Dudley JP. APOBEC'ler ve virüs kısıtlaması. Viroloji. 2015;479–480:131–45.
11. Silvas T, Schifer CA. APOBEC3'ler: DNA'yı düzenleyen insan sitidin deaminazları. Protein Bilimi. 2019. https://doi.org/10.1002/pro.3670.
12. Yu Q, König R, Pillai S, Chiles K, Kearney M, Palmer S, ve diğerleri. APOBEC3G'nin tek iplikçik özgüllüğü, HIV genomunun eksi iplikçik deaminasyonunu açıklar. Nat Yapı Mol Biol. 2004;11(5):435–42.
13. Chan K, Sterling JF, Roberts SA, Bhagwat AS, Resnick MA, Gordenin DA. Tek sarmallı DNA içindeki baz hasarı, her yerde bulunan bir çevresel ajan tarafından indüklenen in vivo hipermutabilitenin temelini oluşturur. PLoS Genet. 2012;8(12):e1003149.
14. Hoopes JI, Cortez LM, Mertz TM, Malc EP, Mieczkowski PA, Roberts SA. APOBEC3A ve APOBEC3B, DNA replikasyonu sırasında gecikmeli iplik şablonunu tercihen deamine eder. Hücre Temsilcisi 2016;14(6):1273–82.
15. Lada AG, Kliver SF, Dhar A, Polev DE, Masharsky AE, Rogozin IB, ve diğerleri. Transkripsiyonel koaktivatör Sub1'in bozulması, aktif maya genlerinde APOBEC tarafından indüklenen kümelenmiş mutasyonların genom çapında yeniden dağılımına yol açar. PLoS Genet. 2015;11(5):e1005217.
16. Seplyarskiy VB, Soldatov RA, Popadin KY, Antonarakis SE, Bazykin GA, Nikolaev SI. İnsan kanserlerinde APOBEC'in neden olduğu mutasyonlar, replikasyon sırasında geciken DNA zincirinde güçlü bir şekilde zenginleşir. Genom Araş. 2016;26(2):174–82.
17. Buisson R, Langenbucher A, Bowen D, Kwan EE, Benes CH, Zou L, ve diğerleri. APOBEC3A ve orta ölçekli genomik özellikler tarafından yönlendirilen kanserde yolcu sıcak nokta mutasyonları. Bilim. 2019;364:6447.
18. McCann JL, Cristini A, Law EK, Lee SY, Tellier M, Carpenter MA, ve diğerleri. DNA sitozin deaminaz APOBEC3B tarafından desteklenen R-döngü homeostazisi ve kanser mutajenezi. bioRxiv [İnternet]. 2021;2021.08.30.458235. Şu adresten ulaşılabilir: http://biorxiv.org/content/early/2021/08/30/2021.08.30.458235.abstract.
19. Holtz CM, Sadler HA, Mansky LM. APOBEC3G sitozin deaminasyon sıcak noktaları, hem dizi bağlamı hem de tek sarmallı DNA ikincil yapısı tarafından tanımlanır. Nükleik Asitler Res. 2013;41(12):6139–48.
20. Harris RS. Meme kanserinde APOBEC3B katalizli mutajenezin moleküler mekanizması ve klinik etkisi. Meme Kanseri Arş. 2015;17(1):8.
21. Refsland EW, Harris RS. APOBEC3 retroelement kısıtlama faktörleri ailesi. Berlin: Springer; 2013.s. 1–27.
22. Burns MB, Lackey L, Carpenter MA, Rathore A, Land AM, Leonard B, ve diğerleri. APOBEC3B, meme kanserinde enzimatik bir mutasyon kaynağıdır. Doğa. 2013;494(7437):366–70.
23. Chan K, Roberts SA, Klimczak LJ, Sterling JF, Saini N, Malc EP, ve diğerleri. Bir APOBEC3A hipermutasyon imzası, insan kanserlerinde APOBEC3B'nin arka plan mutajenezinin imzasından ayırt edilebilir. Nat Genet. 2015;47(9):1067–72.
24. KOZMİK. 2022.
25. Alexandrov LB, Kim J, Haradhvala NJ, Huang MN, Tian Ng AW, Wu Y, ve diğerleri. İnsan kanserindeki mutasyon imzalarının repertuvarı. Doğa. 2020;578(7793):94–101.
26. Alexandrov LB, Nik-Zainal S, Wedge DC, Aparicio SAJR, Behjati S, Biankin A, ve diğerleri. İnsan kanserindeki mutasyon süreçlerinin imzaları. Doğa. 2013;500(7463):415–21.
27. Roberts SA, Lawrence MS, Klimczak LJ, Grimm SA, Fargo D, Stojanov P, ve diğerleri. APOBEC sitidin deaminaz mutajenez modeli insan kanserlerinde yaygındır. Nat Genet. 2013;45(9):970–6.
28. Zou J, Wang C, Ma X, Wang E, Peng G. APOBEC3B, insan kanserlerinde mutajenezin moleküler sürücüsü. Hücre Biyosci. 2017;7(1):29.
29. Taylor BJ, Nik-Zainal S, Wu YL, Stebbings LA, Raine K, Campbell PJ, ve diğerleri. DNA deaminazları, meme kanseri kataegisinde APOBEC3B ve 3A'nın etkisiyle kırılmayla ilişkili mutasyon duşlarına neden olur. Elife. 2013;16:2.
30. Liu W, Newhall KP, Khani F, Barlow L, Nguyen D, Gu L, ve diğerleri. Sitidin deaminaz APOBEC3G, mesane kanserinde kanser mutajenezine ve klonal evrime katkıda bulunur. Kanser Arş. 2022;26:2651.
31. Aaltonen LA, Abascal F, Abeshouse A, Aburatani H, Adams DJ, Agrawal N, ve diğerleri. Tüm genomların pan-kanser analizi. Doğa. 2020;578(7793):82–93.
32. Bergstrom EN, Luebeck J, Petljak M, Khandekar A, Barnes M, Zhang T, ve diğerleri. Kanserdeki kümelenmiş mutasyonların haritalanması, cDNA'nın APOBEC3 mutajenezini ortaya çıkarır. Doğa. 2022;602(7897):510–7.
33. Langenbucher A, Bowen D, Sakhtemani R, Bournique E, Wise JF, Zou L, ve diğerleri. Kanserde genişletilmiş bir APOBEC3A mutasyon imzası. Nat İletişim. 2021;12(1):1602.
34. Burns MB, Temiz NA, Harris RS. Çoklu insan kanserlerinde APOBEC3B mutajenezinin kanıtı. Nat Genet. 2013;45(9):977–83.
35. Kim H, Kim O, Lee MA, Lee JY, Hong SH, Ha US, ve diğerleri. APOBEC3B ekspresyonunun metastatik ürotelyal karsinomdaki prognostik etkisi ve bunun tümöre infiltre eden sitotoksik T hücreleri ile ilişkisi Curr Oncol. 2021;28(3):1652–62.
36. Wang S, Jia M, He Z, Liu XS. Küçük hücreli dışı akciğer kanserinde immünoterapi yanıtı için potansiyel öngörücü belirteçler olarak APOBEC3B ve APOBEC mutasyon imzası Onkogen. 2018;37(29):3924–36.
37. Xia S, Gu Y, Zhang H, Fei Y, Cao Y, Fang H, ve diğerleri. APOBEC3B zenginleştirmesi ile immün inaktivasyonu, mide kanserinde kemoterapiye yanıtı ve hayatta kalmayı öngörür. Onkoimmünoloji. 2021. https://doi.org/10. 1080/2162402X.2021.1975386.
38. Zhang J, Wei W, Jin HC, Ying RC, Zhu AK, Zhang FJ. APOBEC3B'nin mide kanserindeki rolleri. Uluslararası J Clin Exp Pathol. 2015;8(5):5089–96.
39. Kosumi K, Baba Y, Ishimoto T, Harada K, Nakamura K, Ohuchi M, ve diğerleri. APOBEC3B, özofagus skuamöz hücreli karsinomda moleküler değişikliklerin enzimatik bir kaynağıdır. Med Onkol. 2016;33(3):26.
40. Feng C, Zheng Q, Yang Y, Xu M, Lian Y, Huang J, ve diğerleri. Gastroenteropankreatik nöroendokrin neoplazmlarda APOBEC3B'nin yüksek ekspresyonu ve lenf metastazı ile ilişkisi. Appl Immunohistochem Mol Morphol. 2019;27(8):599–605.
41. Rüder U, Denkert C, Alisa Kunze C, Jank P. APOBEC3B protein ekspresyonu ve yüksek dereceli seröz yumurtalık karsinomu olan hastalarda mRNA analizleri. Histol Histopathol. 2019;34:405–17.
42. Du Y, Tao X, Wu J, Yu H, Yu Y, Zhao H. APOBEC3B yukarı regülasyonu bağımsız olarak yumurtalık kanseri prognozunu öngörür: bir kohort çalışması. Kanser Hücresi Uluslararası 2018;18(1):78.
43. Liu W, Ji H, Zhao J, Song J, Zheng S, Chen L, ve diğerleri. Transkripsiyonel baskı ve apoptoz etkisini etkiler
44. Gara SK, Tyagi MV, Patel DT, Gaskins K, Lack J, Liu Y, ve diğerleri. GATA3 ve APOBEC3B, adrenokortikal karsinomda prognostik belirteçlerdir ve APOBEC3B, GATA3 tarafından doğrudan transkripsiyonel olarak düzenlenir. Hedefe uygun. 2020;11(36):3354–70.
45. Wagener R, Alexandrov LB, Montesinos-Rongen M, Schlesner M, Haake A, Drexler HG, ve diğerleri. B hücreli lenfoma hücre dizilerinden alınan ekzomlardaki mutasyon imzalarının analizi, APOBEC3 ailesi üyelerinin primer efüzyon lenfomanın patogenezinde rol oynadığını göstermektedir. Lösemi. 2015;29(7):1612–5.
46. Glaser AP, Fantini D, Wang Y, Yu Y, Rimar KJ, Podojil JR, ve diğerleri. Ürotelyal karsinomda APOBEC aracılı mutajenez, hayatta kalma oranının artması, DNA hasarı tepki genlerindeki mutasyonlar ve bağışıklık tepkisi ile ilişkilidir. Hedefe uygun. 2018;9(4):4537–48.
47. Cortez LM, Brown AL, Dennis MA, Collins CD, Brown AJ, Mitchell D, ve diğerleri. APOBEC3A, meme kanserinde öne çıkan bir sitidin deaminazdır. PLoS Genet. 2019;15(12):e1008545.
48. Asaoka M, Patnaik SK, Ishikawa T, Takabe K. APOBEC3 DNA mutatör ailesinin farklı üyelerinin, meme kanseri manzarasıyla karşıt ilişkileri vardır. Ben J Cancer Res. 2021;11:5111.
49. Wu J, Pan TH, Xu S, Jia LT, Zhu LL, Mao JS, ve diğerleri. Virüsün neden olduğu protein APOBEC3G, pankreas kanseri hücrelerinde Akt kinazın aktivasyonuyla anoikisi inhibe eder. Bilim Temsilcisi 2015;5(1):12230. 50. Ding Q, Chang CJ, Xie X, Xia W, Yang JY, Wang SC, ve diğerleri. APOBEC3G, kolorektal kanserin ortotopik fare modelinde karaciğer metastazını teşvik eder ve insan hepatik metastazını öngörür. J Clin Araştırma. 2011;121(11):4526–36.
51. Luo C, Wang S, Liao W, Zhang S, Xu N, Xie W, ve diğerleri. APOBEC3 ailesinin yukarı regülasyonu, kötü prognozla ilişkilidir ve düşük dereceli gliomada Raf inhibitörlerine verilen tedavi yanıtını etkiler. Uluslararası J Mol Sci. 2021;22(19):10390.
52. Green AM, Budagyan K, Hayer KE, Reed MA, Savani MR, Wertheim GB, ve diğerleri. Sitozin deaminaz APOBEC3A, lösemi hücrelerini DNA replikasyon kontrol noktasının inhibisyonuna karşı duyarlı hale getirir. Kanser Arş. 2017;77(17):4579–88.
53. Waters CE, Saldivar JC, Amin ZA, Schrock MS, Huebner K. FHIT kaybının neden olduğu DNA hasarı, optimal APOBEC substratlarını oluşturur: APOBEC aracılı mutageneze ilişkin içgörüler. Hedefe uygun. 2015;6(5):3409–19.
54. Sasaki H, Suzuki A, Tatematsu T, Shitara M, Hikosaka Y, Okuda K, ve diğerleri. Küçük hücreli dışı akciğer kanserinde APOBEC3B geninin aşırı ekspresyonu. Biomed Temsilcisi 2014;2(3):392–5.
55. Feng C, Zhang Y, Huang J, Zheng Q, Yang Y, Xu B. Nazofaringeal karsinomda APOBEC3B ve PD-L1/PD-1'nin prognostik önemi. Appl Immunohistochem Mol Morphol. 2021;29(3):239–44.
56. Leonard B, Hart SN, Burns MB, Carpenter MA, Temiz NA, Rathore A, et al. Seröz yumurtalık karsinomunda APOBEC3B yukarı regülasyonu ve genomik mutasyon modelleri. Kanser Arş. 2013;73(24):7222–31.
57. Heller M, Prigge ES, Kaczorowski A, von Knebel Doeberitz M, Hohen Fellner M, Duensing S. Penil skuamöz hücreli karsinomda APOBEC3A ifadesi. Patobiyoloji. 2018;85(3):169–78.
58. Petljak M, Dananberg A, Chu K, Bergstrom EN, Striepen J, von Morgen P, ve diğerleri. İnsan kanser hücrelerinde APOBEC3 mutagenezinin mekanizmaları. Doğa. 2022;607(7920):799–807.
59. Petljak M, Maciejowski J. Kanserde APOBEC ile ilişkili mutasyonların moleküler kökenleri. DNA Onarımı (Amst). 2020;94:102905.
60. Carpenter MA, Li M, Rathore A, Lackey L, Law EK, Land AM, ve diğerleri. Yabancı DNA kısıtlama enzimi APOBEC3A tarafından metilsitozin ve normal sitozin deaminasyonu. J Biol Kimya. 2012;287(41):34801–8.
61. Middlebrooks CD, Banday AR, Matsuda K, Udquim KI, Onabajo OO, Paquin A, ve diğerleri. APOBEC3 bölgesindeki germ hattı varyantlarının kanser riski ile ilişkisi ve tümörlerde APOBEC imzalı mutasyonlarla zenginleşme. Nat Genet. 2016;48(11):1330–8.
62. Nik-Zainal S, Wedge DC, Alexandrov LB, Petljak M, Butler AP, Bolli N, ve diğerleri. APOBEC3A ve APOBEC3B'nin germ hattı kopya numarası polimorfizminin meme kanserinde varsayılan APOBEC'e bağımlı mutasyonların yükü ile ilişkisi Nat Genet. 2014;46(5):487–91.
63. Matsuda K, Takahashi A, Middlebrooks CD, Obara W, Nasu Y, Inoue K, ve diğerleri. Genom çapında ilişkilendirme çalışması, Japon popülasyonunda mesane kanseri riski ile ilişkili 15q24'teki SNP'yi tanımladı. Hum Mol Genet. 2015;24(4):1177–84.
64. Kim Y, Sun DS, Yoon J, Ko YH, Won HS, Kim JS. Meme kanserli hastalarda APOBEC3A ve 3B ekspresyonunun klinik etkileri. PLoS BİR. 2020;15(3):e0230261. 65. Starrett GJ, Luengas EM, McCann JL, Ebrahimi D, Temiz NA, Love RP, et al. DNA sitozin deaminaz APOBEC3H haplotip I muhtemelen meme ve akciğer kanseri mutajenezine katkıda bulunur. Nat İletişim. 2016;7(1):12918.
66. Stavrou S, Ross SR. Viral bağışıklıkta APOBEC3 proteinleri. J İmmünol. 2015;195(10):4565–70.
67. Bosch FX, Lorincz A, Munoz N, Meijer CJLM, Shah K. İnsan papilloma virüsü ile rahim ağzı kanseri arasındaki nedensel ilişki. J Clin Pathol. 2002;55(4):244–65.
68. Revathhidevi S, Murugan AK, Nakaoka H, Inoue I, Munirajan AK. APOBEC: Rahim ağzı kanseri patogenezinde moleküler bir sürücü. Kanser Lett. 2021;496:104–16.
69. Riva G, Albano C, Gugliesi F, Pasquero S, Pacheco SFC, Pecorari G, ve diğerleri. HPV APOBEC ile buluşuyor: baş ve boyun kanserinde yeni oyuncular. Uluslararası J Mol Sci. 2021;22(3):1402.