Aril Hidrokarbon Reseptörüne Bağlı ve Bağımsız Yollar Kurkumin Yaşlanma Karşıtı Etkilere Aracılık Ediyor Bölüm 2
Jun 29, 2022
Lütfen iletişime geçinoscar.xiao@wecistanche.comdaha fazla bilgi için
2.2.6. Birincil İnsan EC'nin Yetiştirilmesi
İnsan birincil EC'si (Lonza, Köln, Almanya) 1 ug/mL hidrokortizon, 12 ug/mL sığır beyni özü, 50ug/ ile takviye edilmiş tam endotelyal bazal ortam(EBM) (Lonza, Köln, Almanya) içinde kültürlendi. ml gentamisin, 10ng/mL insan epidermal büyüme faktörü ve yüzde 10 (o/v)fetal buzağı serumu 37 derecede ve yüzde 5 CO, üçüncü pasaja kadar. Yüzde 0.05 (o/o)Tripsin/EDTA (Thermo Scientific, Schwerte, Almanya) ile ayrılmadan sonra hücreler, transfeksiyon veya tedaviden en az 18 saat önce 6 cm'lik kültür tabaklarında veya 6 oyuklu kültür plakalarında kültürlendi.
Daha fazla bilgi için lütfen buraya tıklayın
2.2.7. EC'nin Geçici Transfeksiyonu
Hücreler daha önce tarif edildiği gibi transfekte edildi [65]. Kısaca EC, üreticinin talimatlarına göre SuperFectTransfection Reagent (Qiagen, Hilden, Almanya) kullanılarak transfekte edildi. AhR'nin aşırı ekspresyonu veya yıkımı sırasıyla 24 veya 48 saat sonra elde edildi. Aşırı ifade üzerine transfeksiyon verimliliği yaklaşık yüzde 40 idi.
2.2.8. EC'nin Çizik Yara Testi
EC'nin göç kapasitesinin araştırılması için, daha önce tarif edildiği gibi çizik yara deneyleri yapıldı [66]. Ayrıntılı olarak, yaralar, bir iz çizgisi boyunca bir hücre kazıyıcı ile bir hücre tek tabakasına yerleştirildi. Yaralanmadan sonra, bağlanmamış hücreler nazikçe yıkanarak çıkarıldı.cistanche salsa özüKurkumin tedavisi yara kurulduktan hemen sonra uygulandı. Kur-kimyon, DMSO içinde çözündürüldü ve 7.5 uM'lik nihai konsantrasyonda kullanıldı. EC göçü, hücreler sabitlendikten sonra 5 dakika boyunca PBS içinde 5 ug/mL 4′,6-diamidino-2-fenilindol (DAPI)(Carl Roth, Karlsruhe, Almanya) ile boyanarak nicelendirildi. oda sıcaklığında 15 dakika boyunca yüzde 4 (h/h)paraformaldehit ile. Görüntüler, bir 200-büyütme kullanılarak bir Zeiss AxioVision Observer D1 floresan mikroskobu (Carl Zeiss, Oberkochen, Almanya)) kullanılarak alındı. İz çizgisinden yaraya göç eden hücreler, örtüşen çekirdekler ayrıldıktan sonra Image]1.52a ]67I'nin partikül analiz fonksiyonu kullanılarak otomatik olarak sayıldı.

Cistanche yaşlanmayı geciktirebilir
2.2.9. EC'nin immüno-lekelenmesi
EC, oda sıcaklığında 15 dakika boyunca yüzde 4 (o/v) paraformaldehit ile sabitlendi. PBS içinde 0%0,3 (o/o)Triton-X 100 ve yüzde 3 (o/u)normal keçi serumunda geçirgenleştirme ve bloklamadan sonra, hücreler AhR(1:100, Abcam, Cambridge, Birleşik Krallık) veya Nrf2 (klon D1Z9C, 1:100, Cell Signaling Technology, Frankfurt, Almanya) gece boyunca 4°C'de PBS içinde yüzde 1 (o/v) normal keçi serumu içinde seyreltildi. PBS ve Alexa 594-bağlı keçi anti-tavşan IgG(1:500, Invitrogen, Darmstadt, Almanya) ile oda sıcaklığında 1 saat inkübe edildi.cistanche sapıAktin boyaması için hücreler, oda sıcaklığında 20 dakika boyunca Alexa FluorTM 488 Phalloidin (1:70, Invitrogen, Darmstadt, Almanya) ile inkübe edildi. Çekirdekler, oda sıcaklığında 5 dakika boyunca PBS içinde 0.5 ug/mL DAPI ile zıt boyandı ve hücreler ProLong'MDiamond Antifade Mountant (Invitrogen, Darmstadt, Almanya) ile monte edildi. Floresan görüntüler, 400x veya 200x büyütmeli bir Zeiss AxioVision Observer D1 floresan mikroskobu kullanılarak alındı.
2.2.10. Hücrelerde qPCR
Toplam hücresel RNA, üreticinin talimatlarına göre RNeasy Mini Kit(Qiagen(Hilden, Almanya)) kullanılarak TRIzolTM'de lizizin aşağı akış işlemiyle birleştirilmesiyle izole edildi. cDNA sentezi, üreticinin talimatlarına göre 1 ug RNA ile QuantiTect9 Ters Transkripsiyon Kiti (Qiagen (Hilden, Almanya)) kullanılarak yapıldı. Göreceli transkript seviyeleri, 2x SYBR③ Green qPCR Master Mix ve bir Rotor-Gene Q termal döngüleyici (Qiagen (Hilden, Almanya)) kullanılarak PCR ile belirlendi. Ribozomal protein L32 (rpl32) için transkript referans olarak kullanıldı ve nispi ekspresyon AC yöntemiyle hesaplandı [68]. Aşağıdaki Intron kapsayan primer çiftleri kullanıldı: sermaye (gen erişim numarası NM_000499.5):5'-TCGCTACCTACCCAACCCTT-3',5'-TGTGTCAAACCCAGCTCCAA-3';ahr(gen erişim numarası NM_001621.5):5'-CGTGGGTCAGATGCAGTACA-3',5'ACCAGGGT-CAAAATTGGGCT3';sod2(gen erişim numarası NM_000636.4):5'-GCCCTGGAACCTCAC ATCAA -3';5'-AGCAACTCCCCTTTGGGTTC-3';rpl32(gen erişim numarası NM_000994.4):5'-GTGAAGCCCAAGATCGTCAA-3',5'-TTGTTGCACATCAGCAGGCAC{{ 41}}'.
2.3.Fareler
2.3.1.Fare Hatları ve Üreme
Kadın 8-12-haftalık ("genç") ve 18-aylık ("yaşlı") AHR eksikliği olan B6.129-AHRtmlBra/J (Schmidt ve diğerleri, 1996; anılan buraya AHR-KO)fareleri, IUF'nin hayvan tesisinde heterozi-gotlar olarak yetiştirildi. Kontrol için vahşi tip çöpler kullanıldı. Fareler, 12/12 saat aydınlık-karanlık döngüsünde belirli patojen içermeyen koşullar altında yetiştirildi ve tutuldu ve standart yem(ssniff"MZ, SSNIFF, Soest, Almanya) ad libitum aldı. Farelerde 2.3.2.qPCR
Toplam RNA, TriZol[ ile üç WT ve üç AHR eksikliği olan farenin organ dokularından izole edildi. Daha sonra 400 ng RNA, ters transkriptaz M-MLV (Promega, Madison, WI, ABD) ve rastgele heksamer primerleri kullanılarak ters kopyalandı. Gen ekspresyon seviyeleri, bir Rotor-Gene Q (Qiagen, Hilden, Germany), 15 μL nihai hacimde, 7.5 μL Rotor Gene SybrGreenTM (Biorad, Feldkirchen, Germany), her primerden 1 uM) üzerinde her fare dokusu için iki kopya halinde ölçüldü. ,1.5 μL cDNA ve RNaz içermeyen su Primer verimlilikleri yüzde 90 ile yüzde 146 arasındaydı. Primer dizileri ve verimlilikleri için Tablo S2'ye bakın. Ekspresyon seviyeleri, {{ kullanılarak aynı örnekte house-keeper gen olarak RPS6 ekspresyonuna kalibre edildi. 14}}CT yöntemi [69].
2.4.Siliko Analizlerinde
CeAhR LBD'nin Homoloji Modellemesi
C. elegans AhR LBD'nin (tortular 267-372) yapısal modeli, homoloji modellemesi ile oluşturulmuştur. CeAhR PASB ile en yüksek dizi kimliğini (yaklaşık yüzde 20) paylaşan homolog bHLH-PAS ailesi üyelerinin PASB alanlarının X-ışını yapıları şablon olarak kullanıldı: sirkadiyen lokomotor çıktı döngüleri kaput (CLOCK, PDB: 4F3L), nöronal PAS alanı içeren protein 3(NPAS3, PDB:5SY7), Hipoksi ile indüklenebilir faktörler 20(HIF2o, PDB:3H82,4ZP4,3F1N) ve lo(HIFlo, PDB:4H6J). Model, MODELLER[70-72] ile elde edildi.cistanche tubulosa faydaları ve yan etkileriOptimal model, en iyi DOPE SCORE [73] temelinde oluşturulan 10 arasından seçildi. Modellerin kalitesi PROCHECK [74] kullanılarak değerlendirildi. İkincil yapılar DSSPcont [75] tarafından atfedilmiştir. Modellenen LBD'ler içindeki bağlanma boşluğu, CASTp sunucusu[76] kullanılarak karakterize edildi. Modellerin görselleştirilmesi PYMOL[77] kullanılarak gerçekleştirilmiştir.

2.5.İstatistiksel Analiz
Aksi belirtilmedikçe, istatistiksel analizler GraphPad Prism'de (Sürüm 6.01) (GraphPad Software, Inc. San Diego, CA, ABD) gerçekleştirilmiştir. Yaşam/sağlık süresi tahlilleri için, OASIS[53] kullanılarak istatistiksel analiz yapıldı. Mikrodizi verilerinin istatistiksel analizi, R'de (R Foundation (Viyana, Avusturya)) gerçekleştirilmiştir. Kutu grafikleri GraphPad Prism'de (Sürüm 6.01) (GraphPad Software, Inc. San Diego, CA, ABD) oluşturuldu ve ortanca (çizgi),25-75yüzdelik dilim (kutu) ve 10-90yüzdelik dilimleri gösteriyor (bıyıklar).
3. Sonuçlar
3.1. Curcumin, AhR'ye Bağlı ve Bağımsız Bir Şekilde Sağlık Süresini Artırıyor
Ahr-1 kaybı, C.elegans'ın temel koşullarda sağlığını ve ömrünü artırır[14] ve benzo[a]piren (BaP), UVB gibi memeli AhR modülatörlerine yanıt olarak yaşa bağlı özellikleri olumsuz etkiler. ışık ve mikrobiyota [25]. Kurkumin gibi diyet polifenolleri, C. elegans'ta uzun ömür etkileri olan önemli bir memeli AhR modülatörleri grubunu oluşturur [78,79] ve bu nedenle kurkuminin ahr-1 için yaşam süresini uzatan etkisini araştırdık. bağımlılık. Kurkumin, C. elegans'ın yaşam ve sağlık süresini ahr-1-bağımlı bir şekilde yeniden üretilebilir ve önemli ölçüde uzatmıştır (Şekil 1A,B). Daha önce, ahr-1 kaybının Huntington hastalığı ve Parkinson hastalığı modellerinde, sırasıyla agregasyona eğilimli poliglutamin (polyQ40) ve -sinükleinin (-syn) kas aşırı ekspresyonu ile yaşam süresini uzattığını göstermiştik. aynı zamanda protein agregatlarının içeriğini arttırır [25]. İlginç bir şekilde, kurkumin tedavisi polyQ40 ve -syn kümelerinin sayısını ahr-7 fonksiyon kaybı kadar arttırdı (Şekil 1C). Kurkumin ayrıca bu hastalık modellerinde yaşam süresini ve hareket kabiliyetini de destekledi (Şekil 1DE), ancak ahr-1 kaybının ve kurkumin takviyesinin etkileri PolyQbackground'da (Şekil 1D) katkı maddesiydi ve AHR-1-bağımsız koruyucu işlevleri ortaya çıkardı. En azından bu tehlikeye atılmış arka planda kurkumin.

Şekil 1. Kurkumin, AHR-1-bağımlı ve bağımsız bir şekilde sağlığı destekler. DMSO veya kurkumin ile muamele edilmiş wt ve ahr-1 nematodlarının yaşam süresi (A) ve sağlık süresi (B) eğrileri. Hayatta kalma eğrileri, 5 deneyde 290-300 solucanın/koşulun havuzlanmış verilerini gösterir. İstatistiksel test:log-rank testi, DMSO'ya karşı # anlamlılık,*wt'ye karşı anlamlılık, Bonferronip-değeri<0.05.(c) quantification="" of="" aggregates="" in="" 10-day-old="" polyq;wt="" and="" poly="" air-1="" (left="" panel)="" or="" 7-day-old="" async;wt="" and="" an;ahr-1="" (right="" panel).="" boxplots="" show="" pooled="" data="" from="" 59-111="" worms/conditions="" in="" 3="" experiments.="" statistical="" test:1-way="" anova="" with="" tukey's="" multiple="" comparisons=""><0.05><0.05 vs.dmso.(d,e)life/health="" span="" of="" polyq;wt="" and="" polyq;ahr-1.survival="" curves="" show="" pooled="" data="" of="" 180="" worms/conditions="" in="" 3="" experiments.="" statistical="" test:="" log-rank="" test,significance="" vs.="" dmso,="" *="" significance="" vs.="" wt,="" bonferroni="" p-value=""><>
3.2.ugt-45 Kurkumin ve ahr'ın Yaşlanma Karşıtı Etkilerine Aracılık Ediyor-1
Kurkuminin olası aşağı akış ahr-1-bağımlı efektörlerini araştırmak için hedefli ve tarafsız yaklaşımlar aldık. Klasik memeli AhR hedef genlerinin ekspresyonunu inceledik ve curcumin memeli hücrelerinde CyplA1 ve CyplB1 ekspresyonunu değiştirdiği için Cyp genlerine odaklandık [80,81]. Bununla birlikte, yarı niceliksel gerçek zamanlı PCR (qPCR) ile C.elegans'ta 47 farklı cyps'in nicelendirilmesi, yalnızca cyp-13B1'in ahr-1 tükenmesi veya kurkumin tarafından önemli ölçüde yukarı regüle edildiğini ortaya koydu. ahr-1-bağımlı bir şekilde(Şekil S1A-B), diğer üç cyps(yani,cyp-13A5, cyp-13A8 ve cyp-42A1) kurkumin tarafından sadece ahr yokluğunda artar-1(Şekil S1). Bu veriler, diğer çalışmalarla birlikte [25,82], cyp'lerin muhtemelen CeAhR'nin ana hedefleri olmadığını göstermektedir. Bu aynı zamanda vahşi tip ve ahr-1 mutantlarındaki transkriptomik analizimiz tarafından da desteklenmektedir. Gerçekten de, nöronal belirlemede AHR-1'nin rolüyle tutarlı olarak [37,38,40,41], vahşi tip ve ahr-1 mutantları arasındaki gen ekspresyonu değişiklikleri, nöronal gelişimle bağlantılı süreçlerde zenginleşme göstermiştir. ve farklılaşma ve klasik detoksifikasyon genlerinde önemli bir değişiklik yok (Şekil 2A). ahr-1(jul45) ve vahşi tip (atf-2) arasındaki en yukarı ve aşağı regüle edilmiş genlerin bazılarının qPCR analizi , K04H4.2, egl-46, T20F5.4, ptr-4, dyf-7,clec-209, C01B4.6, C01B4.7, F56A4.3)çoğunlukla bazal koşullarda ahr-1-bağımlılıklarını doğruladı (Şekil 2B) ancak ne UVB [25] ne de kurkumin (Şekil 2C) bu genlerin ekspresyonunu önemli ölçüde etkilemedi. Bu genlerdeki ekspresyon değişikliklerinin evrimsel olarak korunup korunmadığını merak ettik ve 8- ve 18-aylık vahşi tip ve farklı dokularda (yani beyin, karaciğer, bağırsak ve kan) ekspresyonlarını değerlendirdik. AhR KO fareleri. Bazı genler, genç(atf-2 homolog) veya yaşlı(lpr-4/5 homolog) farelerde dokuya özgü bir şekilde artan ekspresyon eğilimi gösterdi, ancak ne belirgin bir model ne de korunmuş değişiklikler vardı. gözlendi (Şekil S2). Bu sonuçlar, C. elegans'ta tüm hayvan transkriptomik analizi tarafından gözden kaçan memelilerdeki olası türe özgü farklılıkları veya dokuya bağlı AhR transkripsiyonel aktivitesini yansıtır. C. elegans wild-type ve ahr-1(jul45) arasındaki en farklı şekilde eksprese edilen genlerin kapsamlı bir incelemesi, bu genlerin çoğunun ekspresyonunun yaşlanma sırasında C.elegans'ta ve diyet memeli AhR modülatörleri tarafından etkilendiğini ortaya çıkardı ( örneğin, quercetin ve resveratrol)[25], böylece polifenol ile modüle edilmiş gen ekspresyonunda AHR-1'in bir rolü olduğunu düşündürür. Bu senaryoya uygun olarak, mikrodizi verileri, kurkumin tedavisi üzerine farklı şekilde eksprese edilen genlerin çoğunun gerçekten de ahr-1-bağımlı bir şekilde düzenlendiğini gösterdi (Şekil 2D; Tablo 1).cistanche tubulosa özüYabani tipte kurkumin tarafından değiştirilen 47 genden (43 yukarı ve 4 aşağı regüle), sadece 5'i ahr-1(ju145) içinde kurkumin tarafından indüklendi. AHR-1-bağımlı bir şekilde kurkumin tarafından düzenlenen genler arasında faz II enzimleri vardı ve ilginç bir şekilde bazıları (ugt-9 ve ugt-29), kurkumin tarafından aynı yönde düzenlendi. veya ahr-1 kaybı (Tablo 1). Bu nedenle, çoklu karşılaştırmalar için düzeltilmeyen daha az kısıtlayıcı bir istatistiksel analiz uygulanırken farklı şekilde ifade edilen ek ugts(ugt-45 ve ugt-57) ifadelerini ve ifadelerini kontrol ettik. İncelenen genlerden ugt-45, ahr-1(ijul45) ve kurkumin tedavisi ile arttırıldı (Şekil 3A,B). Yabani tip ile bazı detoksifikasyon genlerinin ekspresyonunda da değişiklikler gözlemledik. AhR KO fareleri dokuya bağımlı bir şekilde. Bu genlerin diferansiyel ekspresyonunun en yüksek olduğu beyinde Ugt2a3 (C.elegans'ta ugt-9 ve ugt-29) aşağı ve Hpgds (C. elegans'ta gst-4) idi. yukarı regüle edildi (Şekil S3A). Farelerin karaciğer örneklerinde test edilen genlerin herhangi birinin ifadesinde herhangi bir değişiklik olmamıştır(Şekil S3B).C,elegans verileri doğrultusunda, ugt-45 murin homologu Ugt3a2, farelerde aşırı ifadeye doğru bir eğilim göstermiştir. Ahr KO farelerinin bağırsakları (Şekil S3C). Özellikle, ugt-45 RNAi, kurkumin (Şekil 3C,D) veya ahr-1 tükenmesi (Şekil 3E,F) tarafından teşvik edilen yaşam ve sağlık süreleri üzerindeki yararlı etkileri önledi ve bu iki müdahalenin dayanabileceğini gösterdi. yaşlanma karşıtı aktivitelerini ortaya çıkarmak için ortak olarak modüle edilmiş aşağı akış sinyali.
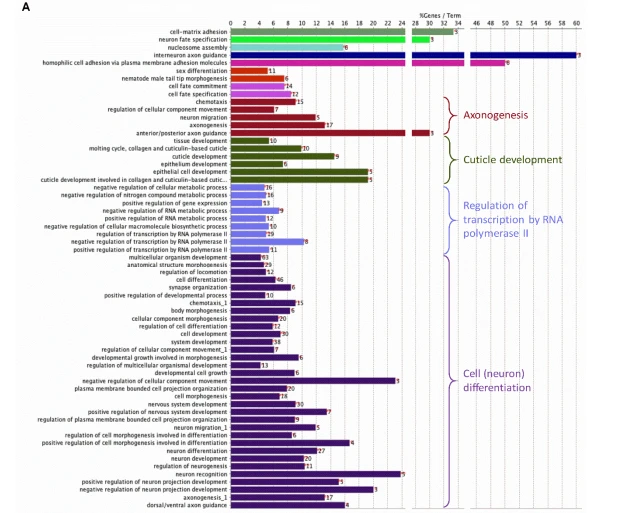

Şekil 2. Kurkumin tarafından diferansiyel olarak düzenlenen genler, öncelikle ahr-1-bağımlı bir şekilde düzenlenir.(A)ahr'da GO terim füzyonundan sonra biyolojik süreçler için gen ontolojisi(GO)zenginleştirmesi-1 vs. wt. (B, C)wt ve ahr-1 [25] arasındaki en güçlü aşağı ve yukarı regüle genlerin ifadesi, wt vs.ahr-1(B) ve DMSO-vs'de qPCR ile değerlendirildi. . kurkumin ile muamele edilmiş nematodlar(C). Kutu grafikleri, 3 deneyden elde edilen verileri gösterir. İfade, DMSO ile muamele edilmiş wt'ye (kesikli çizgi) göre gösterilir. İstatistiksel test:1-Tukey'in çoklu karşılaştırma testiyle ANOVA,*p-değeri<0.05 vs.wt.="" (d)venn="" diagram="" of="" differentially="" expressed="" genes="" on="" the="" microarray.="" the="" number="" of="" genes="" that="" were="" differentially="" up-or="" down-regulated="" between="" the="" indicated="" conditions="" is="" shown="" in="" red="" and="" blue,="" respectively.="" the="" numbers="" in="" the="" interchanges="" refer="" to="" the="" genes="" that="" occurred="" in="" both="" comparisons.="" the="" values="" in="" the="" lower="" right="" corner="" show="" the="" number="" of="" genes="" on="" the="" array="" that="" were="" not="" differentially="">

Curcumin ve ahr-1 mutantlarının yaşam süresinin uzaması için Şekil 3.ugt-45 gereklidir. (A, B)Gen ekspresyonu wt vs.ahr-1(A) ve DMSO- ve kurkumin ile tedavi edilen wt nematodları (B) içinde qPCR ile değerlendirildi. Kutu grafikleri, 3 deneyden elde edilen verileri gösterir. İfade, DMSO ile muamele edilmiş wt'ye göre gösterilir (kesik çizgi ile gösterilir). İstatistiksel test: 2-Sidak'ın çoklu karşılaştırma testiyle Way ANOVA, *p-değeri<0.05vs.wt,><0.05 vs.="" dmso.="" (c,d)effect="" of="" ugt-45="" rnai="" on="" the="" curcumin-mediated="" life/health="" span="" extension="" in="" the="" wt.="" survival="" curves="" show="" pooled="" data="" of="" 120="" worms/condition="" in="" 2="" replicates.="" statistical="" test:="" log-rank="" test,="" "significance="" vs.="" dmso,*="" significance="" vs.control="" rnai,="" bonferroni=""><0.05.(e,f)effect of="" ugt-45="" rnai="" on="" ahr-1-mediated="" life/healthspan="" extension.="" survival="" curves="" show="" pooled="" data="" of="" 120="" worms/condition="" in="" 2="" replicates.="" statistical="" test:="" log-rank="" test,#="" significance="" vs.="" wt,*="" significance="" vs.="" control="" rnai,="" bonferroni=""><>
3.3. AHR-1 ve Kurkumin Oksidatif Strese Karşı Bağımsız Koruma
Polifenollerin faydalı özellikleri genellikle reaktif oksijen türlerine(ROS)|83,84] karşı koruma yeteneklerine atfedilir. AhR, oksidatif stres aracılı süreçlerde [85-87] yer aldığından, kurkuminin AhR tarafından düzenlenen antioksidan tepkiler yoluyla hayvanların fizyolojisini etkileyip etkilemediğini merak ettik. ahr-1 mutantlarının daha fazla mitokondriyal(mt)ROS ürettiğini ve mitokondriyal membran potansiyelinin azaldığını (Şekil 4A,B), uzun ömür ile ilişkili iki parametre olduğunu gözlemledik [88,89]. Mitohormesis paradigması ahr-1(jul45) biraz daha fazla mtROS üretir ve daha uzun yaşarken, bu hayvanlar oksidatif strese karşı vahşi tipten daha duyarlıydı. Spesifik olarak, juglon ve H2O2'nin hayvanların zıplaması, hareketliliği ve hayatta kalması üzerinde indüklediği zararlı etkiler, vahşi tipe kıyasla ahr-1(jul45)'de önemli ölçüde daha güçlüydü (Şekil 4C-F). Bu veriler, AHR-1 tükenmesinin bazal koşullarda faydalı motor metik etkileri olduğunu, bunun yanında oksidatif stres koruması için varlığının gerekli olduğunu ve bu nedenle yaşla ilgili sıklıkla ilişkili iki parametreyi, yani yaşam süresi ve stres direncini birbirinden ayırdığını göstermektedir. Bunun yerine, kurkumin hem vahşi tipte hem de ahr-1 mutantlarında H,O ve juglon direncini önemli ölçüde iyileştirdi(Şekil 4E,F), bu da kurkuminin ahr-1-bağımsız bir antioksidan tepki ortaya çıkardığını düşündürür. Ömrü ve oksidatif stres direncinin bağlanmamış regülasyonu ile tutarlı olarak, ugt-45 susturma, ne ahr-1 mutantları ne de kurkumin ile tedavi edilen hayvanlar için oksidatif strese duyarlılığı etkilemedi(Şekil 4G).cistanche tubulosa incelemeleriBu nedenle kurkumin, ahr-1 ve ugt-45 yoluyla uzun ömürlü etkilere sahiptir, ancak ahr-1-bağımsız mekanizmalar yoluyla oksidatif strese karşı koruma sağlar.

3.4. Nrf2/SKN-1 Kurkuminin AhR'den Bağımsız Etkilerine Aracılık Eder
AhR-curcumin karışmasını yaşa bağlı ek özelliklerde daha fazla değerlendirmek için, insan birincil EC'sindeki göç kapasitesini ölçtük - damar işlevselliği için bir ayırt edici özellik, yaşla [90] ve AhR aktivasyonu tarafından azaltıldı [14]. Ahr-1 bastırma ve kurkuminin yaşlanma karşıtı aktivitesine paralel olarak, AhR aşırı ekspresyonu önemli ölçüde inhibe edilirken kurkumin, birincil insan EC'nin göç kapasitesini artırır (Şekil 5A). Not olarak, kurkumin tarafından göç yeteneğinin uyarılması, boş vektör veya AhR ekspresyon vektörü ile transfekte edilmiş hücrelerde karşılaştırılabilirdi(Şekil 5A). Bununla birlikte, kurkumin ile muamele edilmiş hücrelerin göçü, AhR aşırı ekspresyonu ile önemli ölçüde azaldı: curcumin, boş vektör ile transfekte edilmiş hücrelerde, yüksek güç alanı başına 60'a kadar göç etmiş hücreyi indüklerken, AhR aşırı eksprese eden hücrelerde, yüksek güç alanı başına sadece 25 hücreye kadar (Şekil) 5A). Bu veriler, kurkuminin göç öncesi etkisinin AhR'den bağımsız mekanizmalar tarafından, ancak muhtemelen aynı zamanda AhR aktivitesinde bir azalma ile modüle edildiğini göstermektedir. Daha sonra, hücre içi AhR dağılımını ve kurkumin ile tedavi edilen insan EC'de cVpal ekspresyonunu belirledik, Kurkumin, AhR-nükleer translokasyonu (Şekil 5B) veya cyplal ekspresyonunu (Şekil 5C) etkilemedi. AhR'den bağımsız bir şekilde kurkumin tarafından modüle edilen yolları araştırırken, ahr kaybıyla önemli ölçüde modüle edilen genleri düzenleyen transkripsiyon faktörlerini bulmak için nematod transkriptomik profillerine geri döndük-1 veya vahşi tip hayvanlarda kurkumin tedavisi ile (Tablo 1 ). Bu in silico araştırmasında, insan Nrf2'sinin (nükleer faktör eritroid 2-ilişkili faktör 2) ortologu olan redoks transkripsiyon faktörü SKN-1 tanımlandı, ki bu faktör kurkumin [91] tarafından aktivasyonu sıklıkla olası bir aracı olarak rapor edilir. antioksidan aktivitesi [92,93]. Buna göre, prototip C.elegans Nrf2/SKN-1-bağımlı gen, gst-4, alhr-1 mutantında [25] aşırı eksprese edilir ve vahşi tipte ve hatta daha fazlasında kurkumin tarafından indüklenir. ahr-1 mutantlarında (Şekil 5D). Ayrıca, kurkumin, birincil insan EC'de (Şekil 5E) Nrf2'nin stabilizasyonunu ve nükleer translokasyonunu arttırdı ve boş bir vektörle transfekte edilmiş hücrelerde veya hücrelerde manganez süperoksit dismutazın (Sod2) - klasik bir Nrf2 hedef geni - ekspresyonunu indükledi. AhR, shRNA tarafından susturulur(Şekil 5F). EC'de AhR shRNA tarafından Sod2 indüksiyonunun olmaması, Nrf2'nin veya ek transkripsiyon faktörünün (TF) aktivasyonunu tetiklemek için yeterli olmayan ifadedeki (Şekil S3D) kısmi bir azalmaya (yüzde 50) bağlı olabilir. . İlginç bir şekilde, bir C.elegans gst-4 homologu olan Hpgds, AhR KO farelerinin beyninde önemli ölçüde artmıştır (Şekil S3A), ancak Nrf2'nin hedefi değildir. ahr-1 tükenmesi tarafından etkinleştirilen olası Nrf2/SKN-1 bağımsız sinyalleşme için diğer kanıtlar, kurkumin tarafından gst-4 aktivasyonunun deri-7 RNAi tarafından tamamen bastırılmasıdır. C.elegans vahşi tip, oysa ahr-1 mutantları derinin-1 tükenmesine rağmen hala gst-4 uyarır (Şekil 5G, H). Bununla birlikte, cilt-1 RNAi hem vahşi tipte hem de ahr-1(ju145)(Şekil 5I)'de oksidatif stres direncini azaltmıştır. Beklenmedik bir şekilde, cilt-1 susturma, kurkumin ile tedavi edilen hayvanların juglon direncini etkilemedi(Şekil 5I). Verilerimiz, kurkuminin AhR'ye bağlı veya AhR'den bağımsız ancak Nrf2/SKN-1-bağımlı (ve ek) sinyallemeye dayanan farklı yaşlanma karşıtı özellikleri desteklediği karmaşık bir senaryo ortaya koyuyor.

Şekil 4. AHR-1 ve kurkumin bağımsız olarak oksidatif strese karşı koruma sağlar. (A) MitoSOX lekeli wt veya ahr-1 nematodlarında temsili görüntüler (solda) ve DSRed yoğunluk ölçümü (sağda). Kutu grafikleri, 3 deneyde 129-135 solucanlardan/koşullardan toplanan verileri gösterir. (B) Mitokondri membran potansiyeli, belirtilen yaşlardaki nematodlarda TRME boyaması ile değerlendirildi. Temsili görüntüler (solda) ve TMRE floresansının miktarı (sağda) sunulmaktadır. Kutu grafikleri, 3 deneyden toplanan verileri gösterir. Kutu grafikleri, 3-4deneylerdeki 39-54(C) veya 35-36 solucanlardan/koşullardan (D) toplanan verileri gösterir.*p-değeri<0.05 vs.wt,$=""><0.05 vs.control="" treatment,="" statistical="" test:="" 1-way="" anova="" with="" tukey's="" multiple="" comparisons="" test.="" (e)pharyngeal="" pumping="" of="" curcumin-treated="" nematodes="" after="" h,="" o,="" treatment.="" boxplots="" show="" pooled="" data="" from="" 32="" worms/conditions="" in="" 2experiments.="" *=""><0.05><0.05cur vs.="" dmso="" treatment,="" $=""><0.05 h2o2="" vs.="" control="" statistical="" test:2-way="" anova="" with="" tukey's="" multiple="" comparisons="" test.(f)influence="" of="" curcumin="" on="" juglone-induced="" toxicity.="" survival="" curves="" show="" pooled="" data="" of="" 500="" worms/condition="" in="" 20="" experiments.="" *significance="" alhr-1="" vs.wt,#significance="" curcumin="" vs.dmso,="" bonferroni=""><0.05.(g) effect="" of="" ugt-45="" rnai="" in="" curcumin-fed="" wt="" and="" ahr-1="" worms.="" survival="" curves="" show="" pooled="" data="" of="" 150="" worms/condition="" in="" 6experiments.="" statistical="" test:="" log-rank="" test,="" *="" significance="" ahr-1="" vs.="" wt,#significance="" curcumin="" vs.dmso,="" bonferroni=""><0.05. no="" statistical="" significance="" was="" observed="" in="" ugt-45="" vs.="" control="" rnai-treated="">

Şekil 5. Kurkumin, kurkumin (cur)- veya boş bir vektör(EV) veya bir ifade vektörü ile transfekte edilmiş DMSO ile muamele edilmiş insan birincil EC'sinde AhR.(A) Scratch yara testinden bağımsız olarak Nrf2/SKN-1'yi aktive eder. insan AhR. Üst panel: temsili resimler; kesikli çizgi, geçiş başlangıcını temsil eder. Ölçek çubuğu: 100 um. Alt panel: niceleme; kutu grafikleri, 4-6deneylerin verilerini gösterir. İstatistiksel test:1-yol ANOVA,*p<0.05><0.05 ys.dmso.(b,c)human="" primary="" ec="" were="" treated="" with="" cur="" or="" dmso.="" (b)representative="" immunostainings:="" ahr="" is="" stained="" in="" red,="" nuclei="" were="" visualized="" with="" dapi="" (blue),="" the="" cytoskeleton="" is="" counterstained="" with="" phalloidin="" (green),="" merge="" shows="" an="" overlay="" of="" all="" fluorescence="" channels.="" in="" the="" negative="" control="" (-con),="" the="" first="" antibody="" was="" omitted,="" and="" cells="" were="" stained="" with="" alexa="" 488-coupled="" phalloidin="" and="" dapi.scale="" bar:50="" um.(c)="" relative="" capital="" expression="" was="" assessed="" by="" qpcr.="" mean="" expression="" in="" the="" dmso-treated="" controls="" was="" set="" to="" 1.="" boxplots="" show="" data="" from="" 7="" experiments.="" (d)pgst-4:gfp="" expression="" in="" dmso-and="" curcumin-treated="" (cur)wt="" and="" alr-1="" worms.="" boxplots="" show="" pooled="" data="" of="" 118-138="" worms/conditions="" in4=""><0.05><0.05 vs.="" dmso="" treatment,="" statistical="" test:1-way="" anova.(e)representative="" immunostaining="" images="" of="" human="" primary="" ec="" treated="" with="" cur="" or="" dmso:="" nrf2="" is="" stained="" in="" red,="" nuclei="" were="" visualized="" with="" dapi="" (blue),="" the="" cytoskeleton="" is="" counterstained="" with="" phalloidin(green),="" merge="" shows="" an="" overlay="" of="" all="" fluorescence="" channels.="" in="" the="" negative="" control(-="" con)="" the="" first="" antibody="" was="" omitted,="" and="" cells="" were="" stained="" with="" alexa="" 488-coupled="" phalloidin="" and="" dapi.="" scale="" bar:="" 50="" um.(f)="" human="" primary="" ec="" was="" transfected="" with="" an="" empty="" vector(ev)or="" an="" expression="" vector="" for="" an="" shrna="" targeting="" the="" human="" ahr="" transcript="" (shahr).="" relative="" sod2="" expression="" was="" assessed="" by="" qpcr,="" and="" mean="" expression="" in="" the="" ev="" transfected="" cells="" was="" set="" to="" 1.="" boxplots="" show="" data="" of="" 7experiments.=""><0.05 vs.="" respective="" control.="" (g,h)="" post-4:gfp="" expression="" in="" dmso-or="" cur-treated="" wt="" and="" ahr-1="" nematodes="" subjected="" to="" control="" or="" skin-1="" rnai.="" representative="" images(g)="" and="" gst-4-driven="" gfp="" quantification(h)="" are="" shown.="" boxplots="" show="" pooled="" data="" of="" 103-189="" worms/conditions="" in="" 4="" experiments.="" (i)="" juglone="" stress="" survival="" in="" curcumin-="" or="" dmso-treated="" wt="" and="" alhr-1="" nematodes="" subjected="" to="" control="" or="" skn-1="" rnai.="" kaplan="" meier="" survival="" curves="" show="" pooled="" data="" of="" 100="" worms/condition="" in="" 4="" experiments.="" statistical="" test:="" log-rank="" test,="" *="" significance="" ahr-1="" vs.="" wt,="" #significance="" curcumin="" vs.="" dmso,="" $="" significance="" skn-1="" vs.="" con="" rnai,="" bonferroni="" p-value=""><>
3.5. Kurkumin ve Pro-Oksidanlar AHR-1 Aktivitesi Üzerinde Zıt Etkiler Gösteriyor
Azaltılmış AhRexpression/aktivitenin yaşlanma karşıtı etkisi ile tutarlı olarak, verilerimiz kurkuminin, AHR-1-düzenlenmiş yolları, AHR-1 ekspresyonunu/aktivitesini veya etkisini azaltarak baskılayarak C.elegans'ın ömrünü uzatabileceğini düşündürmektedir. ortak aşağı akış sinyal yollarında. Bu nedenle, C.elegans'daki AHR-1 aktivitesini ölçmeye çalıştık, ancak antikorlar (memeli AhR'ye karşı veya CeAhR'ye karşı özelleştirilmiş antikorlara karşı) veya floresan etiketli AHR-1 ekspresyonunu ve hücre altı lokalizasyonunu değerlendirmek için çok sayıda girişimde bulunduk. muhabirler(OP562, UL1709, ZG93) anlamlı kanıt sunmadı. AHR-1'ın in vitro olarak XRE'lere bağlandığını göz önünde bulundurarak [35], AHR-1 aktivitesi için bir okuma olarak XRE güdümlü gen ekspresyonunu kullanmayı düşündük. Bu nedenle, endojen AhR ifade etmeyen ve dolayısıyla hiçbir endojen AhR aktivitesi göstermeyen [95,96] ve AHR için bir okuma olarak XRE güdümlü Lusiferaz indüksiyonunu izlemek için kullanılabilen maymun türevi Cos7 hücrelerine döndük-1 aktivite (Larigot ve diğerleri; bu çalışma ile birlikte sunulmuştur). Cos7 hücreleri, C.elegans AhR/alr-1, ARNT/aha-1 ve insan CYPIA1 geninin [64] AHR{ lusiferaz-bağlı XRE içeren promotörünü ifade eden vektörlerle birlikte transfekte edildiğinde {27}} bazal (araçla işlem görmüş) koşullarda düşük aktivite gösterdi. C.elegans'ta sağlıklı yaşlanmayı destekleyen lutein [97] ve resveratrol [98,99] gibi kurkumin veya diğer nutrasötiklerle yapılan tedavi, AHR-1 aktivitesini önemli ölçüde bastırdı (Şekil 6A-C). Bunun yerine, memelilerde bilinen AhR aktivatörleri olan BaP ve leflunomid, kullandığımız konsantrasyonlarda AHR-1 aktivitesini (Şekil 6A,B) etkilemedi. Özellikle, vahşi tip alel yerine ahr-1(jul45) alelini ifade eden bir vektör ile transfekte edilmiş Cos7 hücrelerinde AHR-1 aktivitesi ortadan kaldırılmıştır (Şekil 6A-C), bu da jul45'in doğru olduğunu düşündürür. fonksiyon kaybı aleli ve ölçülen lusiferaz yoğunluğunun fonksiyonel AHR-1 nedeniyle olduğunu.
Daha sonra kurkuminin doğrudan bağlanma veya dolaylı modülasyon yoluyla AHR-1 aktivitesini azaltıp azaltmadığını araştırmaya çalıştık. Bugüne kadar, C.elegans AHR-1'nin hiçbir ligandı tanımlanmamıştır ve LBD'si hakkında mevcut bilgi bulunmadığından, onu karakterize etmek için bir in silico analizi gerçekleştirdik. İki AHR-1 izoformu, la ve 1b, hizalanmıştır ve uzunlukları farklı olsa da, PASB alan dizileri aynıdır. Bu dizi daha sonra Drosophila melanogaster'ın PASB alanına ve daha önce yapısal modelleri oluşturulmuş omurgalılardan, yani fare (Mus musculus)[100] ve zebra balığı (Danio rerio)[101](Şekil)'e ait iki AhR'ye hizalanmıştır. 6D). Hizalama, sarmal demet (C, D, E sarmalları) ve birbirine bağlanan kısa döngüler dahil olmak üzere esnek bölgeye karşılık gelen, PAS alanındaki en değişken bölgede dizi silmelerini engelleyen omurgasızların ana özelliği ile türler arasında açık farklılıklar gösterdi. bu elemanlar(Şekil 6D,E). Bu silmeler, bu AhR'lerin bağlanma boşluğundaki kullanılabilir alanı azaltabilir. Daha sonra homoloji modellemesi ile AHR-1 PASB'nin bir 3D modelini oluşturduk. Bu model tipik PAS kıvrımını sunar, ancak diğer AhR'lere kıyasla daha kısa bir Do sarmalına sahiptir. Ancak, iç boşluğun bazı özellikleri vardır; daha fazla hidrofobik kalıntı içerir ve bazı iç yan zincirler tarafından yarıya indirilir. Özellikle H365 ve H274 karşı karşıyadır ve boşluğun ortasında bir hidrojen bağı oluşturabilir; dahası, Y332, L363 ve L302 yan zincirleri, ligandlar için mevcut iç alanı azaltarak boşluğu tıkayabilir(Şekil 6E). Bu küçük ve kesik boşluk büyük olasılıkla büyük ligandların (örneğin, TCDD veya kurkumin) bağlanmasına izin vermez. AHR-1 yapısal modeline benzer şekilde, zebra balığı zfAhRla'nın bir modeli, TCDD bağlayıcı paraloglar zfAhR1b ve zfAhR2 [101] ile karşılaştırıldığında LBD boşluğunun kesildiğini gösterdi. Leflunomid gibi küçük ve esnek ligandlar zfAhRla'yı bağlar ve aktive eder, ancak test ettiğimiz leflunomid konsantrasyonu Cos7 hücre sistemimizde AHR-1'i aktive etmedi (Şekil 6B). Daha sonra, LBD'nin küçük boşluğundan sorumlu amino asitlerdeki mutasyonların, klasik ligandların CeAhR'yi aktive etmesine izin verip vermeyeceğini merak ettik. CeAhR L363 tortusu (Şekil 6D), Madrid'de mAhRb-I ve V375'te A375'e karşılık gelir ve bu tortunun ligand bağlanması üzerinde büyük bir etkisi vardır [102]. Benzer şekilde, mAhRb-1'de A375 ve zfAhR1b ve zfAhR2'de A386 ile eşleşen zfAhRla'nın T386'sı(Şekil 6D), zfAhRla'nın TCDD bağlanmasının olmamasına katkıda bulunur ve alanine mutasyona uğradığında, Y296H aynı zamanda TCDD duyarlılığını geri kazandırır. tanıtıldı [101]. Y296 amino asidi, C.elegans(H274)'de zaten bir histidindir. Böylece, CeAhR vektöründeki L363 konumundaki sadece lösini bir alanine (L363A) mutasyona uğrattık (Şekil 6D,E bir okla gösterilmiştir). Ayrıca, H365 pozisyonundaki yakındaki histidini, farelerde Q377 olan glutamine (H365Q) mutasyona uğrattık (Şekil 6D, E bir okla gösterilmiştir), çünkü muhtemelen H274 ile bir hidrojen bağı oluşturur ve AHR'nin küçük boşluğuna katkıda bulunabilir{ {49}} (Şekil 6E). Daha sonra, L363 ve H365 mutasyona uğradığında memeli AhR ligandlarının AHR-1 aktivitesini etkileyip etkilemediğini test ettik. Bununla birlikte, bu değişiklikler, zebra balığı [101] gibi ksenobiyotik ligandlara yanıtı geri yüklemek yerine, ju145 aleline benzer şekilde bazal AHR-1 aktivitesini bile ortadan kaldırdı (Şekil 6F). Bu sonuçlar, C.elegans ve zebra balığının LBD'leri arasında açık farklılıklar gösterir, ancak LBD'nin bazal AHR-1 aktivitesi için temel olduğunu gösterir. Önceki çalışmalarla [35,38,82] birlikte, sonuçlarımız AHR-1'nin klasik ksenobiyotik kaynaklı transaktivasyon yanıtında yer alma olasılığının düşük olduğunu ve bu nedenle ahr-1-düzenlenmiş ile ilgili olmayabileceğini göstermektedir. fizyolojik yaşlanma Bunun yerine, bitki kaynaklı bileşikler, en azından kısmen AHR-1-modülasyonlu yolların baskılanması yoluyla korunmuş etkiler gösterebilir. 3D modelimiz, kurkuminin LBD'sini bağlayarak AHR-1 aktivitesini modüle etmediğini öne sürüyor. Bu nedenle, kurkumin tarafından AHR-1 aktivitesinin baskılanması, antioksidan etkisine bağlı olabilir. Bu olasılık ve C.elegans ahr-1 mutantlarının oksidatif strese karşı artan duyarlılığı ile uyumlu olarak, AHR-1 aktivitesinin gerçekten de ROS-indükleyici ajanlar tarafından arttırıldığını bulduk. Yani, pro-oksidan rotenon ile tedavi edilen Cos7 hücreleri, C.elegans veya murin AhR ile transfekte edildiğinde artan AhR aktivitesi gösterdi, ancak jul45 aleli veya LBD mutasyonlu alel ile transfekte edildiğinde değil(Şekil 6G,H).
Genel olarak, CeAhR aktivasyonu yaşamın erken dönemlerinde oksidatif strese karşı koruma sağlarken, azalmış ifadesi yaşlanmaya karşı koyar ve kurkuminin faydalı yaşlanma karşıtı etkisine aracılık eder (Şekil 7). Kurkumin böylece bağlam ve zamana bağlı bir şekilde redoks TF aktivasyonunun dengelenmesine yardımcı olabilir ve doğrudan antioksidan etkisi ve/veya Nrf2/SKN-1 (veya diğer TF) aktivasyonu yoluyla AhR baskılanmasını destekleyebilir. kurkuminin yaşlanma karşıtı aktivitesine aracılık eder.

Şekil 6. Kurkumin ve pro-oksidanların AHR-1 aktivitesi üzerinde zıt etkileri vardır. (AC) ju145 nokta mutasyonunu (ju145) taşıyan wt AHR-1(wt) veya AHR-1 ile transfekte edilmiş Cos7 hücrelerinde belirtilen bileşiklerle tedaviden sonra AHR-1 aktivitesinin değerlendirilmesi ve AHA-1 ve ayrıca XRE ile indüklenebilir bir lusiferaz. Kutu grafikleri, 3-5deneylerin verilerini gösterir.* p-değeri<0.05><0.05 vs.="" dmso/etoh,="" statistical="" test:="" 2-way="" anova="" and="" tukey's="" multiple="" comparisons="" test.="" (d)="" alignment="" of="" the="" lbds="" from="" c.elegans,="" drosophila,="" and="" zebrafish="" ahrs.="" the="" color="" scheme="" for="" residues:="" red,="" acidic;="" blue,="" basic;="" purple,="" polar;="" yellow,="" cys;="" brown,="" aromatic;="" green,="" hydrophobic;="" orange,="" ser,="" thr;="" gray,="" pro;="" white,="" gly.="" (e)="" secondary="" structures="" attributed="" by="" dsspcont="" to="" the="" ceahr="" pasb="" are="" indicated="" on="" top(light="" gray="" bars="" for="" helices="" and="" dark="" gray="" bars="" for="" β-strands)="" and="" labeled="" according="" to="" the="" pas="" domain="" nomenclature.="" asterisks="" mark="" the="" amino="" acids="" likely="" contributing="" to="" the="" inability="" of="" ceahr="" to="" bind="" big="" ligands.="" amino="" acids="" highlighted="" by="" an="" arrow="" were="" mutated="" for="" the="" investigation="" of="" the="" lbd="" function="" (panels="" f,="" h).i3dmodels="" of="" the="" ceahr="" (left)="" and="" the="" mahr="" (right)="" pasb="" domains="" were="" obtained="" by="" homology="" modeling,="" shown="" in="" a="" cartoon="" representation.="" secondary="" structures="" attributed="" by="" dsspcont="" are="" labeled="" according="" to="" the="" pas="" domain="" nomenclature.="" the="" colored="" internal="" area="" (blue="" for="" ceahr="" and="" yellow="" for="" mahr)defines="" the="" molecular="" surface="" of="" the="" binding="" cavity="" identified="" by="" castp.="" in="" the="" car="" model,="" the="" amino="" acids="" protruding="" into="" the="" binding="" cavity="" (asterisks="" in="" panel="" d)="" are="" labeled="" and="" shown="" as="" blue="" sticks.="" the="" mahr="" amino="" acids="" corresponding="" to="" those="" displayed="" in="" the="" ceahr="" model,="" are="" labeled="" and="" shown="" as="" yellow="" sticks.="" amino="" acids="" highlighted="" by="" an="" arrow="" were="" mutated="" for="" studying="" the="" lbd="" function="" (panels="" f,="" h).="" (f)="" ahr="" activity="" in="" bap-or="" mnf-treated="" cos7="" cells="" transfected="" with="" either="" ahr-1,="" an="" ahr-1="" with="" l363a="" and="" h365o="" mutations="" (lbd="" mutant),="" or="" mouse="" ahr(mahr),="" as="" well="" as="" aha-1="" and="" an="" xre-driven="" luciferase.="" boxplots="" show="" data="" from="" 3experiments.="" statistical="" analysis:2-way="" anova="" and="" tukey's="" multiple="" comparisons=""><0.05 vs.wt,"=""><0.05 vs.dmso.(g)effect="" of="" rotenone="" on="" ahr="" activity="" in="" cos7="" cells="" transfected="" with="" ahr-1(either="" wt="" or="" ju145)="" as="" well="" as="" aha-1="" and="" an="" xre-driven="" luciferase.="" boxplots="" show="" data="" from="" 3="" experiments.="" statistical="" analysis:2-way="" anova="" and="" tukey's="" multiple="" comparisons="" test.*=""><0.05vs.wt, #=""><0.05 vs.="" dmso.(h)effect="" of="" rotenone="" on="" ahr="" activity="" in="" cos7="" cells="" transfected="" with="" either="" ahr-1,="" ahr-1="" with="" l363a="" and="" h365q="" mutations(lbd="" mutant),="" or="" mouse="" ahr(mahr).boxplots="" show="" data="" from="" 3="" experiments.="" statistical="" analysis:2-way="" anova="" with="" tukey's="" multiple="" comparisons=""><0.05 vs.wt/ahr-1,="" #="" p-value=""><0.05 vs.="">
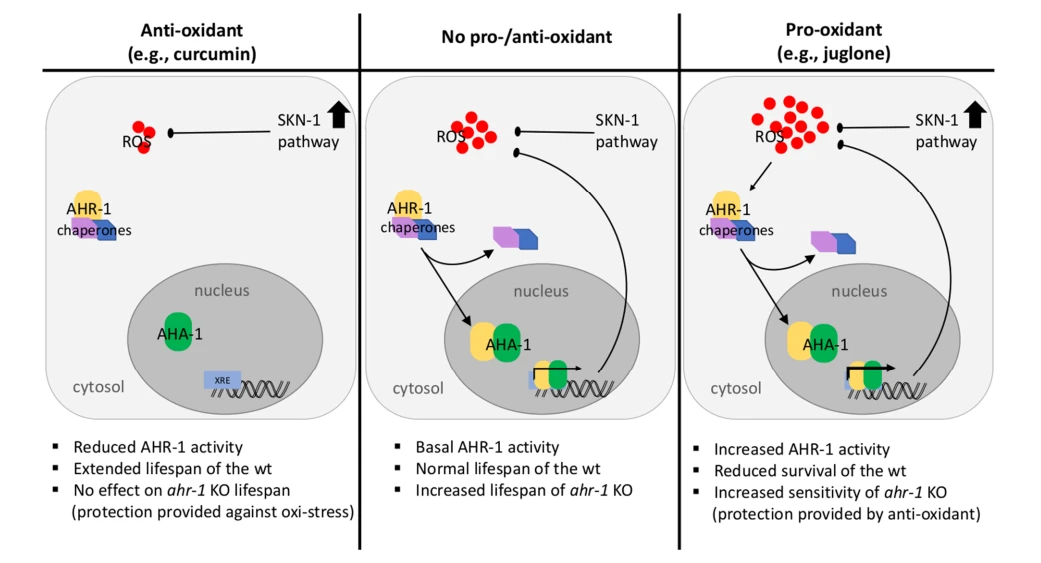
Şekil 7. C.elegan'ın pro- ve antioksidanlara verdiği yanıtta AHR-1 sinyal yolunun önerilen modeli. "Normal" koşullarda (orta panel), AHR-1 hücre içi ROS tarafından etkinleştirilir. Bu, sitozolik AHR-1'den şaperonların dökülmesine ve ardından AHR-1 nükleer translokasyonuna yol açar. Çekirdekte, AHR-1, AHR nükleer translokatör (AHA{) ile bir heterodimer oluşturur. {7}})ve hedef genlerin XRE'lerine bağlanır, bu da hücre içi ROS seviyelerinde azalmaya yol açar. Bu koşullarda ahr-1 işlevinin kaybı, ömrün uzamasına neden olur. Antioksidanların varlığında (sol panel), hücre içi ROS konsantrasyonları düşüktür, bu da kofaktörleri tarafından bağlanan sitoplazmada bulunan AHR-1'a yol açar. Bazal AHR-1 aktivitesinin inhibisyonu, ömrün uzamasına yol açar. Pro-oksidanların varlığında (sağ panel) AHR-1 aşırı ROS tarafından aktive edilir, bu da nükleer translokasyonuna, AHR-1-AHA-1 heterodimer oluşumuna ve hedef gen transkripsiyonu. ahr-1 KO'da, AHR-1-indüklenen hedef genler yoluyla ROS'un azaltılmış detoksifikasyonu, ROS birikimine yol açar ve ahr-1 KO'yu duyarlı hale getirir.
4. Tartışma
AhR ilk olarak memelilerde çevresel toksik maddelerin veya endojen ligandların bağlanması üzerine indüklenen ksenobiyotik tepki aktivitesi nedeniyle keşfedildi, ancak ligand bağlanmasına dayanmayan modülatörler de mevcuttur ancak çok daha az araştırılmaktadır. C.elegans, CeAhR prototip AhR ligandlarını bağlamadığından, klasik ksenobiyotik tepkisinden bağımsız olarak AhR aktivitelerini araştırmak için benzersiz bir model organizmayı temsil eder [35,39]. Bu modeli kullanarak, yaşlanma sürecinde AhR için evrimsel olarak korunan bir işlev belirledik [14] ve bazı memeli AhR modülatörlerinin (yani bakteri, Bal ve UVB) AHR-1 aracılığıyla yaşlanma parametrelerini bir bağlama bağlı şekilde [25]. Burada, diyet polifenol kurkumin tarafından türler arasında AhR tarafından düzenlenen yaşlanma özelliklerinin daha mekanik bir araştırması ile önceki bulgularımızı takip ettik. Kombine in vivo, in vitro ve in silico analizlerimiz yeni ve karmaşık bir senaryo ortaya çıkardı: kurkumin nematodlarda ve insan birincil EC'sinde yaşlanma karşıtı özellikleri en azından kısmen AhR'ye bağlı bir şekilde desteklerken, her iki türdeki antioksidan etkileri de güvenirliliğe bağlı. AhR'den bağımsız ancak öncelikli olarak Nrf2/SKN-1 bağımlı mekanizmalar üzerinde.
Kurkuminin C.elegans'ın fizyolojik yaşlanmasını AHR-1-bağımlı bir şekilde geciktirdiğini ilk kez gösterdik. Kurkuminin olası aşağı akış -1-bağımlı efektörlerini araştırırken, hedeflenmiş ve tarafsız yaklaşımlar kullandık ve kurkumin tedavisi üzerine farklı şekilde düzenlenen genlerin çoğunun AHR-1-bağımlı bir şekilde düzenlendiğini bulduk. Ayrıca, bu genlerin çoğu, AHR-1-tükenmiş ve kurkumin ile tedavi edilmiş hayvanlarda benzer bir ifade modeli sergilemiştir, bu da kurkuminin, AHR-1 aktivitesinin baskılanması yoluyla yaşam süresinin uzamasını desteklediğini düşündürmektedir. Şaşırtıcı bir şekilde, ne hedeflenen ne de transkriptomik analiz, kaplar gibi klasik AhR hedef genleri için büyük bir rol göstermedi, bunun yerine büyük ölçüde nöronlarda yeterince eksprese edilmediği bulundu (Larigot ve diğerleri; bu çalışma ile birlikte sunulmuştur). İlginç bir şekilde, bu bulgular, tüm hayvan transkriptomiklerinin AhR'nin nöronal spesifik etkilerini, bu özel durumda cps genleri yoluyla maskeleyebileceğini gösterebilir. Diferansiyel olarak eksprese edilen genler arasında birçoğunun, hem ahr-1 tükenmesiyle (ve AhR KO farelerinin beyninde) artan gut-45 gibi faz-II-detoksifikasyon enzimlerine ait olduğunu bulduk. ve kurkumin tedavisi, ömürlerinin uzamasına aracılık etmek için. Bunun yerine, kurkumin tedavisi ve ahr-1 tükenmesi, farklı mekanizmalar yoluyla başka bir faz-II-detoksifikasyon enzimi olan GST-4'nin ifadesini arttırdı: ilki esas olarak Nrf2/'den bağımsız iken, ikincisi esas olarak Nrf2/'den bağımsızdır. SKN-1, C.elegans'ta oksidatif stres üzerine GST-4 indükleyen klasik bir redoks TF [103]. Ayrıca, kurkumin, C.elegans'ta (GST-4 ifadesi) ve insan birincil EC'sinde (Sod2 ifadesi ve göç kapasitesi) Nrf2/SKN-1-bağımlı tepkileri indüklerken, aynı zamanda C.eleans'ı oksidatif strese karşı korur. SKN-1-bağımsız bir şekilde. C.elegans'ta, kurkumin çok hasta cilt-1(zu67) mutantlarında [104] ömrünü uzatamazken, GST-4, EGF sinyali ile SKN-1-bağımsız bir şekilde indüklenebilir. [94] ve memelilerde EGF yolu ile AhR arasındaki karışma bildirilmiştir [105].
İlginç bir şekilde ve vahşi tip suşun tersine, sırasıyla Huntington ve Parkinson hastalığı için nematod modellerinde kurkuminin sağlık süresi üzerinde AHR-1-bağımsız bir etkisini gözlemledik. Bu suşlarda, kurkumin tedavisi, protein agregasyonunun sayısını AHR-1 eksikliği ile aynı ölçüde arttırdı, bu da protein agregasyonunun kendisinin koruyucu bir etkisini ve/veya a/'dan bağımsız olarak protein agregasyonuna karşı koruma sağlayan yolların kurkumin aktivasyonunu gösterir. sa-1 tükenmesi. Kurkuminin protein agregasyonu üzerindeki etkisi tartışmalıdır: fibril oluşumunu inhibe ettiği, fakat aynı zamanda pre-fibriller/oligomerik amiloidojenik protein türlerini bağladığı, böylece bunların agregasyonunu hızlandırdığı ve genel nörotoksisiteyi azalttığı gösterilmiştir [106]. Dikkat çekici bir şekilde, kardiyovasküler yaşlanmanın özelliklerine karşı da koruma sağlayan kafein [66,107], A agregatlarını azaltmadan ancak koruyucu Nrf2/SKN-1-bağımlı yolun [108] aktivasyonu yoluyla A kaynaklı felci de önler. C.elegans hastalık modellerinde kurkumin veya tüm-1 tükenmesinin neden olduğu koruyucu etkinin, oligomerik/pre-fibriler türlerin daha az toksik kümelere ayrılmasını teşvik eden mekanizmalar tarafından ve/veya aynı zamanda proteotoksisiteye karşı koruma sağlayabilen Nrf2/SKN-1 gibi diğer mekanizmaların aktivasyonu. Dikkat çekici bir şekilde, detoksifikasyon enzimleri hem XRE hem de ARE (antioksidan duyarlı elementler) içerebilir ve Nrf2/ARE ile AhR/XRE tarafından düzenlenen sinyalleşme arasında bir etkileşim tanımlanmıştır [109]. Bu nedenle, curcumin'in Nrf2 ve AhR tarafından düzenlenen sinyalleşme arasındaki denge yoluyla farklı faydalı yaşlanma karşıtı etkilerini nasıl desteklediğini açıklamak ilginç olacaktır.
Kombine yaklaşımlarımız, kurkuminin AHR-1 aktivitesini inhibe ettiğini gösterdi. Memelilerde, kurkuminin AhR inhibitör etkisine, doğrudan LBD bağlanması [110] veya AhR'yi fosforile eden protein kinaz C'nin inhibisyonu [79] aracılık ettiği öne sürülmüştür. Başka bir çalışma, AhR'nin transkripsiyonel aktivitesinin, her ikisi de curcumin'den etkilenen hücresel redoks durumuna ve kromatin yapısına bağlı olduğunu göstermiştir [111]. AHR-1 TCDD'yi bağlamasa da, XRE'yi in vitro[36] bağlar, ancak poliaromatik hidrokarbonların veya diğer memeli AhR ligandlarının AHR'yi-1 modüle etme potansiyelini ele alan sistematik çalışmalar, öncelikle şu nedenlerle eksiktir: bunu değerlendirmek için uygun araçların eksikliği. Çalışmalarımız bu boşluğu doldurmaya çalışmakta ve lusiferaz deneyleriyle (Larigot ve diğerleri; bu çalışma ile birlikte sunulmuştur) birleştirilmiş AHR-1 ifade eden Cos7 hücrelerinden yararlanmaya ve C. elegans LBD'nin siliko modellemesinde kurkuminin AHR'yi baskıladığını ortaya çıkarmıştır. -1 etkinlik, ancak büyük olasılıkla doğrudan LBD bağlaması ile değil. Çalışmamızda kullanılan in vitro tahlil, CeAhR'nin klasik ksenobiyotik sinyalleme yoluyla aktive edilmediğini doğruladı. Yine de, PON1'de [112,113] bulunan polifenol(kersetin)-yanıt veren XRE gibi CYP1A1'de bulunan "klasik" XRE dışındaki DNA dizilerine AhR bağlanmasından kaynaklanan aktiviteleri ortaya çıkarmayacaktır. İnsan birincil EC'sinde immün boyama, aynı zamanda, AhR aşırı eksprese eden hücrelerde göç kapasitesinin teşvik edici etkisi ile birlikte, kurkuminin AhR aktivitesini baskıladığını gösterebilen, AhR nükleer translokasyonunu indükleyen kurkumin'e karşı da tartışır.
Kurkuminin önleyici etkisinin AhR bağlanmasına dayanmak yerine, aslında Nrf2/SKN-1 aktivasyonu ile ilişkili ve hatta buna bağlı olabilen antioksidan yeteneğini içerdiğini öneriyoruz. Memeli AhR'si, LBD'den bağımsız oksidatif modifikasyon yoluyla ROS tarafından aktive edilir [85], ancak verilerimiz pro-oksidan rotenon tarafından AHR-1 aktivitesinin indüklenmesinin LBD'yi gerektirdiğini göstermektedir. ROS aracılı AhR aktivasyonunun dolaylı bir mekanizması, güçlü AhR ligand FICZ'nin oluşumudur[114]. Yine de FICZ, in silico modelimize göre AHR-1 LBD'ye uymayan büyük bir düzlemsel moleküldür. AHR-1 aktivitesinin ROS tarafından teşvik edildiği ve kurkumin tarafından (doğrudan ROS söndürme yoluyla veya Nrf2 veya diğer antioksidan düzenleyici genlerin aktivasyonu yoluyla dolaylı olarak) inhibe edildiği kesin mekanizma henüz belirlenmemiş olsa da, bu bizim tarafımızdan kuvvetle desteklenmektedir. bulgular: AHR-1 rotenon tarafından aktive edilir ve ahr-1 mutantları daha fazla mtROS, azaltılmış mitokondriyal membran potansiyeli gösterir ve UVB ve BaP'nin yanı sıra H, O ve juglona daha duyarlıdır [25] , her ikisi de ROS üretir[115,116]. Bu bağlamda, ahr-1 mutantlarının, mitohormesisinkilere benzeyen mitokondriyal fonksiyonlarda hafif değişiklik gösterdiğini belirtmek ilginçtir [117. Bu, tüm -1 tükenmesinin (ve AHR'yi inhibe ederek olası kurkumin-1), diğerinde benzer şekilde modüle edilen detoksifikasyon genleri yoluyla C.elegan'ın ömrünü uzattığı bilinen hafif mitokondriyal stres yoluyla sağlık süresini artırabileceğini düşündürmektedir{-1 {20}} mutantlar [118,119]. Ayrıca, Nrf2/SKN-1 ve mitokondrinin, kurkumin tedavisi üzerine AHR-1 aktivitesini modüle etmede bir rol oynayıp oynamadığı, doğrulanması gereken ilginç bir olasılıktır.
Genel olarak, nematod C.elegans tarafından in vivo çalışmalar için sunulan çoklu özelliklerden yararlanarak, AhR'nin atalara ait işlevinin, ksenobiyotik tepkilerden ziyade antioksidanla ilgili faz-ll-enzimlerin düzenlenmesinde olabileceğini öneriyoruz. Yüksek ROS seviyelerinin neden olduğu zararlı etkilerin aksine, AhR eksikliğinin teşvik ettiği faydalı etkilere hafif mitokondri stresi ve/veya hafif ROS üretimi (mitohormesis) aracılık edebilir, bu da Nrf2/SKN'ye dayanır-1. Ayrıca kurkumin ve AhR arasındaki etkileşim için güçlü kanıtlar sunuyoruz. AhR sinyalinin kurkumin inhibisyonu evrimsel olarak korunur ve muhtemelen AhR LBD'ye bağlanma yoluyla değil, kurkuminin ROS süpürücü özellikleri veya Nrf2/SKN'nin aktivasyonu aracılığıyla gerçekleşir-1. Nrf2 sinyal yolu gerçekten de kurkumin tarafından farklı şekillerde aktive edilebilir [91]. Son olarak, verilerimiz curcumin'in hem C.elegans (artan GST-4 ekspresyonu ve oksidatif stres direnci) hem de insan birincil EC'sinde (artan Sod2 ekspresyonu ve göç kapasitesi) bağımsız bir şekilde yaşlanma karşıtı etkileri desteklediğini gösterdi. ), kurkumin ve AHR-1 fonksiyonunun kaybının polyQ eksprese eden hayvanların sağlık süresi üzerindeki ek etkilerini de açıklayabilir.
5. Sonuçlar
Sonuç olarak, in silico, vitro ve in vivo yaklaşımların orijinal bir kombinasyonu aracılığıyla, CeAhR aktivasyonunun yaşamın erken dönemlerinde oksidatif strese karşı koruma sağlarken, azalmış ifadesinin yaşlanmayı önlediğini ve kurkuminin yararlı yaşlanma karşıtı etkisine aracılık ettiğini gösterdik (Şekil 7). . Bu nedenle kurkumin, yaşlanma veya yaşlanma gibi bunların değiştirildiği (AhR'yi artırın ve Nrf2/SKN'yi azaltan-1) detoksifikasyon/antioksidan tepkilerde (AhR'yi baskılayın ve Nrf2'yi etkinleştirin) yer alan farklı transkripsiyon faktörlerinin aktivitesinin dengelenmesine yardımcı olabilir. yaşa bağlı bozukluklar. Çalışmamız, organizma sağlığı ve yaşam süresi üzerinde önemli etkileri olan AhR'nin zaten geniş olan çok işlevli ve bağlama özel etkinliklerine daha fazla karmaşıklık katıyor. Ayrıca, memelilerde tanımlanması daha az olası olan AhR'nin atasal işlevlerini keşfetmek ve araştırmak için nematod sistemini kullanarak ek çalışmalara kapı açar.
Bu makale Antioxidants 2022, 11, 613 adresinden alınmıştır. https://doi.org/10.3390/antiox1140613 https://www.mdpi.com/journal/antioxidants