Potansiyel Çok Hedefli Biyoaktif Bileşikler Olarak SARS-CoV-2'ye Karşı Benzalasetofenon Türevlerinin Hesaplamalı İncelenmesi Ⅱ
Jun 26, 2023
3.7.2. 3CLpro-carmofur kompleksinin stabilitesi
Karmaşık 3CLpro-carmofur, bir dengeleme döneminden (60 ns) sonra 15{12}} ns simülasyon sırasında kararlı dinamikler gösterdi. Omurga ve kompleks için ortalama RMSD değeri sırasıyla 2,34 Å ve 2,81 Å idi. N ve C-terminal artıkları, maksimum artık dalgalanmalar (~10 Å) gösterdi. Bununla birlikte, kararlı ve korunmuş bağlanmamış etkileşimlerde yer alan kalıntılar, nispeten çok daha az dalgalanmalar (~2.0 Å) gösterdi. Rg değeri ~30 ns (Şekil 10) ve kararlı ligand bağlanmasını gösteren kısmi açılımı ifade ettiği bulundu. Ayrıca 3CLpro ve carmofur kenetlenmiş kompleksin kapladığı ilk ve son ortalama yüzey alanının sırasıyla 145.97 nm2 ve 148.49 nm2 olduğu gözlemlendi. Kompleks tarafından işgal edilen ortalama hidrofobik yüzey alanı 148.32 nm2 idi ve bu, bir protein açılımını ve bağlanma cebinin esnekliğini temsil ediyordu. Ek film (S2), carmofur'un 3CLpro'ya ayrıntılı bağlanma modunu ve kararlı dinamiklerini temsil eder. Bu kompleks 6 kararlı oluşturduH4'ü simülasyonlar boyunca tutarlı olan bağlar. Bu istikrarlı olduğuna inanılıyorduH-bağ etkileşimleri, kararlı kompleks oluşumunu destekledi. Kompleks 3CLpro-karmofur kompleksinin tahmini nispi bağlanma enerjisi,− 16,67 kcal/mol. Ayrıca, bağlanma enerjisine katkıda bulunan ana kalıntılar, kalıntı başına ayrışma enerjisi hesaplanarak tanımlandı. kalıntılarThr25, met49, Cys142, Met165, Leu167, Arg188,VeGln189kararlı kompleks oluşumunu destekledi. Ancak, kalıntılarasn142VeGlu166etkileşimlere sıcak bakmadı. Bu kalıntılar arasında;met165en az katkı enerjisine sahip olduğu için bağlanma enerjisine önemli katkılar göstermiştir (− 9,12 kJ/mol). Bununla birlikte, diğer etkileşimli kalıntılar için katkı enerjisi,− 1,42 ila− 5.601 kJ/mol ve kararlı kompleks oluşumuna da katılmıştır.
3.7.3. PLpro - 4-hidroksikordoin (c30) kompleksinin kararlılığı
PLpro–4-hidroksikordoin (c30) kompleksi, 150 ns boyunca kararlı dinamikler ve benzer bir eğilim gösterdi. RMSD değeri, omurga ve kompleks için sırasıyla ~1,2 ila ~1,5 Å ve ~1,8 ila ~2,2 Å arasında ~80 ns'ye kadar kararlıydı. ~80 ns sonra, proteinin artan yüzey alanı nedeniyle RMSD'nin nispeten daha yüksek olduğu (sırasıyla ~ 1.5–2.3 Å ve ~2.2 ila 3.5 Å) bulundu. C için çizilen artık dalgalanmalar, diğerlerine kıyasla 4-hidroksikordoin (c30) yani Val203, Met207, Tyr208, Met209, Ile223, Pro224 ve Pro248'de gözlenen daha az dalgalanma ile kalıntılarda kararlı bağlanmamış temasların oluşumunu ortaya çıkardı. Etkileşmeyen kalıntılar. Rg değeri, Rg değerindeki sabit bir düşüşün ortaya koyduğu gibi kompakt bir küresel şekil oluşturarak MD simülasyonu sırasında kararlı kompleks oluşumu gösterdi. Tamamlayıcı film (S3), 4-hidroksikordoinin (c30) PLpro ile bağlanma modunu sunar. İki tabaka arasında artıkların oluşturduğu halkanın bağlama cebine yakın olduğu ve molekül ile maksimum temasa sahip olduğu gözlendi. Bununla birlikte, bu döngünün esnek doğası nedeniyle, ~85 ns sonra MD simülasyonu sırasında artan SASA ve ligand hareketiyle sonuçlanan bağlama cebinin açıldığını gösterdi. PLpro ve 4-hidroksikordoin (c30) kenetlenmiş kompleksi tarafından işgal edilen ilk ve son yüzey alanı sırasıyla 169.50 nm2 ve 170.29 nm2 idi. Kompleksin işgal ettiği ortalama yüzey alanı 170 nm2 idi. Kompleks, 2'si tutarlı olan 3 H-bağı oluşturdu. 4- hidroksikordoinin (c30) PLpro ile bağlanma afinitesi, nispi bağlanma enerjisi hesaplanarak tahmin edildi. Kompleks - 16.28 kcal/ mol bağlanma enerjisi gösterdi. Bireysel kalıntıların bağlanma enerjisine katkısı hakkında daha fazla yapısal içgörü elde etmek için kalıntı ayrışma enerjisi analiz edildi. 7 tortunun kararlı kompleks oluşumuna önemli ölçüde katkıda bulunduğu ve mevcut bağlanmamış etkileşimleri, yani Val203, Met207, Tyr208, Met209, Ile223, Pro224 ve Pro248'i desteklediği gözlendi (Şekil 11). En önemlisi, Tyr208, Met209, Ile223 ve Pro224 kalıntıları, sırasıyla - 2.97, - 3.89, - 3.82 ve - 2.91 kJ/mol'lük en düşük katkı enerjisini puanlayarak bağlanma afinitesine önemli katkılar gösterdi. Bu makaleyle ilgili ek video https://d oi.org/10.1016/j.compbiomed.2022.105668 adresinde bulunabilir.
3.7.4. PLpro-GRL-0617 kompleksinin kararlılığı
PLpro-GRL-0617 kompleksi kararlıydı ve 120 ns'ye kadar benzer RMSD değerleri sergiledi. Omurga için RMSD değeri ~1,3 Å ila ~3.{13}} Å ve kompleks için ~1,8 Å ila ~4,5 Å aralığındaydı. Omurga RMSD değerindeki istikrarlı düşüş ~120 ns sonra gözlendi (~3.{{20}} Å'den 2.0 Å'ya) ve tüm süre boyunca sabit kaldı MD simülasyon süresi (150 ns). Benzer şekilde, karmaşık RMSD değeri, ~4.5 Å ile ~3.0 Å arasında değişen RMSD değerinde benzer bir sabit düşüş gösterdi. ~120 ns'den sonra, RMSD değeri 150 ns'ye kadar 3,8 Å'ye yükseldi. Gly164, Asp165, Thr211, Leu212, Asn216, Ile223, Ala247, Pro248 ve Tyr265'in kalıntı dalgalanmaları, diğer etkileşime girmeyen kalıntılara kıyasla nispeten daha azdı. Cys225, Val226 ve Cys227, artan yerel esneklik nedeniyle 6 Å'a kadar maksimum kalıntı dalgalanma gösterse de, simülasyon sırasında ligand etkileşimi gözlendi. Ayrıca, Rg değeri ~70 ns'ye kadar kararlı bir kompleks oluşumu gösterdi. Ek olarak, "Lys158'den Val166'ya" ligand bağlama cebine bitişik bir ilmek bölgesinin esnekliği nedeniyle, ligand hareketi diğer bağlama ceplerine (tamamlayıcı film S4) doğru gözlendi ve bu da Rg değerinde ~70 bir artışla kanıtlandı. ns. Ek olarak, GRL-0617, kararlı Rg modeli tarafından desteklendiği gibi, 150 ns MD simülasyonu boyunca kararlı, bağlı olmayan temasları oluşturdu. Başlangıçta, SASA esnek bir bağlama cebi gösterdi ve SASA değerini artırdı. Bu, GRL- 0617 ligandının yeniden yönlendirilmesini tetiklemiş olabilir. PLpro ve GRL{48}} kenetlenmiş kompleksi tarafından işgal edilen ilk ve son yüzey alanı, sırasıyla 164.32 nm2 ve 162.263 nm2 olarak kaydedildi. Kompleksin kapladığı ortalama yüzey alanı 165.02 nm2 idi. Benzer şekilde artan SASA değerleri, esas olarak bağlayıcı cep kalıntılarının esnek yapısından dolayı tercih edilen kararlı kompleks oluşumu için bağlayıcı cep açıklığını gösterdi. Kompleks, simülasyon periyodu boyunca 2 H-bağı tutarlı olan 4 H-bağı oluşturdu. Ayrıca, PLpro-GRL-0617 kompleksi - 11.83 kcal/mol'lük bağlanma enerjisi gösterdi. Ek olarak, bireysel kalıntıların bağlanma enerjisine katkısına ilişkin yapısal içgörüler, kalıntı başına ayrışma enerjisi hesaplanarak nicelleştirildi. 9 kalıntının kararlı kompleks oluşumuna önemli bir katkısı olduğu ve mevcut bağlanmamış etkileşimleri, yani Thr211, Leu212, Asn216, Ile223, Cys225, Val226, Cys227, Ala247 ve Pro248'i desteklediği gözlendi (Şekil 12). En önemlisi, Ile223, Cys225, Val226 ve Cys227 kalıntıları, sırasıyla - 0.91, - 0.74, - 1.86 ve - 1.08 kJ/mol'lük en düşük katkı enerjisini puanlayarak bağlanma afinitesinde önemli katkılar gösterdi. .
Bu makaleyle ilgili ek video https://d oi.org/10.1016/j.compbiomed.2022.105668 adresinde bulunabilir.

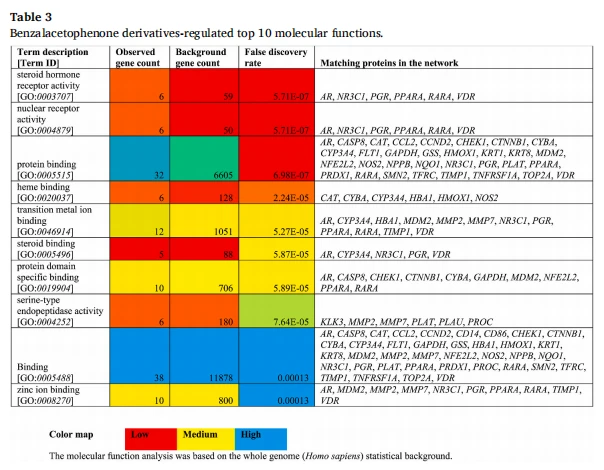
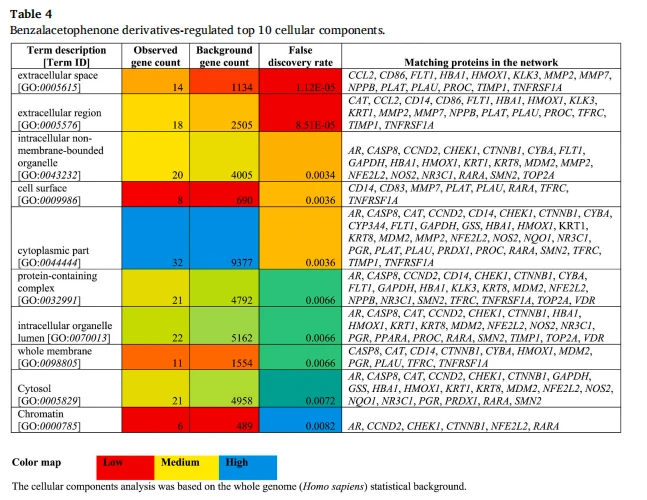
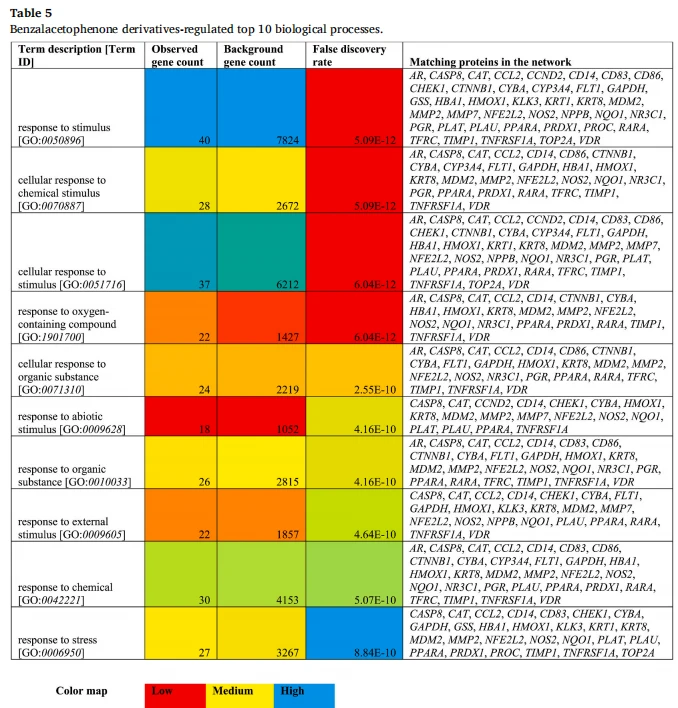
Şekil 5. Hücresel bileşenleri, moleküler işlevi ve biyolojik süreçleri sunan benzalasetofenon türevleri tarafından düzenlenmiş proteinlerin GO analizleri.
3.7.5. Başak proteininin stabilitesi - mallotofilippen D (c42) Kompleksi
Spike protein-mallotophilippen D (c42) kompleksi, incelenen diğer komplekslere benzer şekilde 100 ns'lik bir dengeleme süresinden sonra stabil dinamikler gösterdi. RMSD değeri, omurga ve kompleks için sırasıyla ~1,2 Å ila 3 Å ve 1,8 Å ila ~4 Å arasında değişmiştir. Bu kompleks 100 ns'den sonra bir denge durumuna ulaştığı için simülasyon 200 ns'ye uzatıldı. Gözlemlenen ortalama omurga ve karmaşık RMSD değerleri sırasıyla ~2.6 Å ve ~3.8 Å idi. C için çizilen artık dalgalanmalar, diğer etkileşime girmeyen kalıntılara kıyasla mallotofilippen D (c42) ile bağlanmamış temaslara katılan kalıntılar için daha az dalgalanma ortaya çıkardı. Ancak Alal344-Trp353 ve Glu{20}}Thr523 kalıntılarının oluşturduğu esnek halka bölgesi oldukça dinamikti ve daha yüksek dalgalanmalar gösterdi (~3 Å). Phe342, Leu368 ve Ile434 dahil olmak üzere ligand-protein etkileşimlerine aktif olarak katılan kalıntılar en az dalgalanmayı gösterdi (tamamlayıcı film S5). Ayrıca, MD simülasyonu sırasında kararlı bir kompleks oluşturuldu ve 10 ns sonra Rg değerindeki bir düşüşün ortaya koyduğu gibi kompakt bir küresel şekil oluşturdu. Kompleks, 100 ns sonra stabil bir Rg değeri izledi ve ligand ile protein arasında stabil bir kompleks oluşturmak için gerekli olan uygun katlanmayı gösterdi. Başak proteini ve mallotofilippen D (c42) kenetlenmiş kompleksi tarafından işgal edilen ilk ve son yüzey alanı, sırasıyla 112.38 nm2 ve 112.6 nm2 idi. Kompleksin işgal ettiği ortalama yüzey alanı 111.4 nm2 idi. Ek film (S5), mallotophilippen D'nin (c42) başak proteini ile ayrıntılı bağlanma modunu gösterir. Kompleks, 3'ü tutarlı olan 6 H-bağı oluşturdu. Mallotofilippen D'nin (c42) başak proteinine bağlanma afinitesi, nispi bağlanma enerjisi hesaplanarak tahmin edildi. Ek olarak, kompleks - 34.10 kcal/mol bağlanma enerjisi gösterdi. Ayrıca, kalıntı başına katkı enerjisi, kararlı kompleks oluşumuna önemli ölçüde katkıda bulunmak için bağlama cebinden Phe342, Ala363, Asp364, Tyr365, Leu368, Leu371, Ala372, Phe374, Ile434, Trp436, Val511 ve Leu513 olmak üzere 12 kalıntı ortaya çıkardı (Şek. 13). Bağlanma cebinden Phe342, Leu368, Ile434 ve Trp436 kalıntıları, sırasıyla - 5.78, - 9.39, - 4.71 ve - 4.20 kJ/mol'lük en düşük kalıntı ayrışma/katkı enerjisini puanlayarak bağlanma afinitesine önemli katkılar gösterdi.
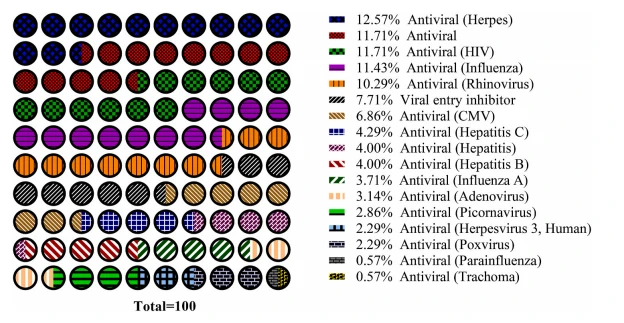
Şekil 7. Öngörülenanti-viral spektrumçoklu virüslere karşı benzalasetofenon türevlerinin. Benzalasetofenon türevlerinin çoğunluğunun Herpes virüsüne karşı (yüzde 12,57) ve en azının da Trachoma'ya (yüzde 0,57) karşı aktif olduğu tahmin edildi.
3.7.6. Spike proteinin stabilitesi - DRI-C23041 kompleksi
Spike protein-DRI-C23041 kompleksi ayrıca, spike protein mallotophilippen D (c42) kompleksine benzer şekilde 100 ns'lik bir dengelenme süresinden sonra stabil dinamikler gösterdi. Başlangıçta, omurga ve kompleks RMSD değerleri kademeli olarak omurga ve kompleks için ~1,8 Å'dan 5 Å'a ve ~2 Å'den ~5,1 Å'a yükseldi. Val367, Leu368, Asp339, Asp364, Asp389 ve Leu441 kalıntıları, DRI-C23041 ile stabil bağlanmamış etkileşimlere katıldıkları için nispeten daha az dalgalanma (~4.0 Å) gösterdi. Ala475 ila Asn487 artıkları tarafından oluşturulan esnek döngü, maksimum artık dalgalanmalar (~11.0 Å) gösterdi. Ek olarak, ~18 Å sabit bir Rg değeri ile kararlı bir kompleks oluşturulmuştur. Ek olarak, ligandın saat yönünün tersine dönüşü, komplekslerin kısmi açılması üzerine yaklaşık ~63 ns'de gözlendi, bu da artan Rg değerinin 19.5 Å'ya yükselmesiyle kanıtlandı (tamamlayıcı film S6). Bununla birlikte, ligand orijinal konumuna geri döndü ve kararlı konformasyonları işgal etti ve kompleks, Rg değerinin 18.3 Å'ya düşmesiyle desteklenen kompakt küresel şekiller oluşturdu. Ligandın bu yapısal geçişi, 150 ns MD simülasyonu sırasında kararlı kompleks oluşumunu destekledi. Spike protein ve DRI-C23041 kenetlenmiş kompleksi tarafından işgal edilen ilk ve son yüzey alanı 109.379 nm2 ve 107.334 nm2 idi. Kompleksin kapladığı ortalama yüzey alanı 110.57 nm2 idi. Kompleks, 2'si tutarlı olan 4 H-bağı oluşturdu. DRI-C23041 ile başak proteini arasındaki bağıl bağlanma enerjisinin - 3,10 kcal/mol olduğu bulundu. Kalıntı başına katkı enerjisi, kararlı kompleksin oluşturulmasına önemli ölçüde katkıda bulunmak için bağlama cebinden Asp339, Glu340, Asp364, Asp389, Asp398, Asp405, Glu406, Asp427, Asp428, Asp442 ve Glu516 olmak üzere 11 kalıntı ortaya çıkardı (Şekil 14) ve bunlar kalıntılar, sırasıyla - 11,90 kJ/mol ila - 27,17 kJ/mol arasında değişen, kalıntı ayrışma/katkı enerjisi başına en düşük puanı aldı.
3.7.7. Temel bileşen ve dinamik çapraz korelasyon matrisi
150 ns MD simülasyonlarından elde edilen, yani beş kompleks için 100–150 ns ve başak protein-mallotofilippen D kompleksi için 150–200 ns gibi, kararlı yörüngeden ortaya çıkan konformasyonel esnekliği ve konformasyon çeşitliliğini keşfetmek için temel bileşen analizi yaptık. Maksimum ortak hareket, ilk 10 özvektör/ana bileşen tarafından yakalanır. Bu nedenle, ilk iki özvektörü/PC'yi (Ana bileşenler) ayrıntılı olarak tam olarak inceledik. Şekil 15, ilk iki özvektörün 2D projeksiyonunu temsil eder. Sırasıyla 3CLpro, PLpro ve başak proteini hedefleyen Carmofur, GRL-0617 ve DRI-C23041 olarak adlandırılan bu çalışmada kullanılan standart moleküllerin simülasyonlar sırasında daha büyük konformasyon çeşitliliği gösterdiği gözlendi (kırmızı çizgi olarak gösterilmiştir) Şekil 15A–C'de) Bununla birlikte, seçilmiş ligandlar, yani 3'-(3-metil-2-butenil)-4' -O- -D-glukopir anosil{{22} Sırasıyla 3CLpro, PLpro ve spike proteini hedefleyen },2'-dihidroksikalkon, 4-hidroksikordoin ve mallotofilippen D, simülasyon sırasında daha az konformasyon çeşitliliği gösterdi. Bu, 3CLpro ile 3'-(3-metil-2-bütenil)-4′ -O- -D-glukopiranosil-4,2' -dihidroksikalkon komplekslerinin, 4-PLpro'lu hidroksikordoin ve başak proteinli mallotofilippen D, simülasyon sırasında iyi dengelenir ve stabilize edilir. Ek olarak, kompleksler (standart moleküller) tarafından işgal edilen daha büyük konformasyonel alan, maksimum sayıda çeşitli konformasyonlarla daha yüksek konformasyonel esneklik sergiledi. İlginç bir şekilde, 3'-(3-metil-2-butenil)-4' -O- -D-glukopiranosil-4,2' -dihidroksikalkon, {{ 3CLpro, PLpro ve başak proteini ile hidroksikordoin ve mallotofilippen D, ilgili kontrollerine/standartlarına kıyasla nispeten çok daha az konformasyonel alan işgal etti. Bu nedenle, taranan moleküllerin standart ilaçlardan daha etkili olabileceğini öneriyoruz (Şekil 15D–F).
Komplekslerde gözlenen C atomlarının dinamik çapraz korelasyonu, ligand bağlama alanlarının toplu hareketine ilişkin daha fazla yapısal içgörü kazanır. Şekil 16, tüm simüle edilmiş komplekslerdeki C atomlarının uyumlu kalıntı hareketini temsil eder. Çapraz kehribar renkli çizgi, her kalıntının kendisiyle güçlü bir kendi kendine korelasyonu gösterir. Korelasyonun antikorelasyona genliği, sırasıyla kehribar renginden mavi renge ölçeklenir. 3'-(3-metil-2-butenil)-4' -O- -D glukopiranosil-4,2' -dihidroksi kalkon-3 kompleksinde CLpro, bağlanma bölgesi kalıntıları, 3CLpro'nun N-terminal alanı ile anti-korelasyon gösterir. Bununla birlikte, karmaşık 3CLpro-karmofur (standart) çok daha düşük genlikle benzer antikorelasyon gösterirken, antikorelasyon genliği orta düzeydedir. Bu nedenle, 3'-(3-metil-2-butenil)- 4' -O- -D-glukopiranosil-4,2' -dihidroksikalkonun bağlanmasını öneriyoruz; standart molekülü, yani karmofur ile karşılaştırıldığında konformasyonel geçişi destekleyecek ve gelişmiş bağlanmamış etkileşimlerle stabil kompleks oluşumunu destekleyecektir. Benzer şekilde, başka bir kompleks 4-hidroksikordoin PLpro, 50-175 kalıntıları arasında güçlü bir korelasyon gösterdi, ancak PLpro'ya bağlı standart ilaç GRL-0617 ile kompleks halindeki aynı kalıntılar, nispeten daha zayıf ortak hareket gösterdi. N-terminal bölgesi ile 175 ila 240 arasında değişen bağlayıcı cep kalıntıları tarafından ifade edilen ortak hareket, GRL-0617-PLpro kompleksini stabilize etmede aktif bölge kalıntılarının önemini ortaya çıkardı. Bağlayıcı cep korelasyonu, karmaşık GRL-0617-PLpro'da kayboldu. Standart molekül DRI-C23041-spike protein kompleksi, 390 ila 470 artıkları için kendisiyle güçlü işbirliği hareketi gösterirken, kompleks spike-mallotophilippen D'deki bu kalıntılar anti-kooperatif gösterdihareket. Ayrıca, spike-mallotophilippen D kompleksi, antitüm kalıntılar tarafından ifade edilen güçlü kendi kendine korelasyon dışında işbirlikçi hareket.

Bu nedenle, dinamik çapraz korelasyon matrisi, çalışılan komplekslerin konformasyonel esnekliğini vurgulayarak proteindeki işbirlikçi ve işbirlikçi olmayan hareketi gösterdi ve karşı taraftaki işbirlikçi olmayan hareketle ilaçlanan kararlı bağlanmamış etkileşimler, bağlanma cebinin açılmasını ve kapanmasını tetikledi. MD simülasyonu sırasında kararlı kompleks oluşumunu kolaylaştıran kalıntılar.

Şekil 9. 3CLpro-3'-(3-metil-2-butenil)-4′-O- -D-glukopiranosil-4'i tanımlayan parametreler, 2'-dihidroksikalkon kompleksi yapısal kararlılıkları. (a) omurga ve kompleksin RMSD'si, (b) RMSF, (c) Rg, (d) SASA, (e) H-bağı etkileşimlerinin sayısı ve (f) bağlayıcı cep kalıntılarının önemini vurgulayan katkı enerjisi grafiği kararlı kompleks oluşumu.
Tablo 6
En çok isabet alan komplekslerin bağlanma serbest enerjisi ve etkileşim enerjilerinin MM-PBSA hesaplamaları.

4. Tartışma
Bağışıklık güçlendiricilerin, zayıflamış bağışıklıkta daha yaygın oldukları için COVID-19 dahil olmak üzere çok sayıda bulaşıcı pandemiye karşı profilakside baş rol oynayabileceği belirtilmiştir. Daha önce, bağışıklık güçlendiricilerin COVID-19 ile başa çıkmadaki rolü, keminformatik ve biyoinformatik yaklaşımlar kullanılarak açıklanmıştı [34]. Benzer şekilde, mevcut çalışma yeni koronavirüse karşı bağışıklık güçlendiriciler ve anti-viral ajanlar olarak benzalasetofenonları (flavonoidlerin öncüleri) [35] araştırmaya çalıştı.
Başlangıçta bileşikler alındı ve Lipinski'nin beş kuralıyla açıklandığı gibi moleküler ağırlık, H-bağı donörleri, akseptörler ve lipofilikliğe dayalı olarak ilaca benzerlik tahminine tabi tutuldu. Burada, benzalasetofenonların çoğunluğu, oral biyoyararlanımlarını düşündüren pozitif ilaca benzerlik skorları ile tanımlandı [16]. Ek olarak, oral biyoyararlanımlarını artırmak için negatif ilaca benzerlik skorları olan benzalaceto fenonların yapısında birkaç değişiklik yapılabilir. Ancak, biyolojik fonksiyonlarının etkilenmemesi gerektiğine dikkat edilmelidir. Ayrıca, pozitif ilaca benzerlik skorları olan ilk 5 ligand, yani abyssinone VI (c1), isobavachalcone (c11), 4-hidroksikordoin (c30), mallotophilippen E (c31) ve oksijenli ksantohumol (c39) için tahmin edildi. lipofiliklik, suda çözünürlük, farmakokinetik ve ilaca benzerlik, çünkü bunlar ilaç etkisi için dikkate alınması gereken merkezi kısıtlamalardır. İlginç bir şekilde, bu 5 vuruştan hiçbiri Lipkinski'yi (moleküler ağırlık) ihlal etmedi.<500, number of H-bond acceptors <10, number of H-bond donors <5, and XLogP<5) [36] and Veber (number of rotatable bonds ≤10, and the total polar surface area ≤140, also questions 500 molecular weight cutoff in Lipinski rule of 5) [37] rules.
Ek olarak, hipoksi ile indüklenebilir faktör (HIF)-1, p53, nükleer faktör kappa B (NF-kB), toll benzeri reseptör, tümör nekrozu gibi araştırmalar altında benzalasetofenonlar tarafından toplam 55 farklı yol düzenlenmiştir. faktör (TNF), çatal uçlu kutu, alt grup O (FoxO), östrojen, Wnt, NOD benzeri reseptör ve interlökin-17 (IL-17) sinyal yolu ve sitokin-sitokin reseptörü etkileşimi belirlendi ilgilenmekbağışıklığın düzenlenmesi. HIF ekspresyonu ve stabilizasyonunun hipoksi ve mikroplarla ilişkili patogenez tarafından tetiklendiği bildirilmiştir. Ayrıca, HIF şunları düzenler:konak bağışıklık fonksiyonu, fagosit mikrobisid kapasitesini ve T hücrelerinin farklılaşmasını ve ardından bir sitotoksik aktiviteyi arttırır. Ek olarak, HIF sinyal yolu iltihaplanma, makrofaj metabolizması ve polarizasyon, mikrobiyal enfeksiyon (hem viral hem de bakteriyel), antijen sunumu vedoğuştan bağışıklık[38]. Benzer şekilde, HIF-1 sinyal yolunun (hsa04066), manipüle edilmesinde önemli bir rol oynayacak olan FLT1, GAPDH, HMOX1, NOS2, TFRC ve TIMP1 genlerinin modülasyonu yoluyla düzenlendiği belirlendi.bağışıklık sistemikoronavirüs enfeksiyonlarında ve etkilenen dokudaki iltihaplanma ile ilgilenir. Ayrıca, p53 sinyal yolu,bağışıklık tepkisikilit düzenleyicilerin işlemleri yoluylabağışıklık sinyal yolları.
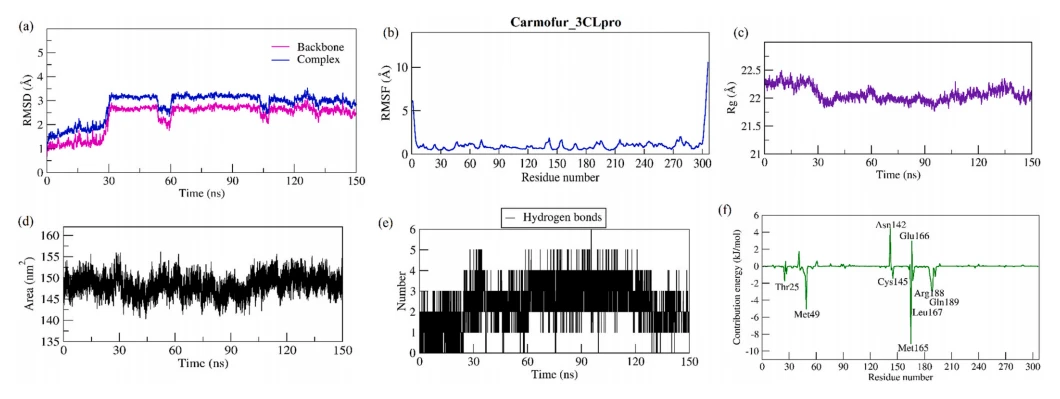
Şekil 10. 3CLpro-Carmofur kompleksinin yapısal kararlılıklarını açıklayan parametreler. (a) omurga ve kompleksin RMSD'si, (b) RMSF, (c) Rg, (d) SASA, (e) Hbond etkileşimlerinin sayısı ve (f) kararlı komplekste bağlayıcı cep kalıntılarının önemini vurgulayan katkı enerjisi grafiği oluşum.
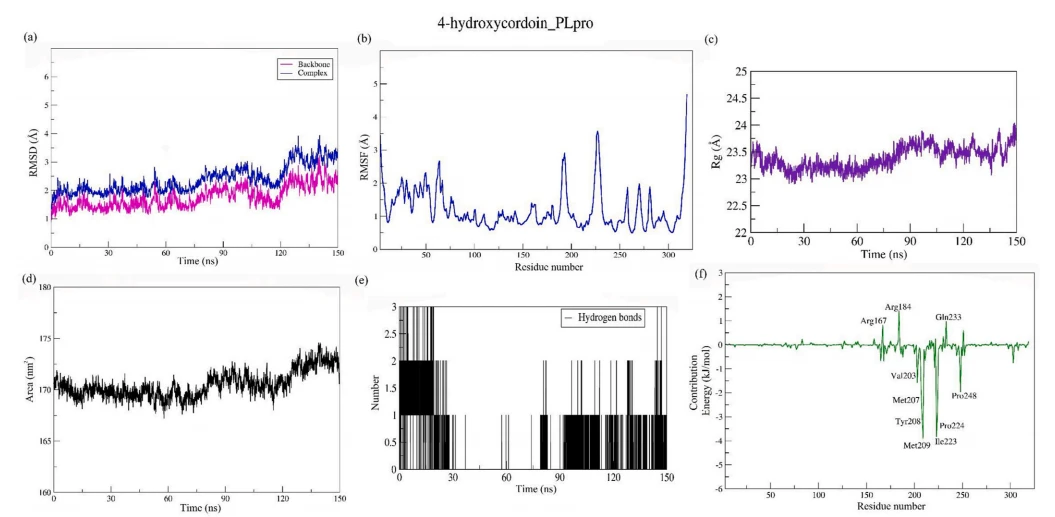
Şekil 11. PLpro-4-hidroksikordoin kompleksinin yapısal kararlılıklarını açıklayan parametreler. (a) omurga ve kompleksin RMSD'si, (b) RMSF, (c) Rg, (d) SASA, (e) H-bağı etkileşimlerinin sayısı ve (f) bağlayıcı cep kalıntılarının önemini vurgulayan katkı enerjisi grafiği kararlı kompleks oluşumu.
Ayrıca, p53 sinyal yolaklarından çoklu genlerin sitokin üretimi, patojen algılama, inflamasyon ve ölü hücrelerin temizlenmesinde de rapor edildiği bildirilmiştir [39]. Bu nedenle, benzalasetofenonlar, p53 sinyal yolundan (hsa04115) CASP8, CCND2, CHEK1 ve MDM2 genlerinin düzenlenmesinde yer alabilir ve bağışıklığı güçlendirmek için sitokinleri tetikleyebilir ve ardından ölü dokuların vücuttan temizlenmesini sağlayabilir. TNF veya IL'ler gibi enflamatuar sitokinler, doğuştan gelen ve kazanılmış bağışıklık tepkilerini etkiler. Ek olarak, IL-6 veya TNF [40] gibi tek sitokinlerin blokajı yoluyla üretilen patogenez kabul edilerek bunların önemi gösterilmiştir. Burada, benzalasetofenonların ayrıca, enflamatuar ile doğrudan ilgili olan NF-kB (hsa04064), TNF (hsa04668) ve IL-17 (hsa04657) sinyal yolu ve sitokin-sitokin reseptörü etkileşimi (hsa04060) gibi çoklu yolları modüle etmesi öngörülmüştür. sitokinler. Toll benzeri reseptörler, mikrop türevi yapısal olarak korunmuş molekülleri tanımak için genellikle nöbetçi hücrelerde (dendritik hücreler ve makrofajlar) eksprese edilir vedoğuştan bağışıklık sistemi. Ek olarak, spesifik bağdaştırıcı molekülleri toplarlar, NF-kB gibi transkripsiyon faktörlerini aktive ederler, doğuştan gelen bağışıklık tepkilerinin sonucunu belirtirler ve patojenlere karşı doğuştan gelen bağışıklık tepkisinin birçok yönünde önemli bir rol oynarlar [41]. Burada, benzalasetofenonların, toll-benzeri reseptör sinyal yolağındaki üç proteini, yani CASP8, CD14 ve CD86'yi düzenlediği belirlendi. Ayrıca, alın (Fox) transkripsiyon faktörlerinin FoxO alt ailesi, hücre ve homeostatik fonksiyonda çok önemli bir rol oynar.bağışıklık ile ilgili hücrelerT hücreleri, B hücreleri, nötrofiller ve diğer lenfoid olmayan soylar dahil [42]. Ayrıca benzalasetofenonlar, üç proteini (CAT, CCND2 ve MDM2) 130 arka plan proteinine karşı 0,0137 yanlış keşif oranıyla modüle ederek FoxO sinyal yolunu (hsa04068) düzenledi. Benzer şekilde, östrojen reseptörlerinin bağışıklık hücrelerini geliştirdiği ve ardından bunların membranla başlatılan steroid sinyallemesine katıldığı kabul edilmiştir. Ek olarak, tip I interferon ve ayrıca doğal sitokin üretimi üretirler ve doğuştan gelen bağışıklık hücrelerinin yanıtını geliştirir veya işlev görürler [43]. Benzer şekilde, mevcut çalışma, benzalasetofenonların, interferonları ve sitokin üretimini tetikleyebilen ve bağışıklık hücrelerinin hızlı yanıt vermesine yardımcı olabilen üç proteinin yani MMP2, PGR ve RARA'nın modülasyonu yoluyla östrojen sinyal yolunu (hsa04915) düzenlediğini gösterdi. Benzer şekilde, Wnt sinyali, doğal öldürücü hücrelerin gelişiminde çok çeşitli olan immün hücre regülasyonu, T-hücrelerinin başlatılması, doku onarımında makrofaj etkisi ve T-hücrelerinin timopoezisi dahil olmak üzere birçok biyolojik süreçte önemli bir rol oynar [44]. Burada benzalaceto fenonları, CCND2, CTNNB1 ve MMP7 gibi üç proteinin modülasyonu yoluyla Wnt sinyal yolunu (hsa04310) düzenledi ve doğal öldürücü hücrelerin, T hücrelerinin ve makrofajların geliştirilmesine ve düzenlenmesine katkıda bulunabilir. Benzer şekilde, NOD benzeri reseptörler mikrobiyal tanımada işlev görür ve konakçı savunma mekanizmaları bildirilir ve ayrıca konağın doğuştan gelen bağışıklık tepkisini tetikler. Ek olarak, NOD benzeri reseptör ailesi, 3 proteinin, yani CASP8, CCL2 ve CYBA'nın modülasyonu yoluyla düzenlenen konakçı-patojen etkileşimleri ve enflamatuar yanıtlarla [45] ilgilidir.

Benzalasetofenonlar-hedefler-yollar etkileşiminde, tüm ağın birden çok parametresi değerlendirildi. Tüm düğümlerin komşularıyla olan ortalama bağlantısı, "komşuluk bağlantısı" [46] tarafından tanımlanır. Bu değişken, yukarıda bahsedilen ağda komşular tarafından yüzde 63,8 oranında tanımlandı. Ek olarak, "aradalık merkeziliği", diğer düğümler arasındaki en kısa yol üzerinde bulunan düğüm frekansını ölçer. Bu, düğümün ağdaki düğümler arasında bir köprü görevi görmesini işaret eder. Bu, en kısa yolu ve bağımsız düğümlerin bir [47] üzerine düşen sıklığını belirlemeye yardımcı olur ve komşu sayısıyla 1 korelasyonlu olduğu gözlemlenmiştir. ve düğümler arasındaki en kısa yolu hesaplar. Bu, bireysel düğümün verilen ağ üzerindeki etkisini en hızlı şekilde anlamaya yardımcı olur [47]. Mevcut çalışmada, yakınlık merkeziliğinin yüzde 2 oranında komşulara bağımlı olduğu gözlemlenmiştir.
Yeni virüs için yeni antiviral ajanların tanımlanması sırasında, iyi tanınan bir virüse yönelik antiviral özelliğin izini sürmek kolay bir oyun oynayabilir. Bunu varsayarak, anti-viral biyolojik spektrumda ilgilenilen benzalaceto fenonlarını araştırdık. Bunda seçilen benzalasetofenonların adeno, sitomegalo, hepatit, herpes, trachoma,influenza, parainfluenza, picorna, pox, rhino ve human immunodeficiency virus'a karşı anti-viral özelliklere sahip olduğu gözlendi. Ayrıca, GO analizi bulaşıcı hastalık yollarının düzenlenmesini de tanımlamıştır, yani insan papilloma virüsü enfeksiyonu (hsa05165), Kaposi sarkomu ile ilişkili herpes virüsü enfeksiyonu (hsa05167), viral karsinojenez (hsa05203), HTLV-I enfeksiyonu (hsa05166), herpes simpleks enfeksiyonu (hsa05168) ) ve viral miyokardit (hsa05416), KEGG veritabanıyla ilgili viral enfeksiyonla ilgilidir. Bu sonuçlar bizi, benzalasetofenonların yeni koronavirüse karşı olası anti-viral özelliğini araştırmaya teşvik etti.
Benzalasetofenonların SARS-CoV-2'ye karşı olası anti-viral etkisini değerlendirmek için, ligandların yeni koronavirüsün 3 hedefine, yani 3CLpro'ya karşı bağlanma afinitesini araştırmak için in silico moleküler kenetleme ve tüm atoma açık MD simülasyonlarını kullandık, PLpro ve spike protein reseptörü bağlama alanı. Burada, tüm benzalasetofenonlar - 5.0 kcal/mol'den daha az bağlanma enerjisi puanladı. Birkaç başka bileşik, yani 4-klorokalkon (c4), obokalkolakton (c17), 4'-O-metilbavakalkon (c22) ve mallotofilippen E ( c31) 3CLpro,2' -hidroksikalkon (c2), 4-klorokalkon (c4), 4- hidroksikalkon (c5), okanin (c7), 2' ,3,4,4' ,6 ile ′ -pentahidroksikalkon (c8), kalkon (c10), ( artı )-tefroson (c12), pinocembrinkalkon (c13), 4' -O-metilbavakalkon (c22) ve 2' ,4' -dihidroksi-6' - metoksi-3' ,5' -dimetilkalkon (c43) ile PLpro ve 2' -hidroksi sikalkon (c2), 4-klorokalkon (c4), kalkon (c10), desmetilksan thohumol (c21), 4 ′ -O-metilbavalkalkon (c22), 7- metoksipraekanson B (c29), mallotofilippen C (c41) ve 2' ,4' - dihidroksi-6' -metoksi-3' ,5 Spike proteinli ′ -dimetilkalkon (c43). Ek olarak, 3CLpro, otomatik bölünmeye uğrayan ve temel olarak - 8.5 kcal/mol bağlanma enerjisine sahip obokalkolakton (c17) tarafından hedeflenen fonksiyonel proteinleri [48] etkileyen ubikuitin sistemini değiştirmek için tüm alt replikaz alt birimlerini serbest bırakan nsp5'te mevcuttur. H-bağı etkileşimleri yoktu. Koronavirüsün viral döngüsü, pp1a ve pp1ab yoluyla tetiklenen replikaz proteinleri tarafından düzenlenir ve esas olarak 4-hidroksikordoin (c30) ve ksantohumol (c38) tarafından bağlanma afinitesi ile modüle edilen PLpro [49] tarafından işlenir - Her iki ligand tarafından 8,2 kcal/mol. Benzer şekilde, koronavirüs, ACE2'yi konakçı hücreye girmek için bir geçit olarak kullanır [50,51] ve büyük ölçüde abissinon VI (c1) tarafından hedeflenmiştir. Bu sonuçlar, "çoklu bileşik(ler)-çoklu protein(ler)" etkileşim teorisi yoluyla çoklu proteinlere olan yakınlıkları nedeniyle virüs anatomisinin çeşitli bölgelerini hedeflemek için kullanılabilecek çoklu molekülleri (benzer bir kategoriden) yansıtır. Sunulan çalışmanın önemli yönlerinden biri, araştırılmakta olan toplam benzalasetofenonların yüzde 7.71'ini kapsayan viral giriş inhibitörlerinin tanımlanmasıdır (Şekil 7). Bu nedenle, benzalasetofenonların spike protein reseptörü bağlama alanı ile bağlanması, spike proteini olarak eklenmiştir ve normal hücre homeostazını ovmak için doğrudan bir anahtardır. Ayrıca, dikkate alınması gereken önemli hususlardan biri, irrasyonel bir değerlendirme olarak "doğru molekül-doğru hedef-doğru süre"nin, "çok bileşenli" yoluyla çözülebilecek COVID{101}} dahil olmak üzere ilgilenilen patogeneze yönelik taşifilaksiye neden olabileceğidir. "tek bileşik-tek hedef" etkileşim teorisi yerine -çoklu protein" etkileşimi. Ek olarak bu çalışma, TNF, NF-kB ve IL{105}} sinyal yolları ve sitokin-sitokin reseptörü etkileşimi (Şekil 17) gibi bazı spesifik yolların düzenlenmesine işaret etmiştir (Şekil 17).bağışıklık düzenlemesive ayrıca sitokin fırtınasını manipüle eder.
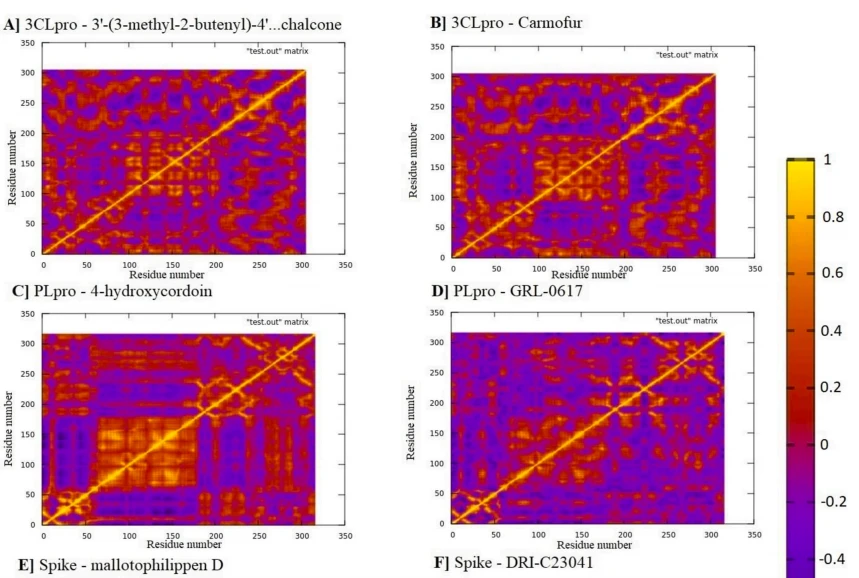
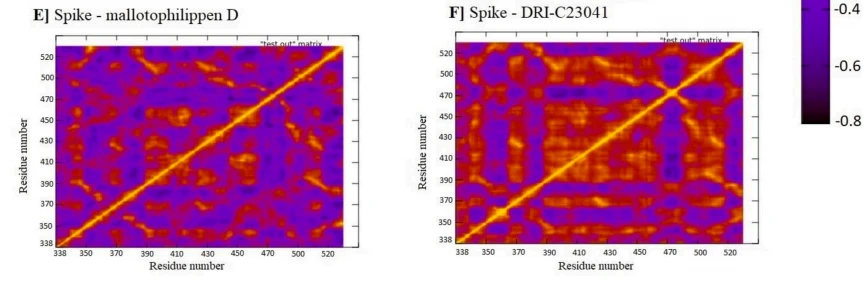
Şekil 16. 3CLpro, PLpro ve benzalasetofenonlar (A, C, E) ve standart ilaçlar (B, D, F) için komplekslerde gözlenen C atomlarının dinamik çapraz korelasyon matrisi vesırasıyla başak proteini. Kehribar renkli pozitif bölgeler, C atomlarının (Cij=1) güçlü bir şekilde ilişkili hareketlerini temsil ederken, negatif bölgelermavi renkli bölgeler, ters korelasyonlu hareketleri temsil eder (Cij=-1).
Daha önce, ilaç taşıma değişkenliğini, protein allosterik inhibisyonunun tanımlanmasını, seçici enzim inhibisyonundaki kiralitenin etkisini, geri dönülmez modu keşfetmeyi kaydetmek için homoloji modellemesini, moleküler yerleştirmeyi, MD simülasyonlarını ve MM-PBSA değerlendirmesini uygulamak için çok sayıda araştırma yapılmıştır. reseptörlerin ve ligand-protein etkileşimlerinin değerlendirilmesi [52-56]. Benzer şekilde, mevcut çalışmada, tanımlanmış potansiyel öncü bileşiklerin ve standart moleküllerin ilgili hedefleriyle moleküller arası etkileşim stabilitesi, 150 ns için klasik MD simülasyonu (200 ns için spike proteini - mallotophilippen D (c42) kompleksi) aracılığıyla analiz edildi. Sonuçlar, 3'-(3-metil-2-bütenil)-4' -O- -D-glukopiranosil-4, 2' -dihidroksikalkonun (c35) sergilendiğini ortaya koydu 3CLpro ile standart bir carmofur molekülüne kıyasla kararlı dinamikler. Daha önce carmofur'un, 3CLpro'nun Cys145 kalıntısı ile etkileşime girerek Vero E6 hücrelerinde (EC50=24.30 μM) koronavirüs replikasyonunu inhibe ettiği rapor edilmişti [57]. Benzer şekilde, bu çalışmada carmofur'un - 1,42 kJ/mol katkı enerjisi puanlayarak Cys145 kalıntısı ile etkileşime gireceği tahmin edilirken, 3'-(3-metil-2-butenil)-4 ′ -O- -D-glukopiranosil-4,2' -dihidroksikalkon bileşikleri, Cys145 için - 4,24 kJ/mol puan aldı. Ek olarak, Cys145–His41, 3CLpro'nun SARS-CoV-2 poliproteinlerinin bölünmesinde önemli bir rol oynayan iki katalitik dyad kalıntısıdır [58]. Ek olarak, diğer araştırma grupları da Cys145'i hedeflemenin 3CLpro'ya karşı yeni antiviraller tasarlamadaki potansiyel rolünü bildirmiştir [59,60]. İlginç bir şekilde, 150 ns MD simülasyonu sırasında bu bileşiklerin her ikisinde de korunmuş bağlanma bölgesi etkileşimleri (Thr25, Met49 ve Met165) gözlemledik. Benzer şekilde, 4-hidroksikordoin (c30), bir PLpro inhibitörü olarak tarandı ve standart bir molekül GRL-0617 ile karşılaştırıldığında kararlı bir kompleks oluşturdu. Daha önce, GRL-0617'nin, 2,1 μM IC50 değerine sahip SARS-CoV-2 ile enfekte Vero E6 hücrelerinde güçlü bir PLpro inhibitörü olduğu rapor edilmişti [61, 62]. Mevcut çalışmada, hem GRL-0617 hem de 4-hidroksikordoin (c30), kararlı RMSD oluşturdu ve sırasıyla 150 ns ve 200 ns MD üretim çalışması boyunca Ile223 ve Pro248 ile ortak etkileşimleri paylaştı ve her ikisinin de uygun olduğunu ortaya çıkardı PLpro inhibitörleri olarak etki eder.
Ayrıca daha önce Bojadzic ve ark. DRI-C23041'in spike protein RBD alanını 0,52 μM IC50 ile inhibe ettiğini bildirmiştir [63]. Mevcut çalışmada, mallotofilippen D (c42) bir spike protein düzenleyici olarak tanımlandı ve standart bir molekül olan DRI-C23041 ile karşılaştırıldığında spike proteininin RBD alanına karşı daha iyi bir bağlanma afinitesi gösterdi. MM-PBSA sonucu, mallotofilippen D'nin (c42) - 34,10 kcal/mol bağlanma serbest enerjisine sahip olduğunu ortaya koyarken, DRI-C23041'e göre - 3,10 kcal/mol, bu da mallotofilippen D'nin (c42) başak proteinine daha yüksek afinitesine işaret eder. . Ayrıca, hem DRI-C23041 hem de mallotophilippenD'nin (c42), 150 ns MD simülasyonu sırasında spike proteini RBD alanının ortak bir Leu368 tortusu ile etkileşime girdiği bulundu. PCA ve DCCM için komplekslerin araştırılması ayrıca, 3CLpro, PLpro ve başak proteinli kalkonların, standart moleküllere kıyasla minimum sayıda farklı konformasyonla nispeten çok daha az konformasyonel alan ve konformasyonel esneklik kaplayarak simülasyon sırasında iyi dengelendiğini ve stabilize edildiğini gösterdi. Çağdaş, 4-hidroksikordoin (c30), en yüksek ilaca benzerlik puanına sahip bir bileşik, 9 proteini düzenler; yani FLT1, CD86, CASP8, RARA, KLK3, PLAT, CTNNB1, HMOX1 ve TOP2A CASP8, CTNNB1, TOP2A, CD86, PLAT ve HMOX1 gibi 6 proteinin viral enfeksiyonla ilgili olduğu izlendi. CASP8 kaspaz 8'i kodlar; CASP8-bağımlı apoptotik hücreyi ve reseptörle etkileşime giren protein (RIP) 1 ve 3'e bağımlı nekrotik hücre ölüm yolunu hedefleyen bir viral patojen. Bu nedenle, CASP8 aktivitesinin elde edilmesi, RIP1 ve 3'ü baskılayarak hücre içi viral patojenlere karşı konak savunmasında rol oynar [64]. Benzer şekilde CTNNB1, katenin -1'yi kodlar ve interferon protein sentezinden sorumludur [65] ve bağışıklık yanıtının ana modülatörüdür. Ayrıca viral enfeksiyonlara müdahale edebilir [66]. Benzer şekilde TOP2A, topoizomeraz 2'yi kodlar ve bunun inhibisyonu, kronik viral enfeksiyon sırasında telomerik deoksiribonükleik asit hasarını ve T-hücre disfonksiyonunu indükler [67]. Ayrıca, CD86, T-lenfosit aktivasyon antijeni CD86'yi kodlar ve antiviral CD8 artı T-Hücresi işlevini ve bağışıklık sürveyansını kontrol eder [68]. PLAT, plazminojen aktivatörünü kodlar ve akciğerlerin zararlı enflamasyonuna ve lokal fibrin pıhtısı oluşumuna katkıda bulunur; influenza virüsü enfeksiyonlarına karşı konak savunmasında yer alabilir [69]. Benzer şekilde, HMOX1 heme oksijenaz 1'i kodlar. Daha önce, SARS-CoV-2 açık okuma çerçevesi 3a proteininin insan HMOX1 proteinine yüksek güvenle bağlandığı rapor edilmişti. HMOX1 yolu, trombosit agregasyonunu önleyebilir ve anti-trombotik ve anti-enflamatuar özelliklere sahip olabilir ve diğerlerinin yanı sıra, bunların tümü COVID{75}} hastalarında gözlemlenen kritik tıbbi durumlardır [70].
Daha önce, SARS-CoV-2'nin genomik RNA'sının, bağışıklık genlerini manipüle edebildiği ve fonksiyonlarını yok edebildiği belirtilmişti. Ek olarak, genomik RNA'nın interlökin etkileşimlerini tetikleyebileceği ve sitokin fırtınasını da tetikleyebileceği belirtilmiştir [71]. Ayrıca, bir çalışma, bağışıklık tepkisinin tanınmasını ve saldırısını önlemek için COVID enfeksiyonunda mikroRNA'nın (miRNA) bit kısmını araştırıyor. Bir anda SARS-CoV-2, miRNA'yı emmek ve bağışıklık sistemi işlev bozukluğunu zorlamak için pamuk veya sünger görevi görebilir. Ayrıca miRNA'sını kodlar, konakçı hücreye girer ve konağın bağışıklık sistemi tarafından tanınır [72].
Benzalasetofenonlar (şalkonlar) bağışıklık tepkisini manipüle etmede rapor edildiğinden [11] ve RNA, bağışıklık genlerinin senteziyle ilgilendiğinden, konakçının genomik RNA etkileşimini manipüle etmedeki olası rollerinin daha fazla araştırılması gerekir.
5. Sonuç
Bu çalışma, bir bağışıklık güçlendirici olarak çoklu benzalasetofenonları ve bunların SARS-CoV-2'ye karşı anti-viral spektrumlarını araştırdı. Bu çalışma, abisinon VI (c1), isobutrin (c16), obochalcolactone (c17), 4-hidroksikordoin (c30),3'-(3-metil-2-butenil) gibi olası kurşun antiviral ajanları bildirdi. )-4′-O- -D-glukopiranosil-4,2'-dihidroks sikalkon (c35), ksantohumol (c38) ve 4-mallotofilippen D (c42) COVID'e karşı -19 3CLpro, PLpro ve spike proteini hedefleyerek. Ek olarak, zenginleştirme analizi, çeşitli düzenlemeleri belirledi.
HIF-1, p53, NF-kB, Toll benzeri reseptör, TNF, FoxO, östrojen, Wnt ve IL-17 gibi yollar. Ayrıca, bağışıklık sistemini düzenlemek ve sitokin fırtınasını manipüle etmekle doğrudan ilgili olan NOD benzeri reseptörler ve sitokin-sitokin reseptörleri tetiklendi. Benzer şekilde, viral ve bakteriyel enfeksiyona karşı çoklu yolların tetiklenmesi ve bağışıklık sisteminin temel olarak tehlikede olduğu endokrin deregülasyon vardı. Bu sonuçlar, benzalasetofenon türevlerinin COVID'e karşı terapötik seçeneğini önermektedir-19. Mevcut bulguları sınırlayarak, bu çalışmada sunulan bulguların, ıslak laboratuvar deneysel protokolleriyle daha fazla doğrulanması gereken işlemci simülasyonlarına dayandığına dikkat çekiyoruz.
Referanslar
[1] AR Fehr, S. Perlman, Coronavirüsler: replikasyonlarına ve patogenezlerine genel bir bakış, Methods Mol. Biol. 1282 (2015) 1–23, https://doi.org/10.1007/978- 1-4939-2438-7_1.
[2] Y. Dong, X. Mo, Y. Hu, X. Qi, F. Jiang, Z. Jiang, S. Tong, Epidemiology of COVID-19 in children in China, Pediatrics 145 (2020), e20200702, https://doi.org/ 10.1542/peds.2020-0702.
[3] CJ Andersen, KE Murphy, ML Fernandez, Obezite ve metabolik sendromun bağışıklık üzerindeki etkisi, Adv. Nutr. 7 (2016) 66–75, https://doi.org/10.3945/ an.115.010207.
[4] SG Deeks, BD Walker, AIDS virüsü enfeksiyonuna karşı bağışıklık tepkisi: iyi, kötü veya her ikisi, J. Clin. Yatırım. 113 (2004) 808–810, https://doi.org/10.1172/JCI21318.
[5] M. Gendrot, E. Javelle, A. Clerc, H. Savini, B. Pradines, Chloroquine as a prophylactic ajan olarak COVID-19, Int. J. Antimikrob. Ajanlar 55 (2020), 105980, https://doi.org/10.1016/j.ijantimicag.2020.105980.
[6] V. Mody, J. Ho, S. Wills, A. Mawri, L. Lawson, MCCJC Ebert, GM Fortin, S. Rayalam, S. Taval, Kimotripsin benzeri proteaz (3CLPro)'nun tanımlanması potansiyel anti-SARS-CoV-2 ajanları olarak inhibitörler, Commun Biol 4 (2021) 93, https:// doi.org/10.1038/s42003-020-01577-x.
[7] D. Shin, R. Mukherjee, D. Grewe, D. Bojkova, K. Baek, A. Bhattacharya, L. Schulz, M. Widera, AR Mehdipour, G. Tascher, PP Geurink, A. Wilhelm, GJ van der Heden van Noort, H. Ovaa, S. Müller, KP Knobeloch, K. Rajalingam, BA Schulman, J. Cinatl, G. Hummer, S. Ciesek, I. Dikic, Papain benzeri proteaz SARS-CoV'yi düzenler{{ 3}} viral yayılma ve doğuştan gelen bağışıklık, Nature 587 (2020) 657–662, https://doi.org/10.1038/s41586-020-2601-5.
[8] Y. Huang, C. Yang, XF Xu, W. Xu, SW Liu, SARS-CoV-2 başak proteininin yapısal ve işlevsel özellikleri: COVID-19 için potansiyel antivirüs ilacı geliştirme, Açta Eczacılık Günah. 41 (2020) 1141–1149, https://doi.org/10.1038/s41401-020- 0485-4.
[9] F. Yazdanpanah, MR Hamblin, N. Rezaei, Thebağışıklık sistemive COVID-19: dost veya düşman, Life Sci. 256 (2020), 117900, https://doi.org/10.1016/j. lfs.2020.117900.
[10] Z. Rozmer, P. Perj´esi, Doğal olarak oluşan kalkonlar ve biyolojik aktiviteleri, Phytochemistry Rev. 15 (2016) 87–120, https://doi.org/10.1007/s11101-014- 9387-8.
[11] JS Lee, SN Bukhari, NM Fauzi, Kalkon türevlerinin bağışıklık sistemi oyuncuları üzerindeki etkileri, Drug Des DevelTher 9 (2015) 4761–4778, https://doi.org/ 10.2147/DDDT.S{7 }}
[12] D. Zhou, D. Xie, F. He, B. Song, D. Hu, Bir pürin ve benzensülfonamid parçası içeren yeni kalkon türevlerinin antiviral özellikleri ve etkileşimi, Bioorg. Med. kimya Lett 28 (2018) 2091–2097, https://doi.org/10.1016/j. bmcl.2018.04.042.
[13] X. Tang, S. Su, M. Chen, J. He, R. Xia, T. Guo, Y. Chen, C. Zhang, J. Wang, W. Xue, Novel chalcone türevleri içeren a 1, 2,4-triazin kısmı: tasarım, sentez, antibakteriyel ve antiviral aktiviteler, RSC Adv. 9 (2019) 6011–6020, https://doi. org/10.1039/C9RA00618D.
[14] Y. Fu, D. Liu, H. Zeng, X. Ren, B. Song, D. Hu, X. Gan, Yeni kalkon türevleri: sentez, antiviral aktivite ve etki mekanizması, RSC Adv. 10 (2020) 24483–24490, https://doi.org/10.1039/D0RA03684F.
[15] A. Lagunin, S. Ivanov, A. Rudik, D. Filimonov, V. Poroikov, DIGEP-Pred: yapısal formüle dayalı olarak ilaca bağlı gen ekspresyon profillerinin in silico tahminine yönelik web hizmeti, Bioinformatics 29 (2013) 2062–2063, https://doi.org/ 10.1093/bioinformatics/btt322.
[16] CA Lipinski, Kurşun ve uyuşturucu benzeri bileşikler: beşin kuralı devrimi, Drug Discover. Bugün Tekno. 1 (2004) 337–341, https://doi.org/10.1016/j. ddtec.2004.11.007.