Clostridioides Difficile'nin Yüzey S-Katmanı Proteinlerine (SLP'ler) Konakçı Bağışıklık Yanıtları
Nov 23, 2023
Soyut:
Nozokomiyal bir patojen olan Clostridioides difficile, antibiyotikle ilişkili ishale neden olan yeni ortaya çıkan bir bağırsak patojenidir. C. difficile enfeksiyonu, bağırsak kolonizasyonunu ve bağırsak epitel bariyerinin bozulmasını içerir ve bu da inflamatuar/immün yanıtların indüklenmesine yol açar. İki ana ekzotoksin olan TcdA ve TcdB'nin ekspresyonu, C. difficile patojenitesinin ana nedenidir. Bakteriyel bol hücre duvarı proteinlerinin veya SlpA gibi yüzey S katmanı proteinlerinin (SLP'ler) konakçı epitel hücrelerine bağlanması virülans için kritik öneme sahiptir. Toksin olmalarına ek olarak, bu yüzey bileşenlerinin oldukça immünojenik olduğu da gösterilmiştir. Son çalışmalar, C. difficile SLP'lerinin, bakterilerin bağırsak epitel hücrelerine yapışmasında, sıkı bağlantıların bozulmasında ve konakçı hücrelerin bağışıklık tepkisinin modülasyonunda önemli rol oynadığını göstermektedir. Bu proteinler aşılar ve yeni terapötik ajanlar için yeni hedefler olarak hizmet edebilir. Bu derleme, SLP'lerin konakçı bağışıklığını tetiklemedeki immünolojik rolüne ilişkin mevcut anlayışımızı ve bunların C. difficile enfeksiyonuyla mücadele için aşıların ve yeni terapötiklerin geliştirilmesinde kullanımlarını özetlemektedir.

cistanche tubulosa-bağışıklık sistemini iyileştirir
Cistanche Enhance Immunity ürünlerini görüntülemek için buraya tıklayın
【Daha fazlasını isteyin】 E-posta:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Anahtar Kelimeler:
antibiyotikle ilişkili ishal; hücre duvarı proteinleri; terapötikler; S-tabaka proteinleri; aşı
1. Giriş
Toksin üreten bir anaerobik bakteri olan Clostridioides difficile, antibiyotik kullanımı, genetik, eksozom, mikrobiyal, ve diğer konak faktörleri [1]. C. difficile'nin seçilimi ve çoğalması yaşamı tehdit eden psödomembranöz kolit durumunu tetikler [2,3]. Hastalık Kontrol ve Önleme Merkezleri'nin 2019 raporundaki son tahminlere göre, C. difficile yalnızca Amerika Birleşik Devletleri'nde 2017 yılında 223.900 enfeksiyona ve 12.800 ölüme neden olmuş ve 1 milyar dolar zarara neden olmuştur [4]. C. difficile enfeksiyonunun (CDI) ilk atağının tedavisi antibiyotiklerle sağlanır. Bununla birlikte, hastalığın yüksek düzeyde nüks oranı vardır; ilk CDI tedavisinden sonra %20-30 ve ilk nüks sonrasında %50'den fazlası [5]. Bu nedenle dünya çapında CDI ile mücadele için acil terapötik müdahaleye ihtiyaç vardır. C. difficile patogenezindeki ana moleküler faktörlerden biri, C. difficile'deki 19.6-kb patojenite lokusu (PaLoc) içinde yer alan genler tarafından kodlanan iki ana toksinin, TcdA ve TcdB'nin ekspresyonu ve salgılanmasıdır. genom [6]. Toksin üretiminin düzenlenmesi ve toksin üretiminde yer alan çeşitli transkripsiyon faktörleri Chandra ve ark. tarafından kapsamlı bir şekilde incelenmiştir. başka yerde [6].
CDI patogenezi, C. difficile sporunun bağırsakta çimlenerek çoğaldıkları ve bağırsak mukozasında kolonize oldukları bitkisel hücrelere sindirimi/çimlenmesi ile başlar [1,6]. Bağırsak mukozal bariyeri (IMB), patobiontlara karşı doğuştan gelen savunmanın ilk hattıdır. Konakçı IMB, birbirine sıkı bağlantılarla sıkı bir şekilde bağlanan ve goblet hücreleri tarafından salgılanan kalın koruyucu bir mukus tabakasıyla kaplanmış çeşitli tipte epitel hücrelerinden oluşur [1]. IMB'nin bozulması, C. difficile'nin epitelyal hücrelerin yüzeyine tutunmasına izin verir; burada virülans faktörlerinin işlenmesi, hasara ve C difficile patojenitesinin ortaya çıkmasına yol açar [1,6]. C. difficile de dahil olmak üzere birçok Gram-pozitif ve negatif türdeki bakteri hücre duvarı, yüzey katmanı proteinleri (S-katman proteinleri veya SLP'ler) olarak adlandırılan ve ağırlıklı olarak bol miktarda protein molekülünden oluşan, yüzeye açık bol miktarda protein molekülü katmanıyla ilişkilidir. Elektron mikroskobu ile görüldüğü gibi parakristalin düzenli iki boyutlu bir dizi olarak düzenlenmiş düşük ve yüksek moleküler ağırlıklı bir alandan oluşan SlpA proteini [7]. SLP katmanının diğer hücre duvarı proteini (Cwp) bileşenleri daha az miktarda bulunur ve kötü karakterize edilir ancak aynı zamanda CD patojenitesinde önemli roller oynar. Son yıllarda, SLP'ler üzerine yapılan araştırmalar, bu proteinlerin yüzey yapışmasında, Toll benzeri reseptörlerin aktivasyonunda, sitokin üretiminin indüksiyonunda ve konakçı immün tepkisinin bir parçası olarak inflamatuar aktivasyonda anahtar rol oynadığı gösterildiğinden, artan ilgi görmüştür. bakterinin büyümesinde ve hayatta kalmasında rol oynar [7-9].
Bu derlemede, ana SlpA bileşenlerine ve diğer daha az miktarda bulunan Cwps'ye karşı konakçı immün tepkisini, C. difficile SLP'lerine ilişkin son bilgiler ışığında tartışıyoruz ve bunların yeni bir aşı ve CDI patogeneziyle oldukça ilgili terapötik hedef olarak kullanım potansiyellerini vurguluyoruz.

cistanche tubulosa-bağışıklık sistemini iyileştirir
2. CDI'ya Karşı Doğuştan Bağışıklık Yanıtlarını Barındırın
Hayvan modellerinde toksik olmayan C. difficile (NTCD) suşlarının kolonizasyon sonrasında patojenik C. difficile suşlarına karşı koruma sağladığı gösterilmiştir. 1980'lerin başında, Wilson ve Sheagren, antibiyotik sefoksitin ile sterilize edildikten sonra bir NTCD suşu tarafından kolonize edilen hamsterlerin, toksijenik bir C. difficile (TCD) suşu ile tehdit edildiğinde korunduğunu bildirdi [10]. Ancak C. perfringens, C. bifermentans, C. beijerincki, C. sporogenes ve ısıyla öldürülmüş, toksik olmayan C. difficile NTCD suşu gibi diğer türlerle yapılan tedavi CDI'ya karşı koruma sağlamada başarısız oldu. Ayrıca, kolonize olan NTCD, tehditten önce vankomisin tedavisi kullanılarak sterilize edildiğinde koruma kaybedilmiştir [11]. Bu bulgulardan cesaret alan NTCD-M1 suşunun sporları, tekrarlayan CDI'den (rCDI) muzdarip sınırlı sayıda klinik hastada önemli bir başarı ile (yaklaşık %50) kullanılmıştır [12]. Şu anda CDI tedavi seçenekleri sınırlıdır ve büyük ölçüde vankomisin, fidaksomisin ve metronidazol gibi antibiyotiklerin kullanımına dayanmaktadır [13,14]. Antibiyotiklerin aşırı kullanımı, sağlıklı mikrobiyomun disbiyozuna yol açar ve daha sonra nüks edebilen C. difficile gibi patobiontların seçimine daha fazla yardımcı olur [1,15]. Bu zorlukları etkili bir şekilde aşmak için alternatif tedavi yöntemlerine acilen dikkat edilmesi gerekmektedir. Bu tedavi seçeneklerinden bazıları, bağırsak epitelinin toksin aracılı hasarını önleyen bezlotoksumab infüzyonu gibi TcdB'ye karşı monoklonal antikorlar kullanılarak C. difficile toksinlerinin nötralizasyonunu içermektedir [16]. Bir diğer büyüleyici yöntem ise, birinci derece aile üyeleri arasındaki sağlıklı bir donörden dışkı mikrobiyota nakli (FMT) kullanılarak sağlıklı bir mikrobiyomun restorasyonudur. FMT, tekrarlayan CDI'ye karşı %90'a varan başarı oranlarıyla umut verici sonuçlar göstermiştir [17,18]. Ne yazık ki bu çalışmalar, bu hastaların korunmasında konakçı immün tepkisinin rolünü ele almamıştır. Bu nedenle, canlı NTCD'nin, toksijenik TCD'ye karşı güçlü bir bağışıklık tepkisine neden olan bazı antijenleri/hücre duvarı bileşenlerini salgıladığı ileri sürülebilir. Benzer şekilde, FMT koruması da yeterince tanımlanmamıştır. Bu nedenle, FMT uygulamasının konak tepkilerini nasıl tetiklediğini anlamak, anahtar antijenlerin tanımlanmasına yardımcı olabilir ve bu da bağışıklık tepkisinin daha iyi anlaşılmasına ve CDI'ye karşı yeni aşıların geliştirilmesine yardımcı olabilir.
Bağırsakta, konağın doğuştan gelen bağışıklık sistemi, istilacı bir patojene karşı ilk savunma hattıdır ve bu, güçlü bir konakçı adaptif bağışıklık tepkisinin şekillendirilmesinde ve kurulmasında çok önemli bir rol oynar [1]. Doğuştan gelen tepki temel olarak üç bölümden oluşur: (i) bağırsak epiteli ve mukozal katman (fiziksel bariyer), (ii) epitel hücrelerinin, Paneth hücrelerinin ve bağırsak mikrobiyotasının bazı üyelerinin boşaltım ürünü olan antimikrobiyal peptitler (kimyasal) bariyer) ve (iii) nötrofiller, eozinofiller, makrofajlar, doğuştan gelen lenfoid hücreler (ILC'ler) ve dendritik hücreler (DC'ler) gibi istilacı patojenle savaşmak için birden fazla doğuştan sinyal yolu tarafından düzenlenen doğuştan gelen bağışıklık hücrelerinin toplanması yoluyla hücresel tepkiler. 1]. Konakçı hücreler, yüzeylerinde patojenle ilişkili moleküler modeller (PAMP'ler) adı verilen mikroplar üzerindeki belirli korunmuş bakteri imzalarını tanıyan TLR'ler gibi Desen Tanıma Reseptörleri (PRR'ler) taşır. Bu PRR'ler aynı zamanda Ücret benzeri Reseptörler (TLR'ler) olarak da bilinir. Bu tehlike sinyallerinin (PAMP'ler) TLR'ler tarafından tanınması üzerine, konakçı hücre bir bağışıklık tepkisini tetikler. Bu bağlamda, Toll-like Reseptör 4'ün (TLR4), konakçının inflamatuar yanıtının başlatılmasına katılan bir eylem olan C. difficile tehlike sinyallerini tanıdığı gösterilmiştir. Bu bağlamda, C. difficile'nin SLP'lerinin, konağın TLR-4'si ile etkileşime girdiği, C. difficile flagella'nın ise TLR5 aracılığıyla etkileşime girdiği gösterilmiştir [19,20].

erkekler için cistanche faydaları-bağışıklık sistemini güçlendirir
3. C. difficile'deki S-katman proteinleri (SLP'ler)
Son on yılda, C. difficile'nin yüzey katmanı (S-katmanı) proteinleri büyük ilgi görmüştür. SLP'ler ilk olarak Kawata ve arkadaşları tarafından tanımlandı. 1984'te toplam hücre kütlesinin yaklaşık %15'ini oluştururlar [21,22]. SLP'ler birçok farklı prokaryotik türde bulunur. SLP'lerin çoğunluğu hücrelerin en dış yüzeyinde iki boyutlu parakristalin bir dizide tek bir protein olarak düzenlenmiştir [7]. C. difficile'de S katmanı esas olarak heterodimerik SlpA proteinlerinden oluşur. SlpA, tek bir slpA geni tarafından kodlanan yüksek moleküler ağırlıklı (HMW) bir protein ve düşük moleküler ağırlıklı (LMW) bir proteinden oluşan bir heterodimerdir; LMW SLP açıktaki üst katmanı oluştururken HMW SLP alt katmanı oluşturur. LMW SLP, C. difficile'de benzersizdir. C. difficile 630 suşunda slpA lokusu, 11 slpA paralogunu barındıran 36,6 kb'lik bir bölgedir. Ayrıca genom boyunca dağılmış 17 ek paralog daha vardır [23,24]. Bu paralog genler artık klostridial hücre duvarı proteinleri (CwpX) olarak adlandırılmaktadır; burada X, tanımlanan paralog numarasını (X=1-29) belirtir ve Tablo 1'de açıklanır. Bununla birlikte, SlpA, Cwp66, Cwp84 ve CwpV, bu yeni adlandırma kuralının benimsenmesinden önce adlandırılmıştı [23]. Tüm Cwps'ler, bir N-terminal sinyal peptidi ve HMW SLP'ye önemli benzerlik gösteren üç varsayılan hücre duvarı bağlanma alanı içeren tipik proteinlerdir [25,26]. Farklı C. difficile suşları slpA lokusunda varyasyon göstermiştir ve yaklaşık 12 farklı S-katmanlı kaset tipi belgelenmiştir. Diğer 28 Cwps, S katmanının ~%5-20'sini oluşturan polimerize parakristalin katmana sabitlenen aksesuar bileşenler olarak işlev görür [7].
Tablo 1. Clostridium difficile 630 genomunda bulunan 29 fincan geninin varsayılan işlevleri.
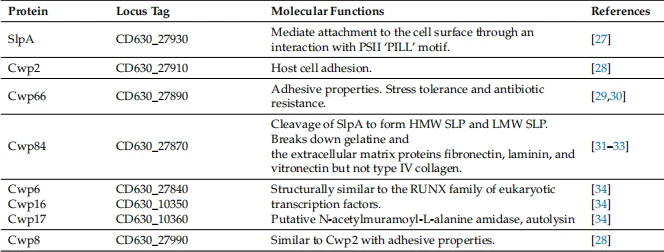
Tablo 1. Devam.

4. Hücre Duvarı Proteinlerinin İfadesi ve Suş Değişimi
C. difficile suşu 630'da, yaklaşık dokuz Cwps kodlayan genin eksprese edildiği rapor edilmiştir [25]. Normal büyüme koşulları altında cwp2, cwp84, cwp6, cwp12, cwpV, cwp24 ve cwp25 genleri hücre yüzeyinde eksprese edilirken [44], cwp66 ve cwp5 genleri eksprese edildi ancak hücre yüzeyi ekstraktlarında bulunamadı. Ayrı bir çalışmada Biazzo ve ark. C. difficile'nin genomu boyunca dağılmış kapları analiz ettik. cwp13, cwpV, cwp16, cwp18, cwp19, cwp20, cwp22, cwp24 ve cwp25 genlerinin eksprese edildiğini ve iyi korunmuş dizilere sahip olduğunu, buna karşın cwp17, cwp26, cwp27, cwp28 ve cwp29 genlerinin ekspresyon seviyelerinde anlamlı farklılıklar olduğunu gözlemlediler. ribotipler daha az korunmuştur [45]. Birçok slpA lokus geni, özellikle yüzeye maruz kalan bölgeler olmak üzere suşlar arasında önemli farklılıklar gösterir. Örneğin, slpA, cwp66, secA2 ve cwp2'nin slpA lokusu (bir 10-kb kaseti oluşturan) içinde yüksek varyasyona sahip olduğu gösterilmiştir; Şimdiye kadar farklı genotipler arasındaki homolog rekombinasyonun bir sonucu olarak bu kasetin 12 farklı varyantı bulunmuştur [46]. Karjalainen ve arkadaşlarına göre cwp66, suşlar arasında yalnızca %33 benzerlik göstermektedir [26]. Cwp2 varyantının yerini, slpA lokusunda 23.8 kb'lik öngörülen S-katmanlı glikozilasyon gen kümesi almıştır [46]. SlpA, C. difficile hücre yüzeyi ekstraktlarında bulunan en bol SLP'dir ve C. difficile SLP'nin ana bileşenidir. Olgun protein, S-katmanını oluşturmak üzere polimerize olan heterodimerik kompleks H/L kompleksini oluşturmak için bir proteaz Cwp84'ün etkisi ile HMW ve LMW protein formlarına salgılandıktan sonra bölünür [47] (Şekil 1). C. difficile 630∆erm'de cwp84 geninin etkisizleştirilmesi, yalnızca değiştirilmiş koloni morfolojisine sahip olgunlaşmamış tek zincirli SlpA'dan oluşan bir S katmanıyla sonuçlandı; bu, olgun S katmanının oluşumunda Cwp84'ün önemli bir rolünü ortaya koyuyor [32]. SlpA lokusunda secA2 geninin varlığı, SlpA ve diğer Cwps'nin sitoplazmik membran boyunca taşınması için önemlidir [48].
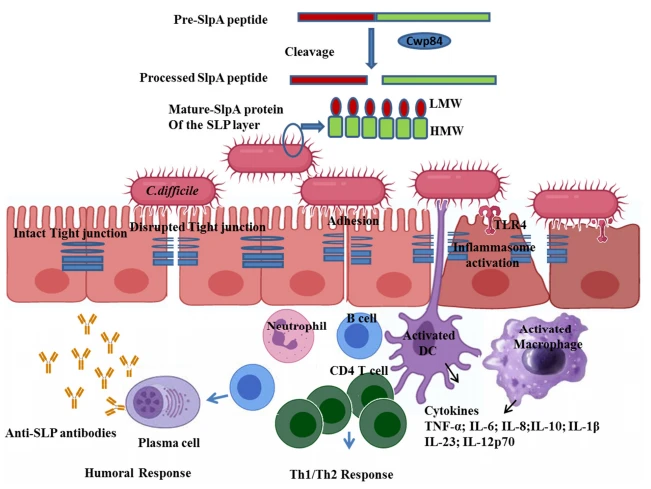
Şekil 1. C. difficile'nin SLP'leri, bağışıklık hücrelerinin yapışmasına ve aktivasyonuna aracılık eder. Yeni oluşan SlpA peptidi, proteaz Cwp84 tarafından hücre duvarının SLP katmanının olgun SlpA kompleksini oluşturan LMW ve HMW alt birimine bölünür [31-33]. SLP'ler, TLR4 yoluyla yapışmaya aracılık eder, bağırsak epitel hücrelerinin sıkı bağlantısını bozar ve dendritik hücreleri/makrofajları daha da aktive eder, bunlar da çeşitli sitokinler ve kemokinler üreterek Th1/Th2 ve humoral yanıtın indüklenmesine yol açar [9,27]. İnterlökin (IL), Dendritik hücreler (DC), Düşük moleküler ağırlık (LMW), Yüksek moleküler ağırlık (HMW), Toll benzeri reseptör 4 (TLR4).
5. S-Katmanı Proteinlerinin İşlevleri
SLP'ler, C. difficile biyolojisinde (bkz. Tablo 1), hücre bütünlüğü, taşıma, gözeneklerin ve çapaların oluşturulması, bozunma, konakçı hücre yapışması/istilası, bağışıklık sisteminden kaçma ve rakip mikroorganizmalardan korunma gibi çeşitli işlevlerde yer alır [22] . Pechine ve ark. Clostridium difficile ile ilişkili hastalık (CDAD) hastalarının serumunda Cwp66 antijeninin N-terminal ve C-terminal alanlarına karşı antikorlar tespit etmiştir [49]. Başka bir çalışmada Wright ve ark. 2D-PAGE kullanarak Cwps'leri ayırmış ve C. difficile ribotip 017 suşu ile enfekte olmuş hastaların serumlarıyla reaksiyona giren birkaç Cwps (SlpA, Cwp2, Cwp5, Cwp84, Cwp18, Cwp19) tanımlamış ve bu da SLP'lere karşı güçlü bir bağışıklık tepkisinin indüklendiğini düşündürmektedir [50]. Son zamanlarda Kirk ve ark. S-katmanı olmayan ve rakip bakteri hücrelerini depolarize eden ve gözenekler oluşturan bakteriyosine duyarlı olmayan iki C. difficile suşu tanımladı. Bununla birlikte, bu C. difficile suşları, lizozim ve antimikrobiyal peptit LL-37'ye karşı önemli ölçüde artan duyarlılık gösterdi ve bir hamster enfeksiyon modelinde CDI'nin hiçbir hastalık semptomunu üretmedi [51]. Yakın zamanda yapılan bir çalışmada, üç toksikojenik suştan (RT126, RT001, RT084) izole edilen SlpA'nın, sıkı bağlantı (TJ) proteinlerinin ekspresyonu ve insan kolon karsinomu hücre dizisi HT-29'de proinflamatuar sitokinlerin indüksiyonu üzerindeki etkileri araştırıldı. . SlpA tedavisi, claudins ailesinin ve JAM-A sıkı bağlantı proteinlerinin ekspresyon seviyelerini önemli ölçüde azaltmıştır (Şekil 1) [9]. Ayrıca SlpA proteini, TLR-4'nin ekspresyon seviyelerini arttırdı ve TNF-, IL-1 ve IL-8'nin salgılanmasını indükledi. Bu sonuçlar, SlpA proteini aracılı patogenezin ve bağırsakta inflamatuar yanıtların indüklendiğini göstermektedir [9]. Bu nedenle SLP'lerin C. difficile patojenitesi ve bağışıklık tepkileri için gerekli olduğunu iddia etmek mantıklıdır.

cistanche tubulosa-bağışıklık sistemini iyileştirir
6. SLP'lere Bağışıklık Tepkisi
Son araştırmalar SlpA'nın yalnızca bakteriyel hayatta kalma ve büyümede değil, aynı zamanda konağın bağışıklık tepkisini şekillendirmede de önemli rolüne dikkat çekti. İmmünoproteomik temelli yaklaşımlar, C. difficile ribotip 017 ile enfekte olmuş altı hastanın serumunda anti-SLP antikorlarının varlığını göstermiştir; bu, SLP proteinlerinin immünodominant olduğunu ve enfeksiyon sırasında eksprese edildiğini düşündürmektedir [50]. Bruxelles ve ark. sağlıklı hastalarla karşılaştırıldığında CDI hastalarında anti-SlpA antikorlarının yüksek düzeyde olduğunu göstermiştir [52]. Başka bir çalışmada Negm ve ark. çeşitli C. difficile suşlarından SLP ekstraktlarına karşı CDI'li toplam 327 kişinin serumlarında IgG antikorları saptadı [53]. SlpA'ya ek olarak, ikinci en bol protein olan Cwp66'nın açıkta kalan C-terminal alanı oldukça değişkendir, N-terminal alanı ise iyi korunmuştur. Cwp66 ve Cwp84'ün değişken C-terminal alanlarının insanlarda immünojenik olduğu gösterilmiştir [49,54]. Ayrıca CDI hastalarında ortalama toplam anti-Cwp66 ve anti-Cwp84 düzeyleri sağlıklı kontrol grubuna göre daha düşüktü ve bu da antikorların koruyucu doğasını ortaya koyuyordu. Bu nedenle SLP'ler, özellikle SlpA ve diğer bileşenler, bağışıklık savunmasında önemli rollere sahiptir ve aşağıdaki bölümlerde açıklandığı gibi immünoterapötik ve aşı geliştirme için potansiyel hedeflerdir.
7. SLP'ler C. difficile Yapışıklığına Aracılık Ediyor
C. difficile bağırsak epitel hücrelerine yapışarak kolonizasyona yol açarak enfeksiyonu başlatır. Bu bağlamda SlpA ve Cwp66 gibi bakteriyel SLP'ler yapışmada kritik bir rol oynamaktadır. İzole edilmiş C. difficile suşlarında SLP'lerdeki, özellikle de SlpA'daki varyasyonun, bağlılıkta değişiklikler gösterdiği rapor edilmiştir [55]. SLP'lerin, Hep-2 ve Vero hücrelerinin insan gastrointestinal hücre çizgileri ve hücre dışı matrisin birçok proteini gibi farklı hücre çizgilerini bağladığı gösterilmiştir. Ayrıca anti-HMW-SLP antikorlarıyla tedavi, C. difficile yapışmasını inhibe etti. Ek olarak, konakçı hücrelerin saflaştırılmış SlpA alt birimleri veya anti-SlpA antikorları ile ön tedavisi de C. difficile yapışmasını önlemiştir [55]. SlpA protein ailesinin en büyük homolog üyesi, faz değişken bir şekilde ifade edilen CwpV proteinidir. Ayrı bir çalışmada, CwpV proteininin C-terminal tekrarlayan alanının C. difficile agregasyonuna aracılık ettiği gösterilmiştir. Ayrıca, bu alan suşlar arasında değişiklik gösterir ve antijenik olarak farklı beş tekrar tipi tanımlanmıştır [40].
Cwp66 adlı başka bir immünojenik proteinin yapışma özelliklerine sahip olduğu gösterilmiştir. Saflaştırılmış Cwp66 ve N-terminal ve C-terminal alanlarına karşı antikorlar, C. difficile'nin kültürlenmiş Vero hücrelerine yapışmasını inhibe etti ve bu da Cwp66'nın yapışma özelliklerini ortaya koydu [29].
8. İnflamatuar Yanıtların İndüksiyonu
Bianco ve ark. SLP'lerin inflamasyon sürecindeki rolünü gösterdi. Bu çalışmada, hipervirülent ve epidemik (H/E) veya H/E olmayan C. difficile suşlarından elde edilen SLP'ler saflaştırıldı ve insan monositlerinde ve monosit türevli dendritik hücrelerde (MDDC'ler), immünomodülatör sitokinlerin [interlökin] indüksiyonu açısından araştırıldı. (IL)-1 , IL-6 ve IL- 10] [56]. Çalışma, SLP'lerin, gelişmiş antijen sunma aktivitesiyle birlikte MDDC'lerin olgunlaşmasını teşvik etmekle kalmayıp aynı zamanda yüksek seviyelerde IL-10 salgılanmasını da teşvik ettiğini gösterdi. Bununla birlikte, H/E ve H/E olmayan suşlardan elde edilen SLP preparatları ile monositlerin ve MDDC'lerin aktivasyonunda anlamlı bir fark bulunmadı; bu, SLP'lerin hastalığın ciddiyetinin artmasına katkıda bulunmadığını düşündürmektedir [56]. Başka bir çalışmada Ausiello ve ark. klinik izolat C253'ten SLP'ler çıkardı ve SLP'lerin, dinlenme monositlerinde yüksek düzeylerde IL-1 ve IL-6 pro-inflamatuar sitokinlerin salgılanmasını tetiklediğini ve insan MDDC'lerinin olgunlaşmasını indüklediğini ve T'nin çoğalmasını arttırdığını gösterdi. hücreler [57]. Ayrıca, tedavi edilen bu MDDC'ler aynı zamanda yüksek miktarlarda IL-10 ve IL-12p70 salgıladı ve karışık bir Th1/Th2 bağışıklık tepkisini indükledi. TLR-4, DC'lerin SLP aracılı aktivasyonunda önemli bir rol oynadı. SLP'lerin, TLR{22}}mutant C3H/HeJ farelerinden izole edilen DC'leri aktive edemediği ve daha sonra bir Th immün tepkisi indüklemede başarısız olduğu gösterildi; bu, SLP'lerin, TLR4 reseptörünün aracılık ettiği doğal ve adaptif bağışıklığı aktive ettiğini düşündürmektedir [19]. Başka bir çalışmada, makrofajlarda, C. difficile kaynaklı SLP'lerin, makrofaj migrasyonu ve fagositotik aktivitenin artmasıyla birlikte proinflamatuar sitokinlerin ve kemokinlerin salgılanması açısından bir temizleme tepkisine neden olduğu gösterilmiştir [58]. Bir p38 inhibitörüyle tedavi, bu yanıtları tersine çevirdi; bu, SLP aracılı yanıtlarda sinyal moleküllerinin rolünü ortaya koydu [58]. Çok yeni bir çalışma, C. difficile SLP'lerinin doza bağlı bir şekilde inflamatuar aktivasyonunu bildirmiştir. Ayrıca, hücre zarları üzerindeki kolesterol açısından zengin mikro alanların (lipit salları), SLP'lerin hücre zarına bağlanmasına yardımcı olduğu gösterilmiştir. Bu, floresans mikroskobuna dayanıyordu; burada membran kolesterolünü tüketen metil- -siklodekstrin (M CD) tedavisinin, SLP bağlanmasını azalttığı gösterildi; bu, SLP'lerin, C. difficile kolonizasyonu ve inflamatuar aktivasyonu için kritik olan lipid sallarını topladığını ortaya koydu [59 ] Bu çalışmalar, C. difficile SLP'lerinin, kısmen TLR4'ün aracılık ettiği doğal ve adaptif bağışıklık tepkilerini aktive edebildiğini ileri sürerek, SLP'lerin bir bağışıklık tepkisinin tetiklenmesinde önemli bir rol oynadığını öne sürüyor. Dolayısıyla bu sonuçlar aynı zamanda SLP'lerin CDI'ya karşı aşı adayı olma potansiyelini de ortaya koyuyor.
9. CDI'ye Karşı Antikor Tepkileri
Çeşitli immünolojik çalışmalar, C. difficile enfeksiyonunun ve sonucunun, CDI patojenitesinde anahtar bir faktör olan konakçı immün tepkisinin yoğunluğuna bağlı olduğunu göstermektedir. Bu nedenle, güçlü bir antikor yanıtı geliştirilememesi, hastalığın ciddiyeti ve nüksetmesi için bir prognoz olabilir [60]. Bu bağlamda, majör toksinlere karşı antikor düzeyleri, hastalığın tekrarlaması ve ciddiyeti ile ilişkilendirilmiştir [61,62]. Daha önceki çalışmalarda da CDI hastalarının serumunda C. difficile yüzey bileşenlerine karşı antikorlar rapor edilmiştir [63]. Drudy ve ark. 55'i C. difficile ile ilişkili ishal (CDAD), 34'ü asemptomatik taşıyıcı olan hasta ve 57 kontrol deneğinden oluşan 146 hastadan oluşan bir kohortta C. difficile SLP ekstraktlarına karşı hümoral immün yanıtları değerlendirdi [64]. Çalışma, esas olarak bol miktarda SlpA proteini içeren SLP'lerin yüksek ve düşük MW fraksiyonlarının ekstraksiyonunu izole etti. Bu kohortta enzime bağlı immünosorbent tahlili (ELISA) kullanarak serum antikorlarını ölçtüler ve serum IgM, IgA veya IgG antikor düzeylerinde anlamlı bir fark bulamadılar. İlginç bir şekilde, tekrarlayan CDAD atakları olan hastaların IgM-anti-SLP düzeyleri, tek atakları olan hastalara göre önemli ölçüde daha düşüktü. Çalışma, C. difficile SLP'leri kullanılarak spesifik anti-SLP antikor yanıtlarını ve koruma çalışmalarını belirlemek için daha ileri çalışmaların yapılması gerektiği sonucuna varmıştır [64].
HMW ve LMW SLP'lerin izole edilmiş ekstraktlarını kullanan pasif ve aktif aşılama, ölümcül hamster yükleme modellerinde hayatta kalma oranlarının artmasıyla birlikte cesaret verici sonuçlar göstermiştir. O'Brien ve diğerleri. hamsterlerde anti-SLP antikorlarının C. difficile enfeksiyonuna karşı koruyucu tepkisini gösterdi; burada anti-SLP ile tedavi edilen gruplarda sağkalım, kontrol gruplarıyla karşılaştırıldığında önemli ölçüde uzadı [65]. Antiserumun koruyucu etkisinin C. difficile fagositozunun arttırılması yoluyla olduğu gösterilmiştir [65]. Eidhin ve arkadaşları, aktif immünizasyon kullanarak, Altın Suriye hamsterleri ve BALB/c fare modellerinde farklı sistemik ve mukozal adjuvanlara sahip bir aşı olarak SlpA'nın LMW bileşeni ve HMW peptidlerinden eş molar miktarlarda içeren ham SLP ekstraktını test etti. Çalışma, farklı rejimler içerisinde orta düzeyden zayıfa kadar antikor stimülasyonunun olduğunu ve fare modellerinin, hamsterlere kıyasla SLP'lere karşı daha güçlü antikor tepkileri gösterdiğini bildirdi [66]. Başka bir çalışmada Brunet ark. toksin A'nın reseptör bağlama alanı (TxA (C314)) ve C. difficile C253 suşundan SLP-36 kDa'nın bir fragmanından oluşan iki peptidin fibronektin bağlayıcı protein A'ya (FnbpA) karşı in vivo adjuvan aktivitesini inceledi. ), Staphylococcus aureus'a karşı koruyucu bir aşı antijenidir [67]. Yanıtı intranazal ve subkutan yolları kullanarak değerlendirdiler ve her iki fragmanın da dolaşımdaki anti-FnbpA IgG ve IgA üretimini arttırdığını buldular. Bu parçaların adjuvan olarak kullanıldığında bağışıklık sistemini farklı şekilde etkilediği ve polarize ettiği sonucuna vardılar [67]. Başka bir çalışmada Şirvan ve ark. faj gösterimini kullanarak C. difficile 630 proteinlerinden Cwp66 ve SlpA gibi SLP'lere karşı spesifik rekombinant antikorlar oluşturup eksprese etti ve bu rekombinant antikorların, SLP'lere ve bunların bileşenlerine yüksek spesifiklikle suşa spesifik bir şekilde reaksiyona girdiğini gösterdi [68].
Antijen olarak Cwp84 proteazı kullanan bir hamster modelinde immün yanıt ve koruma, çeşitli immünizasyon yolları ile değerlendirilmiştir [69]. Çalışma, aşılama yollarına dayalı olarak diferansiyel antikor titreleri buldu. En iyi koruma rektal aşılama yoluyla gözlemlendi. Ayrıca, aşılanmış hamster grupları, C. difficile tehdidinden sonra %26 daha zayıf ve daha yavaş C. difficile bağırsak kolonizasyonuyla sonuçlandı ve aşılanmamış gruplara göre önemli ölçüde daha yüksek bir hayatta kalma oranı (%33 daha fazla) elde edildi [69].

cistanche bitkisi bağışıklık sistemini güçlendiriyor
10. SLP Tabanlı Anti-C. difficile Terapötikler
C. difficile'yi nötralize etmeye yönelik spesifik antikor bazlı terapötikler etkili bir strateji olabilir. Kandalaft ve ark. SLP'leri hedeflemek için tek alanlı antikorlar kullanmışlardır [70]. Grup, C. difficile hipervirulent türü QCD-32g58'den (027 ribotip) SLP'ye özgü tek alanlı antikorlardan (VHH'ler) oluşan bir panel hazırladı. Sonuçları, SLP'nin LMW alt biriminde yer alan QCD-32g58 epitoplarına yüksek afiniteyle bağlanan bir dizi VHH'yi gösterdi. Ayrıca, bu VHH'lerin 001 ve 027 ribotiplerine bağlanma spesifikliğine sahip olduğunu ve bu VHH antikorlarının bir alt kümesinin 012, 017, 023 ve 078 ribotiplerine geniş ölçüde çapraz reaktif olduğunu bildirdiler. Bu VHH'lerin aynı zamanda in vitro olarak C. difficile QCD-32g58 hareketliliğini inhibe ettiği de gösterilmiştir [70].
Kirk ve arkadaşları tarafından başka bir hassas antibakteriyel ajan Av-CD291.2'nin geliştirilmesi. özellikle C. difficile'yi öldürdüğü ve farelerde kolonizasyonu önlediği rapor edilmiştir [51]. Av-CD291.2'nin, C. difficile suşlarındaki SLP sekanslarının varlığına dayalı olarak çeşitli C. difficile izolatlarını öldürdüğü gösterilmiştir. Yazarlar, Av-CD291.2 ajanlarına dirençli olan, slpA geninde bir nokta mutasyonu içeren SLP boş mutantlarını tanımladıklarını iddia etmektedir. Bu mutantlar ayrıca sporülasyon kusurlarına sahipti ancak bir hamster modelinde virülansın azalmasına rağmen bağırsak yolunda kolonize olmayı başardılar [51]. Ayrıca, çeşitli C. difficile suşlarını SLP sekansına bağlı bir şekilde öldüren bir Avidocin-CD paneli oluşturdular; bu, SLP'lere dayalı bu antibakteriyellerin CDI'yı önlemede önemli bir rol oynadığını ortaya koydu [51].
11. Son Açıklamalar ve Kritik Cevaplanmamış Sorular
Konakçı, C. difficile toksinlerine ve yüzey bileşenlerine karşı güçlü, spesifik bir bağışıklık tepkisi geliştirir. SLP'lerin hücre yapışmasında, TLR4 aktivasyonu yoluyla çeşitli sitokinlerin uyarılmasında ve hem doğal hem de humoral immün yanıtların aktivasyonunda rol oynadığı gösterilmiştir. Bununla birlikte, CD4 ve CD8 hücrelerinin rolünü daha iyi incelemek için T hücresi yanıtlarının SLP'ler tarafından aktivasyonuna ilişkin çalışmalara ihtiyaç vardır. Humoral yanıtın aktivasyonuna bağlı olarak, toksinlere ve yüzey bileşenlerine karşı bu nötralize edici antikorlar, CDI'nin klinik belirtilerini önleyebilir. SLP'lere karşı aktif veya pasif immünizasyon kullanan çalışmalar, stratejinin CDI patojenitesine karşı yeni terapötikler halinde daha da geliştirilebileceğini gösteren umut verici sonuçlar vermiştir. Bir aşı adayı olarak SlpA'ya büyük önem verilmiştir; ancak SlpA'nın suşlar arasındaki yüksek dizi değişkenliği nedeniyle aşı tüm ribotiplere karşı etkili olmayabilir. Bu nedenle bu sorunu aşmak için epitop bazlı aşılara ihtiyaç duyulabilir. Bu bağlamda, SLP'lere karşı tek alanlı antikorlar (VHH'ler), C. difficile'nin LMW-SLP alt birimini yüksek spesifiklikle bağlayan ve C. difficile suşlarının hareketliliğini inhibe ettiği gösterilen geçerli seçeneklerdir. Şu anda, SLP'lerin ve bunların CDI patogenezi, yapışma ve T hücresi tepkisindeki paraloglarının mekanik rolünün anlaşılması hala başlangıç aşamalarındadır ve büyük ölçüde keşfedilmemiş durumdadır. C. difficile enfeksiyonlarıyla mücadeleye yönelik yeni aşı/ilaç hedeflerinin ve terapötiklerin hızlı gelişimini teşvik etmeye yardımcı olmak amacıyla, SLP'lerin moleküler fonksiyonlarını ve spesifik bağışıklık tepkilerini incelemek için daha ileri çalışmalara ihtiyaç vardır.
Referanslar
1. Chandra, H.; Sharma, KK; Tuovinen, OH; Güneş, X.; Shukla, P. Pathobionts: Clostridioides difficile'ye odaklanarak hayatta kalma, genişleme ve konakçıyla etkileşim mekanizmaları. Bağırsak Mikropları 2021, 13, 1979882. [CrossRef] [PubMed]
2. Lawson, Pensilvanya; Ağaç kavunu, DM; Tyrrell, KL; Finegold, SM Clostridium difficile'nin Clostridioides difficile olarak yeniden sınıflandırılması (Hall ve O'Toole 1935) Prévot 1938. Anaerobe 2016, 40, 95–99. [CrossRef] [PubMed]
3. Ören, A.; Garrity, GM Daha önce IJSEM dışında yayınlanmış taksonomik görüşteki değişikliklerin bildirimi. Uluslararası J. Syst. Evrim. Mikrobiyol. 2018, 68, 2137–2138. [ÇaprazRef]
4. Hastalık Kontrol ve Önleme Merkezleri. Amerika Birleşik Devletleri'nde Antibiyotik Direnci Tehditleri, 2019. 2019. Çevrimiçi olarak mevcuttur: https://www.cdc.gov/drugresistance/pdf/threats-report/2019-ar-threats-report-508.pdf (8 Eylül 2022'de erişildi).
5. Kalkanlar, K.; Araujo-Castillo, RV; Theethira, TG; Alonso, CD; Kelly, CP Tekrarlayan Clostridium difficile enfeksiyonu: Kolonizasyondan tedaviye. Anaerob 2015, 34, 59–73. [CrossRef] [PubMed]
6. Chandra, H.; Sorg, JA; Hassett, DJ; Sun, X. Clostridioides difficile patogenezinin toksin düzenlemesine odaklanan düzenleyici transkripsiyon faktörleri. Kritik. Rev. Mikrobiyol. 2022. [CrossRef]
7. Lanzoni-Mangutchi, P.; Banerji, O.; Wilson, J.; Barwinska-Sendra, A.; Kirk, JA; Vaz, F.; O'Beirne, S.; Baslé, A.; El Omari, K.; Wagner, A.; ve ark. C. difficile'deki S katmanının yapısı ve montajı. Nat. İletişim 2022, 13, 970. [CrossRef]
8. Mori, N.; Takahashi, T. Clostridium difficile'de Yüzey Katmanı Proteinlerinin Özellikleri ve İmmünolojik Rolleri. Ann. Laboratuar. Med. 2018, 38, 189–195. [CrossRef] 9. Noori, M.; Azimirad, M.; Eslami, G.; Looha, MA; Yadegar, A.; Ghalavand, Z.; Zali, MR Hipervirülent Clostridioides difficile ribotiplerinden yüzey katmanı proteini A, insan bağırsak epitel hücrelerinde sıkı bağlantıların gen ekspresyonunda ve inflamatuar yanıtta önemli değişikliklere neden olur. BMC Mikrobiyol. 2022, 22, 259. [CrossRef]
10. Wilson, KH; Sheagren, JN Toksijenik Clostridium difficile'nin toksik olmayan C. difficile tarafından antagonizması. J. Enfekte edin. Dis. 1983, 147, 733–736. [ÇaprazRef]
11. Borriello, SP; Barclay, FE Hamsterlerin Clostridium difficile ileocolitis'e karşı patojenik olmayan suşlarla önceden kolonizasyon yoluyla korunması. J. Med. Mikrobiyol. 1985, 19, 339–350. [ÇaprazRef]
12. Mühür, D.; Borriello, SP; Barclay, F.; Welch, A.; Piper, M.; Bonnycastle, M. Tekrarlayan Clostridium difficile ishalinin toksik olmayan bir suşun uygulanmasıyla tedavisi. Avro. J. Clin. Mikrobiyol. 1987, 6, 51–53. [CrossRef] [PubMed]
13. Johnson, S.; Lavergne, V.; Skinner, AM; Gonzales-Luna, AJ; Garey, KW; Kelly, CP; Wilcox, Amerika Enfeksiyon Hastalıkları Derneği (IDSA) ve Amerika Sağlık Hizmeti Epidemiyolojisi Derneği (SHEA) tarafından hazırlanan MH Klinik Uygulama Kılavuzu: Yetişkinlerde Clostridioides difficile Enfeksiyonunun Yönetimine İlişkin 2021 Odaklı Güncelleme Kılavuzları. Klin. Bulaştırmak. Dis. 2021, 73, e1029–e1044. [CrossRef] [PubMed]
14. van Prehn, J.; Reigadas, E.; Vogelzang, EH; Bouza, E.; Hristea, A.; Guery, B.; Krutova, M.; Norén, T.; Allerberger, F.; Coia, JE; ve ark. Avrupa Klinik Mikrobiyoloji ve Bulaşıcı Hastalıklar Derneği: Yetişkinlerde Clostridioides difficile enfeksiyonuna yönelik tedavi kılavuzu belgesinde 2021 güncellemesi. Klin. Mikrobiyol. Bulaştırmak. 2021, 27 (Ek 2), S1–S21. [CrossRef] [PubMed]
15. Vardakas, KZ; Polyzos, KA; Patouni, K.; Rafailidis, PI; Samanis, G.; Falagas, ME Vankomisin veya metronidazol tedavisini takiben tedavi başarısızlığı ve Clostridium difficile enfeksiyonunun tekrarlaması: Kanıtların sistematik bir incelemesi. Uluslararası J. Antimikrobiyal. Ajanlar 2012, 40, 1–8. [ÇaprazRef]
16. Navalkele, BD; Chopra, T. Bezlotoxumab: Tekrarlayan Clostridium difficile enfeksiyonunun önlenmesi için ortaya çıkan bir monoklonal antikor tedavisi. Biyoloji 2018, 12, 11–21. [ÇaprazRef]
17. Li, YT; Cai, HF; Wang, ZH; Xu, J.; Fang, JY Meta-analizle sistematik inceleme: Clostridium difficile enfeksiyonu için dışkı mikrobiyota transplantasyonunun uzun vadeli sonuçları. Besin. Farmakol. Orada. 2016, 43, 445–457. [ÇaprazRef]
18. Kureyşi, MN; Widlak, M.; Bhala, N.; Moore, D.; Fiyat, M.; Sharma, N.; Iqbal, TH Meta-analizle sistematik inceleme: Tekrarlayan ve dirençli Clostridium difficile enfeksiyonunun tedavisinde dışkı mikrobiyota transplantasyonunun etkinliği. Besin. Farmakol. Orada. 2017, 46, 479–493. [ÇaprazRef]
19. Ryan, A.; Lynch, M.; Smith, SM; Amu, S.; Nel, HJ; McCoy, CE; Dowling, JK; Draper, E.; O'Reilly, V.; McCarthy, C.; ve ark. Clostridium difficile enfeksiyonunda TLR4'ün rolü ve yüzey tabakası proteinlerinin tanınması. PLoS Patog. 2011, 7, e1002076. [ÇaprazRef]
20. Batah, J.; Denève-Larrazet, C.; Jolivot, Pensilvanya; Kuehne, S.; Collignon, A.; Marvaud, JC; Kansau, I. Clostridium difficile flagella, epitel hücrelerinde ağırlıklı olarak TLR5-bağlantılı NF-κB yolunu aktive eder. Anaerobe 2016, 38, 116–124. [ÇaprazRef]
21. Kawata, T.; Takeoka, A.; Takumi, K.; Masuda, K. Clostridium difficile'nin hücre duvarındaki düzenli bir dizinin gösterilmesi ve ön karakterizasyonu. FEMS Mikrobiyol. Lett. 1984, 24, 323–328. [ÇaprazRef]
22. Sára, M.; Sleytr, UB S-Katman proteinleri. J. Bakteriol. 2000, 182, 859–868. [CrossRef] [PubMed]
23. Fagan, RP; Janoir, C.; Collignon, A.; Mastrantonio, P.; Poxton, IR; Fairweather, NF Clostridium difficile'nin hücre duvarı proteinleri için önerilen bir terminoloji. J. Med. Mikrobiyol. 2011, 60, 1225–1228. [ÇaprazRef]
24. Monot, M.; Boursaux-Eude, C.; Thibonnier, M.; Vallenet, D.; Moszer, I.; Medigue, C.; Martin-Verstraete, I.; Dupuy, B. Clostridium difficile suşu 630'un genom dizisinin yeniden açıklaması. J. Med. Mikrobiyol. 2011, 60, 1193–1199. [CrossRef] [PubMed]
25. Calabi, E.; Ward, S.; Wren, B.; Paxton, T.; Panico, M.; Morris, H.; Dell, A.; Dougan, G.; Fairweather, N. Clostridium difficile'den yüzey katmanı proteinlerinin moleküler karakterizasyonu. Mol. Mikrobiyol. 2001, 40, 1187–1199. [ÇaprazRef]
26. Karjalainen, T.; Waligora-Dupriet, AJ; Cerquetti, M.; Spigaglia, P.; Maggioni, A.; Mauri, P.; Mastrantonio, P. Clostridium difficile'den yüzeye bağlı proteinleri kodlayan genlerin moleküler ve genomik analizi. Bulaştırmak. Bağışıklık. 2001, 69, 3442–3446. [ÇaprazRef]
27. İstekli, SE; Candela, T.; Shaw, HA; Seager, Z.; Mesnage, S.; Fagan, RP; Fairweather, NF Clostridium difficile yüzey proteinleri, anyonik polimer PSII'yi tanıyan CWB2 motifleri kullanılarak hücre duvarına sabitlenir. Mol. Mikrobiyol. 2015, 96, 596–608. [ÇaprazRef]
28. Bradshaw, WJ; Kirby, JM; Roberts, AK; Parladı, CC; Acharya, Clostridium difficile'den KR Cwp2, in vitro uzatılmış üç alanlı katlama ve hücre yapışması sergiler. FEBS J. 2017, 284, 2886–2898. [ÇaprazRef]
29. Waligora, AJ; Hennequin, C.; Mullany, P.; Bourlioux, P.; Collignon, A.; Karjalainen, T. Clostridium difficile'nin hücre yüzeyi proteininin yapışkan özelliklere sahip karakterizasyonu. Bulaştırmak. Bağışıklık. 2001, 69, 2144–2153. [ÇaprazRef]
30. Zhou, Q.; Rao, F.; Chen, Z.; Cheng, Y.; Zhang, S.; Zhang, J.; Guan, Z.; Hey.; Yu, W.; Cui, G.; ve ark. Cwp66 Geni Clostridioides difficile'de Hücre Yapışmasını, Stres Toleransını ve Antibiyotik Direncini Etkiler. Mikrobiyol. Spektr. 2022, 10, e0270421. [CrossRef] [PubMed]
31. Dang, TH; de la Riva, L.; Fagan, RP; Storck, EM; İyileşme, WP; Janoir, C.; Fairweather, NF; Tate, EW Clostridium difficile'de yüzey tabakası biyogenezinin kimyasal araştırmaları. ACS Kimya Biyol. 2010, 5, 279–285. [ÇaprazRef]
32. Kirby, JM; Ahern, H.; Roberts, AK; Kumar, V.; Freeman, Z.; Acharya, KR; Yüzeyle ilişkili bir sistein proteaz olan Shone, CC Cwp84, Clostridium difficile'nin yüzey katmanının olgunlaşmasında rol oynar. J. Biol. Kimya 2009, 284, 34666–34673. [CrossRef] [PubMed]
33. Janoir, C.; Péchiné, S.; Grosdidier, C.; Collignon, A. Clostridium difficile'nin yüzeyle ilişkili bir proteini olan Cwp84, hücre dışı matris proteinleri üzerinde parçalayıcı aktiviteye sahip bir sistein proteazdır. J. Bakteriol. 2007, 189, 7174–7180. [CrossRef] [PubMed]
34. Usenik, A.; Renko, M.; Miheliç, M.; Lindic, N.; Borisek, J.; Perdih, A.; Pretnar, G.; Müller, U.; Turk, D. CWB2 Hücre Duvarı Sabitleme Modülü, Clostridium difficile Hücre Duvarı Proteinleri Cwp8 ve Cwp6'nın Kristal Yapıları Tarafından Ortaya Çıkarıldı. Yapı 2017, 25, 514–521. [ÇaprazRef]
35. Eddy, SR İstatistiksel anlamlılık tahminini basitleştiren, yerel dizi hizalamasının olasılıksal bir modeli. PLoS Hesaplama. Biyol. 2008, 4, e1000069. [CrossRef] [PubMed]
36. Luo, Y.; Frey, EA; Pfuetzner, RA; Creagh, AL; Knoechel, Genel Müdürlük; Haynes, Kaliforniya; Finlay, BB; Strynadka, NC Enteropatojenik Escherichia coli intimin-reseptör kompleksinin kristal yapısı. Doğa 2000, 405, 1073–1077. [CrossRef] [PubMed]
37. de la Riva, L.; İstekli, SE; Tate, EW; Fairweather, NF Clostridium difficile hücre duvarının biyogenezinde sistein proteazlarının Cwp84 ve Cwp13'ün rolleri. J. Bakteriol. 2011, 193, 3276–3285. [ÇaprazRef]
38. Mayer, BJ SH3 alanları: Ölçülülükte karmaşıklık. J. Cell Sci. 2001, 114, 1253–1263. [ÇaprazRef]
39. Şipeki, S.; Koprivanacz, K.; Takacs, T.; Kurilla, A.; László, L.; Vas, V.; Buday, L. SH2 ve SH3 Alanlarının Lipid Bağlanmasında Yeni Rolleri. Hücreler 2021, 10, 1191. [CrossRef]
40. Reynolds, CB; Emerson, JE; de la Riva, L.; Fagan, RP; Fairweather, NF Clostridium difficile hücre duvarı proteini CwpV, suşlar arasında antijenik olarak değişkendir ancak korunmuş agregasyonu teşvik edici fonksiyon sergiler. PLoS Patog. 2011, 7, e1002024. [ÇaprazRef]
41. Bradshaw, WJ; Kirby, JM; Roberts, AK; Parladı, CC; Acharya, KR Clostridium difficile'den Cwp19'un glikozit hidrolaz alanının moleküler yapısı. FEBS J. 2017, 284, 4343–4357. [ÇaprazRef]
42.Zhu, D.; Bullock, J.; Hey.; Sun, X. Yeni bir peptidoglikan çapraz bağlama enzimi olan Cwp22, Clostridioides difficile'de pleiotropik roller oynar. Çevre. Mikrobiyol. 2019, 21, 3076–3090. [CrossRef] [PubMed]
43. Finn, RD; Coggill, P.; Eberhardt, RY; Eddy, SR; Mistry, J.; Mitchell, AL; Potter, SC; Punta, M.; Kureyşi, M.; Sangrador-Vegas, A.; ve ark. Pfam protein aileleri veritabanı: Daha sürdürülebilir bir geleceğe doğru. Nükleik Asitler Res. 2016, 44, D279–D285. [CrossRef] [PubMed]
44. Wright, A.; Dur, R.; Begüm, S.; Crossett, B.; Nagy, J.; Brown, K.; Fairweather, N. Clostridium difficile'den hücre yüzeyi proteinlerinin proteomik analizi. Proteomik 2005, 5, 2443–2452. [CrossRef] [PubMed]
45. Biazzo, M.; Cioncada, R.; Fiaschi, L.; Tedde, V.; Spigaglia, P.; Mastrantonio, P.; Pizza, M.; Barocchi, MA; Scarselli, M.; Galeotti, CL Clostridium difficile'nin klinik izolatlarında cwp lokuslarının çeşitliliği. J. Med. Mikrobiyol. 2013, 62, 1444–1452. [ÇaprazRef]
46.Dingle, KE; Didelot, X.; Ansari, MA; Eyre, DW; Vaughan, A.; Griffiths, D.; İp, CL; Batty, EM; Golubchik, T.; Bowden, R.; ve ark. Clostridium difficile S katmanının rekombinasyonel değişimi ve büyük ölçekli tam genom dizilimi ile ortaya çıkan yeni bir glikosilasyon gen kümesi. J. Enfekte edin. Dis. 2013, 207, 675–686. [ÇaprazRef]
47. Fagan, RP; Albesa-Jové, D.; Qazi, O.; Svergun, DI; Brown, KA; Fairweather, NF Clostridium difficile'den S katmanının moleküler organizasyonuna ilişkin yapısal bilgiler. Mol. Mikrobiyol. 2009, 71, 1308–1322. [ÇaprazRef]
48. Fagan, RP; Fairweather, NF Clostridium difficile iki paralel ve temel Sec salgı sistemine sahiptir. J. Biol. Kimya 2011, 286, 27483–27493. [ÇaprazRef]
49. Péchiné, S.; Gleizes, A.; Janoir, C.; Gorges-Kergot, R.; Barc, MC; Delmée, M.; Collignon, A. Clostridium difficile'nin yüzey proteinlerinin immünolojik özellikleri. J. Med. Mikrobiyol. 2005, 54, 193–196. [ÇaprazRef]
50. Wright, A.; Drudy, D.; Kyne, L.; Brown, K.; Fairweather, NF İnsan serumu tarafından tanımlanan Clostridium difficile'nin immünoreaktif hücre duvarı proteinleri. J. Med. Mikrobiyol. 2008, 57, 750–756. [ÇaprazRef]
51. Kirk, JA; Gebhart, D.; Buckley, AM; Lok, S.; Scholl, D.; Douce, GR; Govoni, GR; Fagan, RP Yeni sınıf hassas antimikrobiyaller, Clostridium difficile S katmanının virülans ve canlılıktaki rolünü yeniden tanımlıyor. Bilim. Çeviri Med. 2017, 9, eaah6813. [ÇaprazRef]
52. Bruxelles, JF; Mizrahi, A.; Hoys, S.; Collignon, A.; Janoir, C.; Péchiné, S. Clostridium difficile'nin yüzey tabakası öncüsünün immünojenik özellikleri ve hayvan modellerinde aşılama deneyleri. Anaerob 2016, 37, 78–84. [ÇaprazRef]
53. Negm, OH; Hamed, MR; Dilnot, EM; Parladı, CC; Marszalowska, I.; Lynch, M.; Loscher, CE; Edwards, LJ; Tighe, PJ; Wilcox, MH; ve ark. Protein Mikrodizi Analizi ile Clostridium difficile'ye Özel Antijenlere Hümoral Bağışıklık Yanıtlarının Profilinin Çıkarılması. Klin. Aşı İmmunol. 2015, 22, 1033–1039. [CrossRef] [PubMed]
54. Péchiné, S.; Janoir, C.; Collignon, A. Clostridium difficile ile ilişkili hastalığı olan hastalarda Clostridium difficile yüzey proteinlerinin değişkenliği ve spesifik serum antikor tepkisi. J. Clin. Mikrobiyol. 2005, 43, 5018–5025. [CrossRef] [PubMed]
55. Merrigan, MM; Venugopal, A.; Roxas, JL; Enver, F.; Mallozzi, MJ; Roxas, BA; Gerding, DN; Viswanathan, VK; Vedantam, G. Yüzey katmanı proteini A (SlpA), Clostridium difficile'nin konakçı hücreye yapışmasına önemli bir katkıda bulunur. PLoS ONE 2013, 8, e78404. [ÇaprazRef]
56. Bianco, M.; Fedele, G.; Quattrini, A.; Spigaglia, P.; Barbanti, F.; Mastrantonio, P.; Ausiello, CM Salgın ve hipervirülent Clostridium difficile suşlarından elde edilen yüzey tabakası proteinlerinin immünomodülatör aktiviteleri. J. Med. Mikrobiyol. 2011, 60, 1162–1167. [ÇaprazRef]
57. Ausiello, CM; Cerquetti, M.; Fedele, G.; Spensieri, F.; Palazzo, R.; Nasso, M.; Frezza, S.; Mastrantonio, P. Clostridium difficile'den elde edilen yüzey katmanı proteinleri, insan monositlerinde ve dendritik hücrelerde inflamatuar ve düzenleyici sitokinleri indükler. Mikroplar Bulaşır. 2006, 8, 2640–2646. [ÇaprazRef]
58.Collins, LE; Lynch, M.; Marszalowska, I.; Kristek, M.; Rochfort, K.; O'Connell, M.; Windle, H.; Kelleher, D.; Loscher, CE Clostridium difficile'den izole edilen yüzey tabakası proteinleri, makrofajlarda temizleme tepkilerini indükler. Mikroplar Bulaşır. 2014, 16, 391–400. [CrossRef] [PubMed]
59. Chen, Y.; Huang, K.; Chen, LK; Wu, HY; Hsu, CY; Tsai, YS; Ko, WC; Tsai, PJ Membran Kolesterol, Clostridium difficile Yüzey Katmanı Protein Bağlanması ve Enflamasyon Aktivasyonunun Tetiklenmesi İçin Çok Önemlidir. Ön. İmmünol. 2020, 11, 1675. [CrossRef] [PubMed]
60. Kelly, CP Tekrarlayan Clostridium difficile enfeksiyonu riski yüksek olan hastaları belirleyebilir miyiz? Klin. Mikrobiyol. Bulaştırmak. 2012, 18 (Ek 6), 21–27. [ÇaprazRef]
61.Wultt, M.; Norén, T.; Ljungh, A.; Åkerlund, T. Clostridium difficile enfeksiyonu olan hastalarda A ve B toksinlerine IgG antikor yanıtı. Klin. Aşı İmmunol. 2012, 19, 1552–1554. [ÇaprazRef]
62. Ayrıl, BA; Blair, B.; Leney, M.; Knauber, M.; Reilly, C.; Lowy, I.; Gerding, DN; Kelly, CP; Katchar, K.; Baxter, R.; ve ark. Serum anti-toksin B antikoru, tekrarlayan Clostridium difficile enfeksiyonuna (CDI) karşı koruma ile ilişkilidir. Aşı 2010, 28, 965–969. [CrossRef] [PubMed]
63. Pantosti, A.; Cerquetti, M.; Viti, F.; Ortisi, G.; Mastrantonio, P. Antibiyotiğe bağlı ishal olan hastalarda Clostridium difficile'nin yüzey proteinlerine serum immünoglobulin G yanıtının immünoblot analizi. J. Clin. Mikrobiyol. 1989, 27, 2594–2597. [CrossRef] [PubMed]
64. Drudy, D.; Calabi, E.; Kyne, L.; Sougioultzis, S.; Kelly, E.; Fairweather, N.; Kelly, CP Clostridium difficile enfeksiyonunda yüzey tabakası proteinlerine insan antikor tepkisi. FEMS İmmünol. Med. Mikrobiyol. 2004, 41, 237–242. [CrossRef] [PubMed]
65. O'Brien, JB; McCabe, MS; Athié-Morales, V.; McDonald, GS; DB, NE; Kelleher, DP Hamsterlerin Clostridium difficile enfeksiyonuna karşı yüzey tabakası proteinlerine karşı antikorlar kullanılarak pasif immünizasyonu. FEMS Mikrobiyol. Lett. 2005, 246, 199–205. [ÇaprazRef]
66. DB, NE; O'Brien, JB; McCabe, MS; Athié-Morales, V.; Kelleher, DP Hamsterlerin Clostridium difficile enfeksiyonuna karşı yüzey tabakası proteini kullanılarak aktif immünizasyonu. FEMS İmmünol. Med. Mikrobiyol. 2008, 52, 207–218. [ÇaprazRef]
67. Brun, P.; Scarpa, M.; Grillo, A.; Palù, G.; Mengoli, C.; Zecconi, A.; Spigaglia, P.; Mastrantonio, P.; Castagliuolo, I. Clostridium difficile TxAC314 ve SLP-36kDa, birlikte uygulanan bir antijene karşı bağışıklık tepkisini arttırır. J. Med. Mikrobiyol. 2008, 57, 725–731. [ÇaprazRef]
68. Şirvan, AN; Aitken, R. Clostridium difficile'nin yüzey proteinlerine karşı yönlendirilen rekombinant antikorların izolasyonu. Brezilya. J. Microbiol. 2016, 47, 394–402. [ÇaprazRef]
69. Péchiné, S.; Denève, C.; Le Monnier, A.; Hoys, S.; Janoir, C.; Collignon, A. Bir antijen olarak Cwp84 proteazı kullanılarak hamsterlerin Clostridium difficile enfeksiyonuna karşı immünizasyonu. FEMS İmmünol. Med. Mikrobiyol. 2011, 63, 73–81. [ÇaprazRef]
70. Kandalaft, H.; Hussack, G.; Aubry, A.; van Faassen, H.; Guan, Y.; Arbabi-Ghahroudi, M.; MacKenzie, R.; Logan, SM; Tanha, J. Tek alanlı antikorlarla yüzey katmanı proteinlerinin hedeflenmesi: Clostridium difficile ile ilişkili hastalığa karşı potansiyel bir terapötik yaklaşım. Başvuru Mikrobiyol. Biyoteknoloji. 2015, 99, 8549–8562. [ÇaprazRef]