

Yaşlanmada Bağışıklık Belleği: Mikrobiyota, Beyin, Metabolizma ve Epigenetiği Kapsayan Geniş Bir Perspektif Bölüm 2
Jun 30, 2022
Lütfen iletişime geçinoscar.xiao@wecistanche.comdaha fazla bilgi için
Metabolizma ve Bağışıklık Belleğinin Etkileşimi
Metabolizma ve metabolik inflamasyon, yaşlanmayı hem etkileyen hem de ondan etkilenen temel süreçlerdir. Tip 2 diabetes mellitus, kardiyovasküler hastalıklar ve obezite gibi metabolik hastalıklar da yaşa bağlı hastalıklar olarak kabul edilir. Bu koşullara, besin fazlalığı tarafından yönlendirilen metaflammasyon adı verilen kronik inflamasyon eşlik eder. Tetikleyiciler değişebilse de, metaflamasyon ve inflamasyonun altında yatan mekanizmalar oldukça benzerdir.
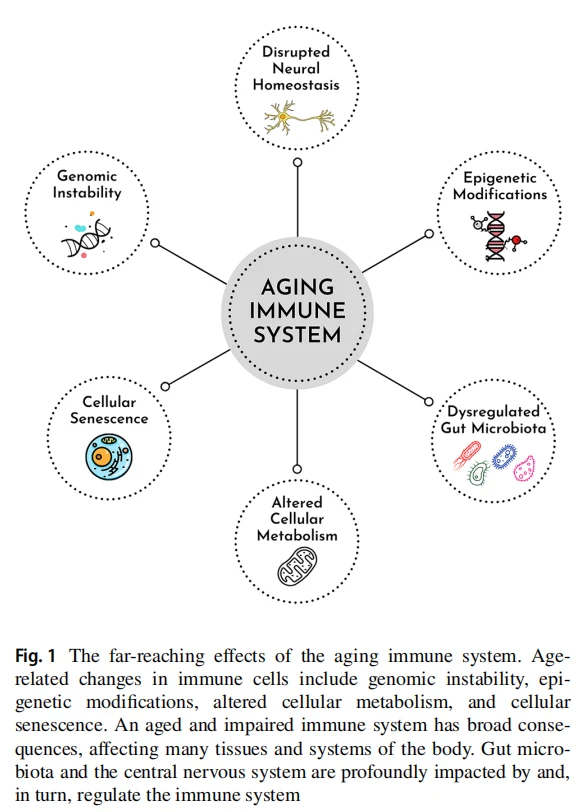
Mitokondriyal disfonksiyon, yaşlanmış hücrelerin ve hücresel enkaz birikimi ve inflamatuar gibi doğuştan gelen bağışıklık tepkilerinin hiperaktivasyonu her iki sürece de katkıda bulunur [120]. Bu nedenle, kronolojik yaşlanma ve yaşa bağlı metabolik hastalıklarda hücresel yaşlanma, metabolizma ve inflamasyon arasındaki etkileşimi anlamak, bunları tersine çevirmek için çok önemlidir.
T Hücre Metabolizması
Hareketsiz T hücreleri esas olarak katabolik süreçleri kullanırken, aktive edilmiş hücreler protein üretimini ve çoğalmasını desteklemek için anabolik süreçlere güvenir. Hücrelerin, anabolik yolakları indüklemek için rapamisinin memeli hedefi (mTOR) olan kritik bir serin/treonin kinazı aktive etmesi gerekir [121]. Büyüme ve çoğalmayı yönlendirirken, mTOR ayrıca glikoz taşınmasını ve glikolizi de düzenler.cistanche tubulosa dozajı redditGlikoliz, enerji üretmenin ana yollarından biridir. Enerjik olarak verimli olmasa da ——bir glikoz molekülünden sadece 2 adenozin trifosfat (ATP) molekülü üretilebilir — çok hızlı enerji üretir, bu da aktif ve çoğalan T hücreleri için kullanılır[122]. Glikozun işlenmesi ATP verir, NADH ve piruvat. Piruvat daha sonra laktata dönüştürülür ve glikoliz durumunda laktik asit olarak ihraç edilir veya başka şekilde oksidatif fosforilasyon (OXPHOS) için mitokondriye taşınır.
Daha fazla bilgi için lütfen buraya tıklayın
OXPHOS, her glikoz molekülünden 36 ATP molekülü üreten çok daha verimli bir biyoenerjetik yoldur [123]. Bu durumda piruvat, asetil-CoA'ya dönüştürülür ve elektron donörleri NADH ve FADH2 aracılığıyla elektron taşıma zincirine (TCA) bağlanan trikarboksilik asit döngüsüne (TCA döngüsü) girer. TCA döngüsü, amino asitler ve yağ asitlerinin oksidasyonu ile yenilenebilir. Yağ asidi oksidasyonu (FAO) esas olarak düşük enerji ihtiyacı olan hücreler tarafından kullanılır ve CD8 hafızasında ve CD4 artı Treg gelişiminde kritik bir rol oynar [124]. Aktive edilmiş T hücreleri, glutamin alımlarını yukarı regüle eder ve TCA döngüsüne giren -ketoglutarat vermek için glutaminoliz gerçekleştirir.
Ek olarak, TCA döngüsü metabolitleri, enerji üretiminden başka yollarla bağışıklık fonksiyonlarını düzenleyebilir. Örneğin asetil-CoA, histon asetilasyonu için anahtar kofaktör olarak görev yapar [125]. Aktive edilmiş T hücrelerinde, histon asetilasyonu yoluyla IFNy üretimi için asetil-CoA gereklidir [126]. Asetil-CoA ayrıca hem doğuştan gelen hem de adaptif bağışıklık hücreleri için geniş fonksiyonel sonuçlara sahip olan mitokondriyal proteinlerin [127] asetilasyonuna katkıda bulunur [128].
Sessiz naif T hücreleri, enerji ihtiyaçlarını OXPHOS [129] ile karşılar.cistanche แ แ ม เว ย์IL-7 ve TCR sinyalleri, metabolik düzenlemeleri ve hayatta kalmaları için gereklidir [130, 131]. T hücreleri aktive edildiğinde, efektör fonksiyonlar ve biyokütle üretimi için acil bir enerji ihtiyacı ortaya çıkar. Hücreler, glikoz taşıyıcı 1(GLUT1) gibi taşıyıcıları yukarı regüle eder ve aerobik glikolize girerek fosfoinositid 3-kinaz (PI3K)-AKT-mTOR ekseni ve mitojenle aktive olan protein kinaz (MAPK) gibi yollar aracılığıyla sitokin üretimini teşvik eder. sinyalizasyon[132]. Glikolitik anahtar efektör işlevler için gereklidir, örn., IFNy üretimi, ancak çoğalma [133] için gerekli değildir. OXPHOS ayrıca çoğalma ve hayatta kalma amaçları için kullanılabilir. Aktive edilmiş T hücreleri fonksiyonel olarak glikolize dayansa da, OXPHOS kesinlikle vazgeçilmez değildir: OXPHOS oligomisin ile inhibe edildiğinde, T hücresi aktivasyonu ve proliferasyonu bloke edilir [133].
Dinlenme durumunda OXPHOS ve FAO'ya güvenmelerine rağmen, bellek T hücrelerinin antijen karşılaşması üzerine hızlı ve verimli bir şekilde yanıt vermesi gerekir. Bu nedenle, saf T hücrelerinden daha hızlı glikolize geçebilirler[134]. Daha büyük mitokondriyal kütle ve güçlü bir mitokondriyal yedek solunum kapasitesi bu biyoenerjetik avantajla ilişkilendirilmiştir [135, 136]. Ek olarak, mitokondriyal füzyon, bellek T hücrelerinin gelişimi ve işlevi için gereklidir [137].
Yaşlanmanın T Hücre Metabolizmasına Etkisi
Artan p38 MAPK aktivitesi, yaşlanan T hücrelerinin özelliklerinden biridir. p38'i inhibe etmek, mTOR'dan bağımsız bir şekilde telomeraz aktivitesini, proliferasyonu, otofajiyi ve mitokondriyal uygunluğu iyileştirir[17]. MAPK inhibisyonu, influenza aşılı yaşlı farelerde T hücresi ve antikor yanıtlarını da artırır[138].
PI3K'da fonksiyon kazanımı mutasyonları olan hastalarda, naif T hücreleri tükenmiştir, ancak yaşlılarda olduğu gibi, yaşlanmış efektör hücrelerin birikimi vardır [139]. Rapamisin tedavisi ile mTOR aktivitesinin inhibe edilmesi, bu hastalarda yaşlanma fenotipini kısmen eski haline getirir. Bu nedenle, aşırı aktif PI3K/AKT/mTOR sinyalleşmesi, T hücresi yaşlanmasının itici güçlerinden biri olarak önerilmektedir.
Yaşlı naif T hücreleri daha yüksek mitokondriyal kütleye sahiptir, ancak ilginç bir şekilde, muhtemelen solunum zinciri genlerinin transkripsiyonel aşağı regülasyonu nedeniyle daha az mitokondriyal solunum kapasitesi vardır [140]. Ayrıca, yaşlı naif T hücrelerinde tek karbon metabolizmasının enzimleri eksiktir ve tek karbon metabolizması metabolitleri olan format ve glisin takviyesi, hücre sağkalımını ve aktivasyonunu iyileştirir [14].
Otofaji, T hücre hafızasının oluşturulması için önemlidir ve spermidin tarafından otofajinin uyarılması, yaşlı farelerde influenza aşılamasına karşı CD8 artı T hücresi tepkilerini iyileştirir [142]. Yaşlıların CD4 artı bellek T hücreleri, yukarı regüle edilmiş oksidatif fosforilasyon, reaktif oksijen türleri (ROS) üretimi ve yağ asidi oksidasyonu sergiler [143].biyoflavonoidlerAyrıca, NAD'a bağımlı bir deasetilaz olan Sirtuin 1'in (SIRT1) daha genç hücrelere kıyasla daha yüksek ekspresyonuna sahiptirler. SIRT1 ve AMPK, iki önemli besin algılayıcı molekül ve mTOR'un negatif düzenleyicileri, birbirlerini pozitif olarak etkiler [144]. CD4 artı bellek hücrelerinin aksine, yaşlanma ile ilişkili terminal olarak farklılaşmış bellek CD8 artı CD28-T hücrelerinin bir aşağı regüle edilmiş SIRTI ifadeleriyle bağlantılı olan yüksek glikolitik kapasite [145].
CD8 artı TEMRA hücreleri, saf ve EM hücrelere kıyasla daha yüksek bir glikoliz ve glutaminoliz ile ilişkili gen ekspresyonuna ve daha büyük bir ATP havuzuna sahiptir[146]. TEMRA hücrelerinde yukarı regüle edilmiş glikolitik transkripsiyona rağmen, bazal glikoliz seviyeleri saf ve EM hücrelere benzer. EM hücreleri gibi, TEMRA hücreleri de aktivasyon üzerine glikoliz ve OXPHOS'u hızla artırabilir [146]. İşlev açısından, TEMRA hücreleri, yaşlanma durumlarına ve bozulmuş mitokondriyal işlevlerine rağmen sitotoksisite ve sitokin üretimi yeteneğine sahiptir [17, 36].
İmmün yaşlanmayı teşvik ettiği bilinen uzun süreli CMV enfeksiyonu, ayrıca T hücrelerinin hücresel metabolizmasını değiştirir, glikoz alımını arttırır, glikoliz teşvik eder, lipid sallarını yeniden yapılandırır ve kolesterol metabolizmasını bozar [147, 148]. Ayrıca, yaşam boyu süren CMV'ye bağlı kronik inflamasyon enfeksiyon pankreas hücrelerini bozar ve yaşlılarda tip 2 diyabet riskini artırır [149].
B Hücre Metabolizması
B hücresi metabolizması üzerine çok fazla araştırma yapılmamış olmasına rağmen, T hücrelerini düzenleyen metabolik yollar da B hücresi işlevi için gereklidir. BCR ve T hücresi yardımı ile antijen tanıma üzerine bir B hücresi aktive edildiğinde, PI3K/AKT/mTOR sinyalleşmesini aktive eder [150]. Aktive edilmiş T hücreleri gibi, aktive edilmiş B hücreleri de biyokütleyi artırmak ve çoğalmak için hızlı enerji üretimine ihtiyaç duyar. Sonuç olarak, oksijen tüketimi, OXPHOS ve mitokondriyal yeniden şekillenme ile birlikte glukoz ve glutamin alımı artar [151]. OXPHOS ve TCA döngüsünün glutamin beslemesi, glikozun vazgeçilmez olduğu halde B hücre büyümesi ve fonksiyonu için kritik biyoenerjetik yollar olarak öne sürülmüştür [152].
Bir çalışma, aktive edilmiş B hücrelerinin daha fazla mitokondriye sahip olduğunu, ancak benzer miktarlarda mitokondriyal DNA'ya sahip olduğunu göstermiştir; bu, aktivasyon üzerine mitokondriyal replikasyondan ziyade naif B hücre mitokondrilerinin çoklu nükleoidlerle fisyonunun gerçekleştiğini gösterir [152]. Başka bir çalışma, mitokondriyal yeniden yapılanma ve ROS seviyelerinin aktive B hücrelerinin kaderini belirlediğini ileri sürdü. Aktivasyon üzerine artan mitokondriyal kütle ve daha yüksek ROS seviyelerine sahip hücreler, sınıf değiştirme rekombinasyonu için hedeflenirken, mitokondriyal kütlesi azalmış hücreler plazma hücre farklılaşmasına maruz kalır [153].
GC'lerde aktive edilmiş B hücrelerinin enerji ihtiyaçları sıklıkla değişir [154].ne kadar cistanche alınırHipoksik ışık bölgesinde hücreler daha az oksijen tüketir ve daha fazla glikolitiktir. mTORC1 burada glikolizin düzenlenmesi için gerekli değildir, ancak c-Myc ile birlikte hücrelerin pozitif seçimi ve karanlık bölgeye göç için kritiktir. proliferasyon ve somatik hipermutasyon için [155,156].

Cistanche yaşlanmayı geciktirebilir
GC olgunlaşması üzerine, bir hücre bellek B hücrelerine farklılaştığında, metabolik durum baskın OXPHOS ile daha sessiz hale gelir. Bununla birlikte, daha sonra antikor üreten plazmablastlara farklılaşma için mTORC1 ve glikolizin hızlı yeniden aktivasyonu mümkündür[157]. Ayrıca, bellek B hücreleri, antijenle karşılaşana kadar hayatta kalmaları için gerekli olan yüksek bazal otofajiye sahiptir [158,159].
GC'ler ayrıca saniyede binlerce antikor üretebilen uzun ömürlü plazma hücreleri üretir. Bu, doğal olarak, oldukça enerji gerektirir. mTORC1, plazma hücresi üretimi ve antikor sentezi için gereklidir [160]. Plazma hücreleri yüksek düzeyde glikoz alımına sahiptir, ancak glikozun çoğu protein glikozilasyonu için kullanılır [161]. Yine de, glukoz taşıyıcı Glute silindiğinde plazma hücrelerinin hayatta kalması ve antikor üretimi bozuldu [162]. Ayrıca, glikoliz tarafından sağlanan piruvatın mitokondriyal ithalatı, plazma hücrelerinin uzun süreli bakımı için kritik öneme sahiptir [161].
Son olarak, dokuda yerleşik B1 B hücreleri, glikoliz ve OXPHOS'ta diğer B hücrelerine, klasik antikor üreten ve bellek B hücrelerine göre daha aktiftir. Ek olarak, otofaji, mitokondriyal fonksiyon ve B1 hücrelerinin kendini yenilemesi için kritik öneme sahiptir [163].
Yaşlanmanın B Hücre Metabolizması Üzerindeki Etkisi
B hücre metabolizmasının nasıl düzenlendiği ve organizmalar yaşlandıkça işlevi nasıl etkilediği hakkında daha az literatür vardır. Bir çalışma, yaşlı bireylerin antikor salgılayan B hücrelerinin daha düşük SIRTI ekspresyonuna sahip olduğunu ve daha yüksek SIRT1 seviyelerinin, çoklu influenza virüsü suşuna karşı daha iyi antikor yanıtı ile ilişkili olduğunu göstermiştir [164]. Ayrıca, yaşlıların naif ve aktive edilmiş B hücreleri, biraz daha az glikolitik kapasiteye ve OXPHOS'ta daha çarpıcı bir azalmaya sahipti. Farelerde, yaşlı B hücreleri, genç muadilleriyle benzer glikoliz ve OXPHOS oranlarına sahipti, ancak stimülasyon üzerine OXPHOS'u daha fazla geliştiremedi[165] ]. Bununla birlikte, hücreler, enerji ihtiyaçlarını karşılamak için glikolizi yukarı regüle edebildiler.
Adipositler tarafından salgılanan proinflamatuar bir hormon olan leptin, obez bireylerin dolaşımında daha yüksektir [166]. Obez olmayan kişiler arasında, leptin konsantrasyonları yaşlılarda çarpıcı biçimde daha yüksektir [167]. Serumdaki leptin bolluğu da kırılganlıkla pozitif ilişkilidir[168]. Leptine maruz kaldıktan sonra, genç zayıf bireylerden alınan B hücreleri, transkripsiyonel profil ve antikor sekresyonu açısından yaşlı zayıf ve genç obez bireylerin B hücreleri ile benzer bir profil sergiler[167]. Leptin ayrıca in vitro olarak B hücrelerinden influenzaya özgü antikor üretimini azaltır. Obezitenin aşıya karşı B hücre yanıtlarını bozduğu bilinmektedir ve çalışmalar leptinin bundan kısmen sorumlu olabileceğini düşündürmektedir [169].
Ek olarak, antikorların transkripsiyon sonrası glikosilasyonu, işlevlerini modüle eder ve değişen glikosilasyon paternleri yaşlanmayla bağlantılıdır [170,171]. 4-Galaktosiltransferaz aktivitesi yaşla birlikte artar [172] ve henüz keşfedilmemiş olmasına rağmen fonksiyonel sonuçları olacaktır.
Eğitimli Bağışıklıkta Metabolizma
Metabolik yeniden programlama, kromatin yeniden şekillenmesiyle birlikte eğitimli bağışıklığın (doğuştan gelen bağışıklık belleği olarak da bilinir) altında yatan temel mekanizmalardan biridir. Aslında, bazı metabolitler, örneğin asetil-CoA, epigenetik enzimleri düzenleyebildiğinden, metabolik değişiklikler epigenetik değişiklikleri yönlendirebilir[173]. Fumarat, epigenetik değişiklikleri yönlendiren TCA metabolitlerinin bir örneğidir. Kendi başına eğitimli bağışıklığı indükleyebilir ve bu süreç sırasında birikmesi, IL-6 ve TNF [104] promotörlerinde histon 3 lisin 4'ün trimetilasyonunu indükler. Bunun nedeni, lizine özgü histon demetilaz KDM5'in aktivitesini inhibe eden fumarattır.
AKT/mTOR/HIFl yolu, -glukan tarafından eğitilmiş monositlerde aerobik glikoliz indüklemek için en kritik yoldur[174]. -Glukanın neden olduğu eğitimli bağışıklığın aksine, BCG sadece glikolizi değil, aynı zamanda OXPHOS'u da yukarı regüle eder [175]. Glutaminoliz ve kolesterol sentezi, -glukan kaynaklı eğitimli bağışıklık için diğer önemli metabolik yollardır[104]. Bu yolakları kesintiye uğratmak bu süreçleri in vitro ve in vivo bloke eder. BCG ayrıca glutaminolizi indükler ve glutamin mevcudiyeti eğitimli yanıt için önemlidir [175].

Kolesterolün sentezi, eğitimli bağışıklık için değil, ara mevalonatın birikimi için esastır. Mevalonat oluşumunu bloke etmek, eğitilmiş bağışıklığı inhibe ederken, tek başına mevalonat, insülin benzeri büyüme faktörü 1(IGF1) reseptörü ve mTOR'un aktivasyonu yoluyla monositlerde eğitimli bağışıklığı indükleyebilir [176].cistanche nedirAyrıca, glikoliz ve mevalonat yolaklarındaki değişiklikler sadece monositlerde değil, HSPC'lerde de gözlenir[108].
Doğal bağışıklık hafızasının mikrobiyal olmayan bir indükleyicisi olan oxLDL, hem glikoliz hem de oksijen tüketimini yukarı regüle eder ve yüksek glikoz mevcudiyeti, eğitimli bağışıklık tepkisini daha da geliştirir [103]. Benzer şekilde, katekolamin kaynaklı eğitimli bağışıklığa, artan glikoliz ve oksijen tüketimi eşlik eder. Not olarak, belirli metabolik yeniden kablolama, doğuştan gelen bağışıklık belleğinin farklı indükleyicileri için farklılık gösterebilir. Örneğin, aldosteron ile stimülasyon, yüksek glikoliz veya OXPHOS ile ilişkili değildir, ancak yağ asidi sentezine bağlıdır [177].
Henüz, eğitimli bağışıklık tepkileri ve ilişkili metabolik durumlar, yaşlanma bağlamında karakterize edilmemiştir. Bununla birlikte, yaşlılarda BCG aşısı ile ilgili devam eden birkaç büyük ölçekli çalışma, BCG'nin neden olduğu eğitimli bağışıklığın yaşlı bağışıklık hücrelerinin metabolizması üzerindeki etkilerine kısa sürede ışık tutacaktır (NCT04537663, NCT04417335).
Epigenetik Değişikliklerin Bağışıklık Hafızasındaki Rolü
Epigenetik değişiklikler, bir genin çalışma şeklini düzenleyen histon modifikasyonlarını ve DNA metilasyonunu içerir. Bu modifikasyonlar dinamiktir ve yaşam boyunca tüm hücreleri ve dokuları etkiler. Yaşlanmanın yanı sıra çevre ve yaşam tarzı da dramatik epigenetik değişikliklere yol açabilir. Bu derlemenin amacı doğrultusunda, yaşa bağlı epigenetik modifikasyonların doğuştan gelen ve adaptif bağışıklık belleğini nasıl değiştirdiğine odaklanacağız.
Adaptif Bağışıklıkta DNA Metilasyonu
DNA metilasyonu, bir metil grubunu sitozinin 5. karbonuna transfer ederek meydana gelen en bol epigenetik modifikasyondur [178]. DNA metilasyonu her zaman daha düşük bir gen ifadesini göstermez; bununla birlikte, gen promotörlerindeki metilasyon, genellikle zayıf TF bağlanması ve azaltılmış transkripsiyon ile ilişkilidir[179]. Biyolojik cinsiyet, genetik arka plan, çevresel faktörler ve yaş, DNA metilasyon profilini etkiler [180]. Bu faktörler arasında yaşa bağlı metilasyon çok iyi karakterize edilmiştir. Dikkat çekici bir şekilde, çeşitli doku veya hücrelerden belirli CpG bölgelerinin metilasyon seviyelerine dayalı biyolojik yaşı tahmin etmek için farklı matematiksel modeller geliştirilmiştir [180-182].
Bazı gen promotörlerinde anormal hipermetilasyon paternleri gözlenmesine rağmen, ilerleyen yaş, DNA üzerindeki metilasyon işaretlerinin ilerleyici kaybı ile ilişkilidir [183]. Metilasyon ortamındaki değişiklikler şunlardır: CD4 artı T hücrelerinde CD28 yardımcı uyarıcı protein kaybı, T hücresi aktivasyonunun ve farklılaşmasının bozulmasına yol açan iyi karakterize edilmiş yaşlanma işaretlerinden biridir. CD28 plus ve CD28"1 T hücrelerinin metilasyon profillerinin bir karşılaştırması, zayıf TCR sinyali ve sitotoksik tepki ile bağlantılı 296 diferansiyel olarak metillenmiş gen ortaya çıkardı. bu hücrelerin daha yüksek bir ön aktivasyon durumuna sahip olduğu bir başka çalışmada, orta ve yaşlı gruplarda CD4 artı T hücrelerinin BACH2 lokusunda artan metilasyonun daha düşük BACH2 ekspresyonu ile sonuçlandığı bildirilmiştir [195].BACH2'nin bağışıklıkta düzenleyici bir rolü vardır. tepkiler, CD4 artı T hücre farklılaşmasını modüle etme ve inflamasyonu kontrol etme [196] Genel olarak, DNA metilasyon modellerindeki değişiklikler, CD4 artı T hücrelerinin yaşlılarda daha inflamatuar hale gelmesine katkıda bulunur.
Birkaç çalışma, aktivasyon ve hastalıklar [197-200] sırasında B hücrelerinin DNA metilasyon profiline ışık tuttu; bununla birlikte, B hücrelerinin yaşa bağlı metilasyon değişikliklerinden etkilenip etkilenmediği henüz bilinmemektedir.
Adaptif Bağışıklıkta Histon Değişiklikleri
N-terminal histon kuyrukları, asetilasyon, metilasyon, fosforilasyon, ubiquitilasyon ve sumolasyon dahil olmak üzere translasyon sonrası enzimatik modifikasyonlar için hedeflerdir [201]; ancak bu derleme, histon yapısını düzenleyen en iyi karakterize edilmiş değişiklikler olan metilasyon ve asetilasyona odaklanacaktır. Metil grupları histona histon metiltransferazlar tarafından eklenir ve histon demetilazlar tarafından çıkarılır [202]. Histon 3 lisin 4(H3K4me3), histon 3 lisin 36(H3K36) ve histon 3 lisin 79(H3K79) trimetilasyonu, açık ve aktif olarak kopyalanmış bölgelere bağlanır [203]. Öte yandan, histon 3 lisin 9(H3K9me), histon 3 lisin 27(H3K27me) ve histon 4lisin 20(H4K20me) monometilasyonu, kapalı ve inaktif kromatin bölgeleri ile ilişkilidir. Ayrıca histon asetilasyonu, gevşemiş kromatin yapısı ve artan gen transkripsiyonu ile ilişkilidir [204]. Histon asetiltransferazlar lizin asetilasyonunu katalize ederken, histon deasetilazlar (HDAC'ler) modifikasyonu tersine çevirir [205]. Histonların translasyon sonrası modifikasyonları sadece genlerin erişilebilirliğini ve transkripsiyonunu etkilemekle kalmaz, aynı zamanda alternatif ekleme, DNA replikasyonu ve onarımını da modüle eder [206]. Histonlardaki histonlar ve epigenetik işaretler, yaşlanma ile geçişlere uğrar. Yaşlı farelerden alınan HSC'ler, genç HSC'lere kıyasla daha fazla H3K4me3 ve H3K27me3 piklerine sahiptir [186]. Ayrıca, CLP'lerin düzenleyicilerinden biri olan FLT3'ün ekspresyonu, eski HSC'lerde H3K27me3 nedeniyle azalmıştır, bu da zayıf lenfoid farklılaşma potansiyeli arasında bir bağlantı olduğunu düşündürür. yaşlılarda HSC'lerin sayısı. Genç ve yaşlı monozigotik ikizler üzerinde yapılan kapsamlı bir çalışma, yaşlanma sırasındaki kromatin modifikasyonlarının kalıtsal olmadığını göstermiştir [207]. Ayrıca, histon modifikasyon profilleri bir dereceye kadar genç bireylerde homojen ve yaşlı bireylerde heterojendir. Yaşlılarda bireyler ve hücre tipleri arasında histon modifikasyonlarında heterojenlik gözlendi.

Epigenetik değişiklikler, yaşlıların CD8 artı T hücrelerinde görülen majör kusurların altında yatan nedenlerden biridir. Yaşlılarda T hücre sinyalizasyonu ile ilgili genlerin güçlendirici ve promotör bölgelerinde gençlere kıyasla daha kapalı kromatin bölgeleri gözlenir [208]. Ayrıca, -7R, bellek CD8 artı T hücrelerinde, yaşlılarda çoklu kapalı kromatin tepeleriyle ilgili en önemli genlerden biridir. IL-7, T ve B hücrelerinin homeostazını ve korunmasını sağladığından, yaşlılarda zayıf IL-7 sinyali, bozulmuş adaptif immün yanıtın altında yatan bir neden olabilir [209]. Ayrıca, yaşlılardaki saf CD8 artı hücreler, zayıf nükleer solunum faktörü 1 (NRF1) bağlanmasıyla ilişkili gen promotörlerinde daha düşük kromatin erişilebilirliğine sahiptir[140]. NRF1'in oksidatif fosforilasyondaki rolü göz önüne alındığında, azalmış kromatin aktivitesi, yaşlılarda bozulmuş CD8 T hücre metabolizmasını kısmen açıklayabilir[210]. Çalışmanın diğer önemli bulguları, açık kromatin bölgelerinin bir hafıza hücresi profili ile ilişkili olması ve yaşlı bireylerde promotörlerin erişilebilirliğinin azalmasıdır.
DNA metilasyon bölümünde bahsedildiği gibi, CD4 artı T hücrelerinde BACH2 ekspresyonunda yaşa bağlı bir azalma gözlenir. Düşük BACH2 gen transkripsiyonuna yol açan başka bir mekanizma, immün yaşlanmada gözlenen Menin eksikliğinden kaynaklanmaktadır [211]. Menin, lokusuna bağlanarak ve histon asetilasyonunu koruyarak BACH2 ekspresyonunu indükler. Menin'in BACH2 lokusuna azalan bağlanması ve ardından azalan BACH2 ekspresyonu, CD4 artı T hücrelerinde immüno-yaşlanmaya katkıda bulunur. Yaşlı ve genç farelerde B hücre öncülerindeki epigenetik değişiklikleri araştıran bir çalışma, bu değişiklikleri gen ekspresyonları ile ilişkilendirmiştir [212]. Yaşlanmış pre-B hücrelerinin, daha düşük transkripsiyon ile ilişkili olan insülin reseptörü substratı 1'in (IRSI) promotör bölgesinde bir H3K4me3 kaybı sergilediğini ortaya çıkardı. Kemik iliğinde B hücrelerinin gelişimi için insülin sinyali gerekli olduğundan[213], azalmış insülin büyüme faktörü (IGF) sinyali B hücre gelişiminde kusurlara yol açabilir.
Eğitimli Bağışıklığın İşareti Olarak Epigenetik Yeniden Programlama
Farklı bir epigenetik profil, ilk hakaretin ardından eğitimli bağışıklık tepkilerini düzenler. Belirli enfeksiyonların veya stimülasyonların bir sonucu olarak, hazır hücreler, iltihaplanma ve metabolizma ile ilgili genlerin transkripsiyonunu kolaylaştırarak heterolog bir enfeksiyona daha güçlü yanıt vermelerini sağlayan epigenetik bir yeniden programlamaya tabi tutulur [106].
H3K4me3, -glukan tedavisinden sonra monositlerde karakterize edilen ilk epigenetik işarettir [91]. Diğer analizler, H3K4me3 tepe noktalarının TNF, IL6, IL18, DESTINY ve MYD88 genlerinin promotör bölgelerinde zenginleştiğini ortaya koydu ve bu, gen transkripsiyonlarının bu bölgelerde daha aktif olduğunu gösterdi. Ek olarak, artan H3K27ac, eğitimli hücrelerde iyi karakterize edilmiş bir histon işaretidir ve glikoliz ve PI3K/AKT yolu aktivasyonunu teşvik eder[174, 214]. H3K4me3 ve H3K27ac'deki zenginleşmenin yanı sıra, sitokin üretimi ve glikoliz ile ilgili genlerin promotörlerinde H3K9me3'te azalma bulundu[175]. H3K9me3 baskıcı bir işaret olduğundan, azaltılmış trimetilasyon, açık kromatin bölgelerinin varlığını düşündürür. Bu çalışmalar, eğitilmiş bağışıklık tepkilerinin, arttırılmış sitokin tepkilerini ve spesifik metabolik değişiklikleri kolaylaştıran epigenetik modifikasyonlar tarafından modüle edildiğini göstermektedir. Eğitimli hücreler ortak bir epigenetik profili paylaşır; bununla birlikte, farklı uyaranlar küçük benzersiz epigenetik değişikliklere yol açabilir.
Enfeksiyonlar ve belirli uyarılar, doğuştan gelen bağışıklık hücrelerinin histonlarının yanı sıra DNA metilasyon profili üzerinde de iz bırakır [215]. Çalışmalar, yanıt verenleri yanıt vermeyenlerden ayırt ederek, BCG aşısını takiben anti-mikobakteri yanıtında DNA metilasyonunun rolünü göstermektedir [216,217]. BCG aşısına yanıt verenler, inflamatuar genlerin promotörlerinde DNA metilasyonunun azalmasıyla karakterize edildi [216]. Bununla birlikte, DNA(de)metilasyonunun spesifik olmayan koruyucu tepkilerin gelişiminde doğrudan bir rol oynayıp oynamadığı hala araştırılmaktadır.
Yetişkinlerde olduğu gibi, eğitimli bağışıklık yaşlılarda histon modifikasyonları ile modüle edilir. Giamarellos-Bourboulis ve meslektaşları yakın zamanda yaşlılarda BCG aşılaması üzerine artan sitokin üretiminin, TNF ve IL6 genlerinin promotör bölgelerinde H3K27'nin asetilasyonunun eşlik ettiğini gösterdi [113]. Bununla birlikte, yetişkinler ve yaşlı bireyler arasında doğuştan gelen bağışıklık belleği gelişimini takiben epigenetik farklılıkları karşılaştırmak ve yaşlanmanın eğitimli bağışıklık bağlamında epigenetik işaretleri nasıl etkilediğini araştırmak için daha ileri çalışmalar garanti edilmektedir.
Bağırsak Mikrobiyotası Modüle Edici Bağışıklık Belleği
Yaşlanma, insanın tüm vücudunda değişikliklere neden olur ve orada yaşayan trilyonlarca mikrop muaf değildir. Bağırsak mikrobiyotasının bileşimi ve çeşitliliği bebeklik döneminde dinamik olarak değişir, yetişkinlikte nispeten sabit kalır ve yaşlılıkla azalmaya başlar [218].
Mikrobiyota ve Adaptif Bağışıklık Sistemi Etkileşimleri
Bağırsak mikrobiyotası, belirli bir düzeyde bağışıklık tepkisini indükleyerek ve iltihaplanmayı ince ayar yaparak adaptif bağışıklık sistemini eğitmede önemli rollere sahiptir. Örneğin, bağırsakta bir kommensal olan Bacteroides fragilis, CD4 artı T hücresi farklılaşmasını T yardımcı 1 (Th1) ve Th2[219] olarak geliştirir ve düzenler. Bağırsak bakterileri ve TGF varlığında, saf CD4 artı T hücreleri Treg olur, bağışıklık homeostazını sürdürmek için IL-10 üretiyor. Öte yandan, bağırsağın lenfoid foliküllerindeki Treg ve Th17 hücreleri, B hücre sınıfı değişimini indükleyerek IgA salgılanmasına neden olur [220.221]. B hücrelerinden mikrobiyota ile ilişkili IgA, IgM ve IgG salgılanması da T hücresi yardımı olmadan TLR sinyal aktivasyonu yoluyla gerçekleşir [22].
Adaptif bağışıklık sistemi, doğuştan gelen bağışıklık sisteminin aracılık ettiği kommensal bağırsak mikroplarına karşı inflamatuar yanıtı sınırlayabilir. B hücreleri tarafından üretilen IgA, yararlı mikroorganizmalara karşı inflamatuar yanıtı kontrol eden sürdürülebilir konak-mikrop etkileşiminin bir parçası olarak açıklanır [223]. Ayrıca, bağırsak Treg hücreleri, metabolik ürünler ve kommensaller gibi bağırsak antijenleri için TCR'leri ifade ederken, vücuttaki diğer Treg'ler, kendi antijenleri için TCR'leri eksprese eder [224]. Bu şekilde, bağırsak Treg hücreleri, bağırsak antijenlerine karşı bağışıklık tepkilerini bastırır ve bir bağışıklık düzenleyici rol oynar. bağırsaklardaki rolü.
Mikrobiyotanın adaptif bağışıklık sistemi gelişimini nasıl çarpıcı bir şekilde şekillendirdiği mikropsuz farelerde de gösterilmiştir: Bağırsakta mikrobiyal türlerin olmaması, ikincil lenfoid doku gelişimindeki [225] ve düşük IgA üretimindeki[226] ve düşük Th17'deki kusurlarla karakterize edilir. hücreler ve Tregler [227]. Bağırsaktaki mikrobiyal türler tarafından üretilen kısa zincirli yağ asitlerinin (SCFA'lar) bağışıklık sistemi gelişimine ve tepkilerine büyük ölçüde katkıda bulunduğuna dikkat edilmelidir [228].
Sağlıklı bir bağırsak mikrobiyota bileşimi, bireyleri hastalıklardan korumada önemlidir. Örnek olarak, IL-10 salgılayan IgA artı plazma hücreleri ve bağırsaktan kaynaklanan plazmablastlar, farelerde indüklenen deneysel otoimmün ensefalomiyelite direnç kazandırır [229]. Başka bir çalışma, bağırsak mikrobiyotasının GM-CSF ve IL-17A salgısını indükleyerek S.pneumoniae ve K. pneumoniae tarafından indüklenen solunum yolu enfeksiyonlarına karşı koruduğunu bildirmiştir [230].
Yaşlanmada Disbiyozun Rolü
Mikrobiyal türlerin dengesizliği olan bağırsak disbiyozunun insidansı yaşla birlikte artar ve çok sayıda sağlık sorunuyla ilişkilidir [231]. Bununla birlikte, yaşlanma sırasında bağışıklık hücrelerinin hücresel ve moleküler değişikliklerinin bağırsak mikrobiyotasının bileşimini ve işleyişini etkileyip etkilemediği veya yaşa bağlı disbiyozun kusurlu bağışıklık tepkilerini tetikleyip tetiklemediği açık değildir. Her ikisinin de aynı anda doğru olması muhtemeldir, ancak bu soruyu çözmek için bağırsak mikrobiyota-bağışıklık sistemi etkileşimlerinin daha iyi anlaşılması gereklidir.
Bireyler yaşlandıkça, Bifidobacterium gibi bazı yararlı bakteri türlerindeki azalmanın yerini patojenik türlerin, yani Enterobacteriaceae'nin büyümesi alır [232]. Yaşlı insanlarda Firmicutes'de bir azalma ve Proteobacteria'da bir artış da bildirilmiştir [233]. Ayrıca, bağırsak disbiyozu obezite [234], tip 2 diyabet [235], Alzheimer hastalığı [236] ve artan enfeksiyon insidansı [237-239] dahil olmak üzere yaşa bağlı çeşitli hastalıklarla ilişkilidir. Disbiyoz ile ilişkili kronik enflamasyon, yaşlanmış ve uykuda olan tümör hücrelerinin zayıflamış fagositozu ve tümöre özgü CD8 artı T hücrelerinin bozulmuş aktivasyonu nedeniyle yaşlılarda kanser gelişme riski de daha yüksektir [240].
Disbiyozun ayrıca aşırı inflamasyonu ve sızdıran bağırsak ve gastrointestinal sistemin azalmış fonksiyonları dahil olmak üzere çeşitli komplikasyonları tetikleyerek yaşlı bireylerde yaşa bağlı çeşitli patolojilerin ve erken ölümün başlıca nedeni olduğu öne sürülmüştür [228]. Buna paralel olarak, mikrobiyal türlerin belirli bir bileşimi ve çeşitliliği, yaşlılarda sağlık, zindelik ve artan hayatta kalma ile ilişkilidir [241,242]. Yakın zamanda yapılan bir çalışma, sağlıklı yaşlıların mikrobiyota kompozisyonlarında belirli bir kayma yaşadığını, kırılgan yaşlılarda ise bu kaymanın olmadığını ortaya koydu [242]. Ayrıca, yaşlanma sırasında yüksek Bacteroides bolluğuna sahip olmak, 4-yıllık takip süresi boyunca azalmış sağkalım oranı ile ilişkilidir. 15 yıllık takibi olan bir başka yeni çalışma, Enterobacteriaceae bolluğunun yaşlılarda gastrointestinal ve solunum nedenleriyle ilgili ölümlerle önemli ölçüde bağlantılı olduğunu bildirmiştir [243].
Disbiyoz, bakteri türlerinin konakçı dokulara translokasyonu ile sonuçlanan bağırsak bariyer bütünlüğünde kusurlara yol açabilir. Bu bakteriler, nötrofillerin ve farklılaşmış Th17 hücrelerinin toplanması yoluyla inflamasyon yaratır [244]. Örneğin, bağırsak bariyerindeki kusurlardan kaynaklanan gram pozitif bir patobiyont E.gallinarum'un translokasyonu, Th17 tepkisini ve otoantikor üretimini indükler [245].
Akkermansia, bağırsak bariyeri bütünlüğünü [228] koruduğu ve antikor ve T hücre yanıtlarını [246] geliştirdiği gösterilen yararlı bir ortaktır. Akkermansia kaybı, yaşlı insan olmayan primatlarda ve farelerde insülin direnci ile ilişkilidir [247. Azalan bütirat ve Akkermansia bolluğu bağırsak sızıntısını arttırır, bu da proinflamatuar tepkileri arttırır.
Öte yandan bir insan çalışması, Akker-maninin yaşlılarda daha fazla olduğunu bildirmiştir [248]. Ayrıca, Akkermansia, yaşlı insanlarda serum IgA ve CD8 artı T hücreleri ile önemli ölçüde ilişkiliydi ve CD4 artı T hücreleri ile negatif olarak ilişkiliydi. Yaşlılarda daha az bulunan bakteriyitler, orta yaş grubunda serum IgG seviyeleri ve CD4 artı T hücre bolluğu ile pozitif korelasyon gösterdi. Sonuç olarak, bu çalışma, aralarında doğrudan bir bağlantı olmamasına rağmen, adaptif bağışıklık sistemi ile bağırsak mikrobiyota bileşimi arasındaki ilişkiyi vurgulamaktadır.
Mikrobiyota ayrıca yaşlılarda hastalık seyrini ve aşı yanıtlarını da etkiler. İnsan immün yetmezlik virüsü (HIV) için antiviral tedavi başarılı olmasına ve hastaların yaşam beklentisini artırmasına rağmen, yaşlı HIV artı insanlar HV-yaşlılara kıyasla daha fazla komorbiditeden muzdariptir. HIV artı yaşlılar, 55 yaşından büyük HIV bireylerine göre daha az CD4 artı T hücresine ve daha fazla CD8 artı T hücresine sahiptir[249]. Ayrıca, bağırsakta Prevotella bolluğu, CD4 artı T hücre sayısı düşük olan bireylerde önemli ölçüde daha yüksektir. Prevotella daha önce kardiyovasküler hastalıklarla ilişkiliydi [250], ancak bağışıklık sistemi ile nasıl etkileşime girdiği henüz net değil. Bağırsak mikrobiyotasındaki yaşa bağlı değişikliklerin aşılamalardan sonra zayıf bağışıklık tepkilerine katkıda bulunması muhtemeldir [251]. Bazı çalışmalar probiyotik takviyelerin yaşlılarda grip aşısından sonra antikor titrelerini artırdığını [252-255] bildirirken, birkaç çalışma sınırlı veya hiç etki göstermedi [87,256,257]. Sonuçlardaki farklılıklar, numune boyutu, probiyotik türü ve dağıtım yolu dahil olmak üzere birçok faktöre bağlı olabilir. Bununla birlikte, çalışmalar mikrobiyotadaki dengesizliklerin bağışıklık tepkilerinin bozulmasına neden olduğunu ve yaşlılarda daha iyi bir aşı tepkisi için sağlıklı bileşimin eski haline getirilmesinin faydalı olabileceğini kuvvetle önermektedir.
Gut Microbiota tarafından Doğuştan Bağışıklık Belleği İndüksiyonu
Adaptif bağışıklık hücreleri olarak, doğuştan gelen bağışıklık sisteminin üyeleri, bağırsak mikrobiyotası ile yakından etkileşime girer. Birkaç çalışma, mikrobiyotanın, hücreleri mikrobiyal antijenler ve SCFA'lar ile hazırlayarak veya tolere ederek bağışıklık hafıza gelişimini düzenleyebileceğini düşündürmektedir. Örneğin, bir mantar hücre duvarı bileşeni olan -glukan ve BCG, sırasıyla Dectin-1 ve NOD2 sinyal yollarıyla hareket eder [91,100]. Dectin-1 ve Nod benzeri reseptörler (NLR'ler), bağışıklık sistemi olmayan hücreler de dahil olmak üzere bağırsaklardaki çeşitli hücre tiplerinde bulunduğundan, bu hücrelerin bağırsak mikrobiyomuna maruz kalmaları nedeniyle bağışıklık belleği geliştirdiğini önermek akla yatkındır. . Bu argümanı destekleyen, bağırsak mikrobiyotasından türetilen peptidoglikan fragmanlarının, doğuştan gelen bağışıklık sistemini hazırlayarak nötrofillerin öldürme kapasitesini arttırdığı gösterilmiştir [258].
Ayrıca, bağırsak mikrobiyotasının, farelerin kemik iliğindeki miyeloid progenitörlerinin sayısındaki artışa benzer şekilde, farelerin enfeksiyona karşı korunması için miyelopoezi indüklediği gösterilmiştir [108]. Lipopolisakkarit (LPS), flagellin ve -glukan gibi diğer mikrobiyotadan türetilen bileşenler de, uyaranların dozu bağışıklık belleği veya tolerans yanıtı için kritik olmasına rağmen, bağırsaklarda eğitimli bağışıklığı indükleyebilir [260]. Daha önce bahsedildiği gibi, eğitimli bağışıklığa kapsamlı metabolik ve epigenetik programlama aracılık eder. Kommensal bağırsak mikropları ve mikropların kendileri tarafından üretilen moleküller ve metabolitler, hem doğal hem de adaptif bağışıklık hücrelerinde bu tür değişiklikleri indükleyebilir [261]. Örneğin, anti-mikrobiyal aktivitede bir artışa neden olmasına rağmen, bağırsak mikropları tarafından üretilen butirat, makrofajlarda muhtemelen azalmış mTOR aktivitesinden ve HDAC3'ün inhibisyonundan kaynaklanan eğitimli bağışıklığın tersi etkilere sahiptir [262].
İmmün olmayan hücrelerin, örneğin fibroblastların [263], epitel hücrelerinin [264] ve bağırsak stromal hücrelerinin (ISC'ler)[265] ayrıca ikincil enfeksiyondan sonra artan tepki göstererek bağışıklık belleği oluşturma yeteneğine sahip olduğuna dikkat etmek önemlidir. ISC'lerin, ikincil ilişkili veya ilişkisiz bir enfeksiyon sırasında enfeksiyonu daha hızlı temizleyebildiği gösterilmiştir, bu da bağışıklık belleğinin varlığını gösterir [266]. Bu nedenle, bağışık olmayan hücreler de bağırsak mikropları ve bağışıklık sistemi arasındaki dengeye katkıda bulunur.
Bağırsak mikrobiyotası ile doğuştan gelen bağışıklık belleğinin uyarılması arasındaki güçlü bağlantılar göz önüne alındığında, eğitilmiş bağışıklık tepkisinin yaşlılarda dysbiosis tarafından düzensiz düzenlenebileceği varsayılabilir. hastalık patogenezine katkıda bulunabilir. Bununla birlikte, mikrobiyotadaki yaşa bağlı değişikliklerin doğuştan gelen bağışıklık belleğini nasıl etkilediğini anlamak için daha fazla araştırmaya ihtiyaç vardır.
Bağışıklık Sistemi ve Beyin Arasındaki Çapraz Konuşma
Yaşlanma, DNA hasarı, atık ürünlerin birikmesi, oksidatif stres, bozulmuş enerji homeostazı ve bozulmuş fonksiyon yoluyla merkezi sinir sisteminde (CNS) büyük ölçüde bozulmaya neden olur [267]. Beyin ve CNS'nin geri kalanı, bir zamanlar düşünüldüğü gibi immünolojik olarak izole değildir: bağışıklık sistemi ve CNS arasında kapsamlı bir karşılıklı konuşma vardır. Beyin homeostazı ve rejenerasyonu, sağlam bir bağışıklık sistemine bağlıdır [268]. Bu nedenle yaşlılıkla birlikte bağışıklık sisteminin bozulması, beyin yaşlanmasına ve nörodejeneratif hastalıklara katkıda bulunur ve hızlanır.
CNS parankiminde yerleşik immün hücre tipi, gelişimin erken dönemlerinde yolk kesesindeki ilkel makrofaj progenitörlerinden kaynaklanan mikrogliadır [269]. Mikroglia, sağlıklı bir beynin korunması için son derece önemlidir. İmmün gözetimi gerçekleştirir, enfeksiyonlara yanıt verir, dolaşımdaki bağışıklık sistemi ile iletişimi düzenler, nöronları ve beyindeki diğer hücre tiplerini, fagositoz hücresel enkazları, yanlış katlanmış proteinleri, toksik ürünleri ve hatta sinapsları düzenler [270]. Mikroglia yaşlanma ile değişir ve yaşa bağlı nörodejeneratif hastalıklara katkıda bulunur [271]. Fagositik kapasiteleri ilerleyen yaşla birlikte azalır ve kronik düşük dereceli inflamasyon durumuna katkıda bulunurlar. Bu derlemenin bağışıklık belleğine odaklanması nedeniyle, mikro-glia üzerinde ayrıntılara girmeyeceğiz ve bunun yerine beyin yaşlanması bağlamında adaptif bağışıklık ve eğitimli bağışıklığın rolüne odaklanacağız.
Kan-beyin bariyeri (BBB), bağışıklık hücrelerinin beyne sızmasını büyük ölçüde engeller. Bununla birlikte, beyin omurilik sıvısında (BOS) ve koroid pleksustaki (CP) kan-BOS bariyerinde belirli bağışıklık hücre tipleri mevcuttur [272]. Beynin karıncıklarında bulunan CP, gömülü kılcal damarlara sahip BOS üreten bir epitel hücre ağıdır. T hücreleri CP'de bulunur ve CP epitelinin IFNy'ye bağlı aktivasyonu ile BOS'a immün hücre kaçakçılığını düzenlerler [273].
Bağışıklık hücreleri, homeostaz sırasında, yaralanma üzerine veya nörodejeneratif koşullar altında nöronal sağkalıma ve nörogeneze katkıda bulunur [272]. CNS'ye verilen hasar, nöronal kaybı önleyen koruyucu bir T hücresi tepkisini indükler [274]. CD4 artı lenfositler, bu "nöroprotektif bağışıklıkta" en belirgin rolü oynar.
Nöroprotektif T-Hücre Bağışıklığı
CP, CNS'ye özgü kendi antijenlerini tanıyan bir efektör-hafıza fenotipine sahip CD4 artı T hücrelerini barındırır[275]. Bu hücreler, epitel yoluyla dolaşımdan ve BOS yoluyla CNS'den sinyaller alabilir ve beyin homeostazını sürdürmek için entegre bir yanıtı düzenleyebilir [276]. Diğer çeşitli işlevlerin yanı sıra sinapsların ve KBB'nin korunmasına yardımcı olan bir hücre tipi olan astro-sitler, T hücreleri ile birlikte kültürlendiğinde nöroprotektif bir fenotip alır ve nöronal apoptozu azaltır [277]. Omurilik yaralanması sırasında, CNS'ye özgü otoreaktif T hücreleri, yaralanma bölgesine göç eder, kist oluşumunu engeller ve aksonların korunmasına katkıda bulunur [278].
T hücresi eksikliği olan farelerde, progenitör hücrelerin proliferasyonu azalır, bu da daha az sayıda yeni nörona yol açarken, aşırı CNS'ye özgü otoreaktif T hücrelerine sahip transgenik farelerde nörojenez artar [268]. T-hücresinden türetilen sitokin IFNy'nin takviyesi, Alzheimer hastalığı olan yaşlı farelerde nörojenezi artırabilir [279]. CNS'ye özgü T hücreleri, uzaysal öğrenme ve hafıza için de kritik öneme sahiptir. İmmün yetmezliği olan farelerde, uzaysal hafıza bozulur ancak yaşlı farelerde bile bağışıklık hücrelerinin yeniden oluşturulmasıyla restore edilebilir [280]. Motor nöron hastalığı amyotrofik lateral skleroz (ALS) modellerinde, T hücresi eksikliği hastalığı hızlandırırken, yeniden yapılandırma nöroproteksiyonu teşvik eder ve hastalığın ilerlemesini geciktirir [281-283]. Bununla birlikte, not edilmelidir ki, T hücreleri, Parkinson hastalığının fare modellerinde dopaminerjik nöronların ölümüne katkıda bulunur [284].
T hücrelerinin beyin bakımını iyileştirdiği mekanizmalardan biri, beyin kaynaklı nörotrofik faktörün (BDNF) düzenlenmesidir. Tropomiyozin reseptör kinaz B(TrkB) aracılığıyla BDNF sinyalleşmesi, örneğin yetişkin nörojenezinde [285], hafıza oluşumunda geniş kapsamlı roller oynar. , ve geri alma [286,287] ve anti-depresan tedaviler tarafından düzenlenir [288]. BDNF seviyeleri, T hücresi eksikliği olan farelerde daha düşüktür [268]. BDNF, depresif davranış ve farelerin miyelin türevli bir peptit ile bağışıklanması, CNS'ye özgü bağışıklık oluşturulması, BDNF seviyelerinin eski haline getirilmesi, nörojenezin iyileştirilmesi ve depresif davranışın azaltılması ile ilişkilidir [289]. Ayrıca, farelerdeki sağlıklı stres tepkisi, beyindeki T hücresi kaçakçılığı ve BDNF seviyeleri ile ilişkilidir. Stresin neden olduğu endişeli davranış, miyelin türevli bir peptit ile bağışıklama yoluyla da azaltılır [290]. Nöronlar ve mikroglia dışında, T hücrelerinin kendilerinin BDNF salgıladığı gösterilmiştir [291].
Treg'lerin ayrıca koruyucu olduğu ve mikroglial aktivasyonu azaltarak ALS'de hastalık ilerlemesini geciktirdiği gösterilmiştir [292]. Alzheimer hastalığı modellerinde, Treg transplantasyonu bilişsel yetenekleri geliştirir ve amiloid plaklarını azaltır [293]. Ayrıca, daha düşük bir Treg/Th17 oranı, nöronları etkileyen zayıflatıcı bir otoimmün hastalık olan multipl sklerozlu hastalarda daha şiddetli hastalık ile ilişkilidir [294].
Aşırı coşkulu bir bağışıklık tepkisi beyin fonksiyonunu bozacak olsa da, ince ayarlanmış bir T hücresi bağışıklığı, sağlıklı beyin homeostazı ve yaralanmadan iyileşme için açıkça hayati önem taşır. Bu fenomeni hedefleyen herhangi bir müdahale, inflamatuar hasarı önlemek için dikkatli bir şekilde kontrol edilmelidir; bununla birlikte, adaptif bağışıklığın beyin sağlığındaki rolüne ilişkin bilgiler, beyin hasarına veya yaşa bağlı nörodejeneratif hastalıklara karşı yeni yollar açmaktadır.
Mikroglia'da Eğitimli Bağışıklık
Son çalışmalar, doğuştan gelen bağışıklık belleğinin mikroglial hücrelerde indüklenebileceğini düşündürmektedir. Bir çalışma, sistemik LPS uygulamasından sonra en az 6 ay süreyle mikrogliada epigenetik yeniden programlamanın mevcut olduğunu bulmuştur [295]. İlginç bir şekilde, tek bir LPS enjeksiyonu mikroglia'da eğitimli bir fenotipi indüklerken, tekrarlanan LPS enjeksiyonu toleransın indüklenmesine yol açtı. Benzer şekilde, düşük doz TNF uygulamasının da mikroglia eğitimini indüklediği bulundu. Alzheimer hastalığının bir fare modelinde, eğitimli bağışıklık hastalığı şiddetlendirirken, tolerans hafifletti. Yakın tarihli bir çalışma, LPS'nin neden olduğu eğitim bulgusunu doğruladı ve sistemik -glukan uygulamasının mikroglia'da eğitimli bağışıklığı da indükleyebileceğini gösterdi [296]. Bununla birlikte, eğitimli mikroglia fenotipi, hazırlamadan sadece iki gün sonra gözlemlendi ve 7. günde artık mevcut değildi, bu muhtemelen sürekli epigenetik yeniden programlama eksikliğini gösterir. Bu nedenle, farklı dozlar ve farklı enjeksiyon rejimleri ile yapılan antrenmanın gücü ve kalıcılığının araştırılmasında fayda vardır.
Yaşlanan Beyin
Yaşlanmayla birlikte birçok beyin işlevi bozulur, hatta bazıları yaşamın üçüncü on yılından sonra azalmaya başlar [297]. Bozulan işlevler arasında işlem hızı, problem çözme, akıcı akıl yürütme, algısal yetenekler, sözel akıcılık ve çalışma belleği yer alır. Bununla birlikte, bozulmalar mutlaka kronolojik yaşla ilişkili değildir. Daha çok, hasar birikmesi ve bağışıklık sisteminin bu talepleri karşılamak için beyni izleyememesi yoluyla artan bakım talebinin bir sonucudur. Elbette yaşlanma, daha önce tartışılan mekanizmalar aracılığıyla bağışıklık sisteminin hem talebine hem de yetersizliğine katkıda bulunur.
Yaşlı mikroglia, proinflamatuar bir fenotip geliştirir [298]. Bir kafa travması veya enfeksiyonun ardından, sağlıklı bir genç beyne kıyasla daha uzun süre aşırı miktarda proinflamatuar sitokin üretirler[299]. Bu inflamatuar durum, inhibe edilmiş nörogeneze yol açar [300, 301]. Proinflamatuar bir ortam ayrıca BDNF ve aktiviteye bağlı hücre iskeleti ile ilişkili protein gibi uzun süreli hafıza modülatörlerini de inhibe eder ve hafıza disfonksiyonuna neden olur [299]. İnsanlarda dolaşımdaki BDNF seviyeleri yaşla birlikte azalır ve kemirgen modellerinde beyin seviyelerinin düştüğü gösterilmiştir [302], bu da T hücre sayılarında ve işlevinde yaşa bağlı düşüşü yansıtabilir.
Yaşlanma aynı zamanda efektör bellek CD8 artı T hücrelerinin CP'ye ve beyni örten zarlar olan meninkslere artan alımıyla da ilişkilidir [303]. Bu hücrelerin, homeostaz sırasında mikroglial işlevi bozduğu, ancak yaralanma üzerine pro-inflamatuar sitokin üretimini arttırdığı gösterilmiştir. Ayrıca, yaşlı bireylerde Treg sayıları yükselir; bununla birlikte, nörodejenerasyonu kontrol edemedikleri için göç kapasiteleri ve işlevleri muhtemelen bozulmuştur. Örneğin, multipl skleroz hastalarının Treg'leri daha az immünosupresif kapasiteye sahiptir ve beyindeki sklerotik lezyonlarda hayatta kalamazlar [304].
Kronik inflamasyon durumunda, doğuştan gelen bağışıklık hücreleri tipik olarak daha düşük sitokin üretimine yol açan tolerans gösterirken, mikroglia daha inflamatuar bir fenotip sergilemek için hazır hale gelir ve bilişsel gerilemeyi hızlandırır [305]. Ayrıca, yaşlı organizmalarda yüksek seviyelerde dolaşımdaki TNFa gözlenir. yukarıda tartışıldığı gibi mikrogliada eğitimli bağışıklığı indükleyerek de hasara neden olabilir. Bu nedenle, iyi dengelenmiş bir doğuştan gelen bağışıklık, beynin sağlıklı bakımı için adaptif bağışıklık kadar önemlidir.
Her Açıdan Bağışıklık Yaşlanmayla Mücadele
Yaşlanmayı yavaşlatma veya geri döndürme çabaları kıt olmaktan uzaktır. Bununla birlikte, çoğu çalışma tarafından değerlendirilen sonuç ölçütleri, mekanik içgörüler sunmamaları veya belirli süreçlere odaklanmamaları anlamında kısıtlıdır. Yine de, kalori kısıtlaması, metformin ve fiziksel egzersiz dahil olmak üzere bazı heyecan verici müdahaleler, bağışıklık, metabolizma, epigenetik, mikrobiyota ve sinir sistemini kapsayan birçok düzeyde yaşlanmaya müdahale eder (Şekil 2). Aşağıdaki bölümlerde tartışılır
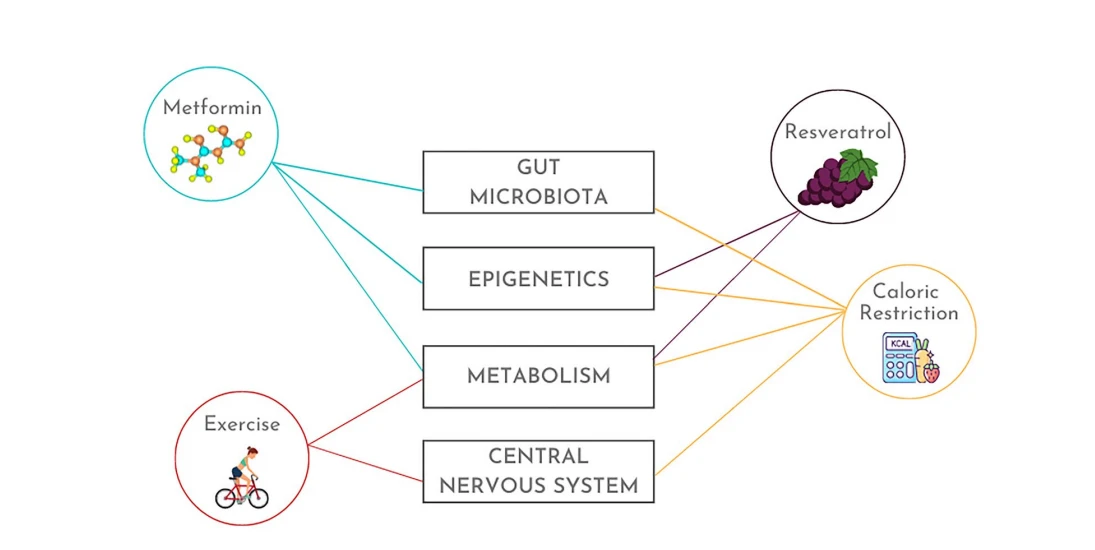
Şekil.2 Yaşlanma sürecinin birçok yönünü hedef alan umut verici yaşlanma karşıtı müdahaleler. Metformin kök hücre yaşlanmasını geciktirir, mitokondriyal fonksiyonu iyileştirir, telomer kısalmasını önler, yaşa bağlı epigenetik değişiklikleri tersine çevirir ve bağırsak sızıntısını ve disbiyozu azaltır. Fiziksel egzersiz, yaşamın sonlarında başlasa bile, bağışıklık hücre sayılarını ve işlevlerini iyileştirir, mitokondriyal metabolizmayı eski haline getirir, hücresel yaşlanmayı önler, bilişsel gerilemeye karşı koyar ve nörodejeneratif hastalık risklerini azaltır. Üzüm ve kırmızı şarapta bulunan resveratrol, bir antioksidan görevi görür, çeşitli model organizmalarda yaşam süresini uzatır, sistemik iltihabı hafifletir ve epigenetik yaşlanmayı yavaşlatır. Yüzde 20-40 kalori kısıtlaması, insan olmayan primatlarda ömrü uzatır ve tüm nedenlere bağlı ölümleri azaltır, epigenetik yaşlanmayı geciktirir, bağırsak mikrobiyotasını eski haline getirir ve bilişsel gerilemeyi yavaşlatır. Bu tedaviler tarafından paylaşılan hücresel mekanizmalar, mTOR/AKT ekseninin sınırlandırılmasını ve AMPK ve SIRT1'in yaşlanma sorununun üstesinden gelmek için farklı şekillerde aktivasyonunu ve en umut verici yaşlanma karşıtı tedavilerin mekanizmalarını detaylandırmayı içerir.
Metabolik Müdahaleler
İnsan evriminin çoğu için besinler kıttı ve bunları elde etmek için çok fazla fiziksel aktivite gerekliydi. Böylece, insanlar bu koşullara uyum sağlamak için gelişti. Aşırı miktarda besin içeren mevcut yerleşik yaşam tarzımızın, obezite, diyabet ve kardiyovasküler hastalık gibi metabolik hastalıkların yüksek prevalansına neden olduğu öne sürülmektedir [306]. Ayrıca, daha önce de belirtildiği gibi, yaş bu durumlar için bir risk faktörüdür ve immüno-yaşlanmanın metabolik hastalık profilleriyle pek çok ortak noktası vardır. Bu nedenle, metabolik müdahalelere odaklanmak, yaşlanma ve metabolik bozukluklarla aynı anda mücadele etmek için mantıklı bir yaklaşımdır. Kalori kısıtlaması (CR) ve egzersiz, bizi atalarımızın koşullarına daha da yaklaştırıyor, bu araştırma hattında başı çekiyor.
CR, toplam kalori alımında yüzde 20-40 azalma anlamına gelir. Mayalardan primat olmayanlara kadar, CR'nin ömrü uzattığı defalarca gösterilmiştir [307]. Rhesus maymunlarında, CR genç yetişkinlikten başlayarak yaşa bağlı nedenlere bağlı ölüm riskini üç kat ve tüm nedenlere bağlı ölüm riskini 1 kat azaltmıştır.{ {6}}kat [308]. Başka bir çalışmada, CR diyabet, kanser ve kardiyovasküler hastalık insidansını azaltırken, hastalığın başlangıcını da geciktirdi [309]. Zıt bir çalışma, kanser ve diyabet insidansı azalmasına rağmen sağkalımda bir iyileşme olmadığını bildirdi [310].
Obez olmayan 218 kişiyle yapılan randomize kontrollü bir çalışmada, 2-yıllık bir CR diyeti, dolaşımdaki TNF düzeylerini düşürdü ve kolesterol ve trigliseritler gibi kardiyometabolik risk belirteçlerini müdahaleyle ilişkili herhangi bir yan etki olmaksızın çarpıcı biçimde azalttı [311]. Şimdiye kadar, CR'nin uzun ömür üzerinde önemli bir etkisi olduğunu bildiren hiçbir insan çalışması yoktur. İnsanlarda CR vaadini sağlamlaştırmak için genetik olarak çeşitli popülasyonlarla büyük ve kapsamlı çalışmalara ihtiyaç vardır.
CR'nin çeşitli metabolik etkileri arasında mTOR'un aşağı regülasyonu ve insülin sinyalizasyonu ve SIRT1'in aktivasyonu yer alır ve bunların tümü bağışıklık hücresi fonksiyonu üzerinde geniş etkileri vardır [312]. CR'nin al yanaklı maymunlarda T hücre yaşlanmasını geciktirdiği gösterilmiştir [313]. Ayrıca, CD4t ve CD8 artı naif T hücre havuzları genişletildi ve timik çıktı ve T hücresi proliferasyonu arttı, ancak CR'den sonra CD8 artı hücreler tarafından IFNy üretimi azaldı. Alınan kalori miktarını azaltmak yaşa bağlı metabolik değişiklikleri tersine çeviriyor ve sağlığı ve ömrü iyileştiriyor gibi görünse de, kemirgenlerde yapılan birkaç çalışmada, yaşlı hayvanlarda influenza A ve Batı Nil virüslerine karşı bozulmuş adaptif yanıt ve artan mortalite rapor edildiğini belirtmek önemlidir. CR'den sonra [314,315]. Bununla birlikte, yakın zamanda yapılan bir fare çalışması, CR'nin M.tuberculosis enfeksiyonuna karşı koruyucu etkilerini ortaya çıkardı. Bu etki, mTOR inhibisyonu ile karakterize edilen, ancak artan glikoliz ve azaltılmış FAO ile karakterize edilen metabolik kayma ile ilişkiliydi.
artan otofaji [316].mTOR inhibitörü rapamisin, CR ile sinerjistik olarak hareket etti ve otofajiyi daha da güçlendirerek M. tuberculosis'in daha etkili inhibisyonuna yol açtı.
CR'ye benzer şekilde, egzersiz immüno-yaşlanmayı engelleme sözü veriyor. Düzenli olarak egzersiz yapan yaşlı kadınlar, aynı yaştaki sedanter kadınlara kıyasla daha iyi NK ve T hücre işlevlerine sahipti [317]. Naif T hücre sayıları ve timik çıktı, fiziksel olarak aktif yaşlılarda, genç yetişkinlere benzer şekilde, sedanter olanlara kıyasla daha yüksekti [318]. Ayrıca T hücresi gelişimi için gerekli olan daha düşük dolaşımdaki IL-6 ve daha yüksek IL-7 vardı. Ancak yaşlanan CD8 artı T hücre sayıları gruplar arasında farklılık göstermedi. 8-haftalık bir eğitim programından sonra, yaşlı yetişkinlerin bağışıklık hücreleri gelişmiş otofaji ve aşağı regüle edilmiş NLRP3 enflamasyonu sergiledi [319]. Egzersiz aynı zamanda iskelet kası hücrelerinde ve bağışıklık hücrelerinde mitofajiyi ve mitokondriyal biyojenezi iyileştirdi ve yaşlanmayla bozulan hücresel metabolik durumu onardı[320].
Yaşam tarzı müdahalelerinin yanı sıra, kimyasal metabolik düzenleyiciler, yaşlanmayı önleyici potansiyelleri için de araştırılmaktadır. Glikoz düşürücü etkisi nedeniyle insanlarda 60 yıldan uzun süredir güvenle kullanılan metformin, çok sayıda mekanizma yoluyla yaşa bağlı ayırıcı özellikleri hafifletir. Bunlar, AMPK aktivasyonunu, mTORCl'nin inhibisyonunu, gelişmiş mitokondriyal biyogenezi, insülin/IGF1 sinyallemesinin aşağı regülasyonunu ve SIRT1'in aktivasyonunu içerir [321]. Ayrıca met-formin, kök hücre yaşlanmasını geciktirir ve telomer kısalmasını azaltır. Genel olarak, yaşlanmanın tüm ayırt edici özelliklerini etkiliyor gibi görünüyor. Şu anda, metforminin yaşlanmayı geciktirme potansiyelini değerlendirmek için 65-79 yaşındaki 3000'den fazla bireyden oluşan büyük bir klinik araştırma planlanmaktadır (https://www.afar.org/tame-trial).
Başka bir mTOR inhibitörü olan Everolimus, yaşlılarda immüno-yaşlanmayı azalttı ve influenza aşılamasına karşı geliştirilmiş antikor yanıtlarını iyileştirdi [322]. Bu çalışmada çoğu bağışıklık hücresi alt kümesi değiştirilmemiş olsa da, bir tükenme belirteci olan programlanmış hücre ölümü proteini 1 (PD-1) için pozitif olan T hücreleri belirgin şekilde azaldı. 264 yaşlı denekle yapılan bir takip çalışması, antiviral ekspresyonun arttığını, influenza aşılamasına verilen yanıtı iyileştirdiğini ve genel olarak daha az enfeksiyon olduğunu bildirdi [323]. SIRT1 aktivasyonu, immün yaşlanma ile mücadele için başka bir yaklaşımdır. B hücresi proliferasyonunu ve fonksiyonunu iyileştirdiği bilinmektedir ve bu nedenle yaşla birlikte azalan antikor yanıtlarını iyileştirmeye yardımcı olabilir [324]. SIRT1, protein ve histon deasetilasyonu yoluyla metabolik yolları modüle edebilir [325]. SIRTl'nin hedefleri arasında NF-KB, hipoksi ile indüklenebilir faktör 1-alfa (HIFla) ve FOXO transkripsiyon faktörleri yer alır. Ayrıca, SIRT1 aktivasyonu, BCG ile indüklenen eğitimli bağışıklık yanıtını güçlendirir [326]. SIRT1-aktivatörleri ile yapılan fare çalışmalarına rağmen, yaşla ilgili gecikmiş fenotipler ve artan yaşam süresi [327, 328], SIRTl'nin insanlarda uzun ömür ile ilişkili olduğunu gösteren hiçbir kanıt yoktur [329].
Kırmızı şarapta bulunan bir polifenol bileşiği olan resveratrol, SIRT1[330]'un güçlü bir aktivatörüdür. Ayrıca AMPK'yi etkinleştirdiği, dolayısıyla mTOR sinyalini bastırdığı gösterilmiştir[331]. Resveratrolün antioksidan ve anti-inflamatuar aktivitesini gösteren in vitro çalışmalar ve inflamatuar hastalık modelleri dışında[332], birkaç fare çalışması antiviral kapasitesini ortaya koymaktadır[333,334]. sağlıklı fareler [327,335]. Bununla birlikte, yüksek kalorili bir diyetle beslenen farelerde, resveratrol, transkripsiyonel profili standart beslenen farelerinkine doğru kaydırdı [336]. Ayrıca insülin duyarlılığını iyileştirdi ve sağkalımı artırdı. Yüksek yağlı, yüksek şekerli bir diyetle beslenen rhesus maymunlarında da benzer sonuçlar gözlendi [337]. Obez erkeklerin resveratrol ile otuz günlük takviyesi, AMPK-SIRT1 ekseni boyunca metabolik değişikliklere neden oldu ve sistemik inflamasyon, glikoz ve trigliserit seviyelerini azalttı [338]. Bununla birlikte, benzer bir çalışma resveratrolün herhangi bir yararlı etkisini bildirmedi [339].
Genel olarak, immüno-yaşlanma ve yaşa bağlı metabolik hastalıkların altında yatan metabolik yolları hedefleyen oldukça umut verici terapötik yaklaşımlar vardır. Bununla birlikte, insan olmayan primatlarda ve daha küçük model organizmalarda yapılan bu heyecan verici gözlemlerin insan kullanımı için çevrilebilir olup olmadığını görmek için insanlarda büyük ölçekli randomize kontrol denemelerine ihtiyaç vardır.
Epigenetiği Modüle Eden Stratejiler
Epigenetik müdahaleler, örneğin kanser, diyabet ve Alzheimer hastalığı gibi yaşa bağlı çeşitli hastalıklar için kullanılmıştır; bununla birlikte, epigenetik yapıdaki yaşa bağlı değişiklikleri spesifik olarak hedefleyen sadece birkaç çalışma vardır[340]. Bunun yerine, immünojeni durdurmak için kullanılan metabolik müdahaleler, yaşa bağlı epigenetik manzarayı değiştirerek de çalışır. Resveratrol, CR ve metformin, yaşlılarda yaşa bağlı DNA metilasyonunu ve histon modifikasyonlarını yeniden yapılandırmak için umut verici üç tedavi seçeneğidir.
İlgi çekici bir çalışma, timusun yenilenmesinin 2.5-yıl daha genç bir epigenetik yaş [341] ile sonuçlandığını ortaya koydu. 51 ile 65 yaş arasındaki katılımcılar, rekombinant insan büyüme hormonu, bir steroid hormon öncüsü olan dehidroepiandrosteron (DHEA) ve metformin ile 1-yıllık bir tedavi aldı. Tedavi, restore edilmiş fonksiyonel timik kütleye, bağışıklık hücresi alt gruplarındaki değişikliklere ve sitokin üretiminin yanı sıra daha genç yaşla ilişkili olarak değişen epigenetik profillere yol açtı.
Yüzde 40 kalori kısıtlamasına maruz kalan Rhesus maymunları, yaşlı maymunlarda bulunan metilasyon değişikliklerini göstermekte geç kaldılar [342]. Bu çalışma, gecikmiş metilasyon kayması ile ilişkili daha uzun bir ömrün doğrudan kanıtını sağlamasa da, yaşlanma sürecini yavaşlatmak için CR'nin kullanılabileceğini öne sürüyor. Buna paralel olarak, resveratrol veya CR ile farelerin yaşam sürelerinin iyileştirilmesi, daha yavaş epigenetik yaşlanma ile sonuçlanmıştır [343]. Yaşam boyu CR'nin beyinde yaşa bağlı DNA metilasyon değişikliklerini önleyerek nöroproteksiyon sağladığı da gösterilmiştir [344].
Birkaç çalışma, CR'nin epigenetiği nasıl etkileyebileceğini açıklıyor. Bu mekanizmalar, artan SIRTI ekspresyonunun aracılık ettiği azalmış histon asetilasyonunu, daha yüksek DNA metiltransferaz (DNMT) aktivitesini ve Ras [340] gibi spesifik düzenleyici genlerin hipermetilasyonunu içerir. Benzer şekilde, metformin, SIRT1'i aktive ederek ve HDAC'leri inhibe ederek epigenetik işaretler üzerinde etki eder[345]. Bildiğimiz kadarıyla, muhtemelen bu tür uzun vadeli müdahalelerin insanlar üzerinde uygulanmasının sınırlamaları nedeniyle, CR'nin yaşlanmaya bağlı epigenetik değişiklikler üzerindeki etkilerini araştıran hiçbir araştırma yoktur.
Mikrobiyotayı Hedefleyen Potansiyel Tedaviler
Bağırsak mikrobiyotası konak metabolizmasını düzenlediğinden, metabolizmayı hedefleyen yaşlanma karşıtı müdahaleler kaçınılmaz olarak bağırsak mikrobiyotasını etkiler. Örnek olarak, metformin metabolik yollar üzerinde etkili olmasının yanı sıra bağırsak mikrobiyotasını modüle eder. Obez ve yaşlı farelerde metforminin etkilerini araştıran bir çalışma, bağırsak mikroplarındaki değişikliklerle ilişkili olan epididimal yağda IL-1 ve IL-6'de bir azalma buldu [346]. Ayrıca, metformin alan tip 2 diyabet hastalarının bağırsaklarında daha fazla Akkermansia bolluğu vardı [347], bu da daha düşük bakteri translokasyonu ve disbiyoz riski ile ilişkiliydi [348]. Bunlarla paralel olarak metformin, yaşa bağlı sızdıran bağırsak ve farelerde iltihaplanma [349].
Mikrobiyotayı hedefleyerek immünojeni durdurmak için başka bir tedavi stratejisi, pro ve prebiyotiklerin kullanılmasıdır. Probiyotikler, canlı mikroorganizmalar içeren takviyeler iken prebiyotikler, mikroorganizmaların yaşamak için kullanabileceği substratlardır [350]. Çelişkili kanıtlar olmasına rağmen, çalışmalar düzenli probiyotik kullanımının bağırsak mikroplarının çeşitliliğini ve bolluğunu düzenleyerek disbiyoz insidansını azaltabileceğini öne sürüyor [351,352]. Probiyotikler, artan B ve T hücre sayılarından, artmış NK hücre aktivitesinden [353] ve yaşlı bireylerde influenza virüsüne karşı daha yüksek IgA üretiminden [354] belirgin olarak iyileştirilmiş bağışıklık tepkileri ile ilişkilidir. Ayrıca, probiyotiklerle takviye, yaşlılar arasında fırsatçı bakteri Clostridium dif-file'nin büyümesini azaltmaya yardımcı oldu[355]. Bu bulguların aksine, 10 randomize kontrollü çalışmanın meta-analizi, probiyotiklerin inflamatuar sitokin üretimini azaltmada yararlı bir etkisi olmadığını gösterdi [356].
Probiyotiklerin prebiyotiklerle yani sinbiyotiklerle kombinasyonu da probiyotik takviyesi gibi faydalı etkilere sahiptir. Yaşlı bireylerde sinbiyotik formüle sahip iki aylık tedavi, dolaşımdaki metabolik sendrom parametrelerini önemli ölçüde iyileştirdi ve TNF ve C-reaktif protein gibi inflamatuar proteinleri azalttı [357]. Çift kör 4-haftalık bir simbiyotik tedavi çalışması, tedavi grubunda plaseboya kıyasla Bifidobacteria, Actinobacteria, Firmicutes ve metabolit butiratta bir artış bildirirken, Proteobacteria ve proinflamatuar sitokinler daha düşüktü [358].
Kalori kısıtlaması, yaşlılarda bilişsel işlevleri, metabolik parametreleri ve bağırsak mikrobiyotasını iyileştirmek için başka bir tedavi stratejisi olabilir. CR, Alzheimer hastalığının bir fare modelinde, bağırsaklarda artan Bacteroides ile ilişkili bilişsel düşüşü yavaşlattı. 2 ay boyunca yüzde 30 daha az kalori alan yaşlı fareler, mikrobiyotalarında genç farelerinkine benzer daha dengeli bir bileşime doğru önemli kaymalar gösterdi [359]. Yaşam boyu CR, mikrobiyotada daha kapsamlı değişikliklere neden oldu, enflamatuar peptitlerin konsantrasyonunu azalttı ve farelerin ömrünü artırdı [360]. Bununla birlikte, yakın tarihli bir çalışma, yüzde 50'den fazla şiddetli CR'nin mikrobiyota çeşitliliğini bozduğunu ve patojenik bakteri C. difficile'nin büyümesine yol açtığını ortaya koydu [361]. Bu nedenle, CR'nin kapsamını ve süresini dikkatlice belirlemek çok önemlidir.
Beyin Yaşlanmasına Yönelik Müdahaleler
Fiziksel egzersiz, beyin sağlığını geliştirmenin mükemmel bir yoludur. Egzersiz bilişsel bozulmayı önler, bunama riskini azaltır, uzamsal belleği geliştirir ve nöroplastisiteyi geliştirir [362]. Fiziksel aktivite, hafıza bozukluğu için risk alellerinin etkilerini azaltabilir [363] ve Alzheimer hastalığının gelişimine karşı koruyabilir [364,365]. Toplam 163.797 katılımcıyla yapılan 16 çalışmanın sistematik bir incelemesi, düzenli egzersizin demans ve Alzheimer'da sırasıyla yüzde 28 ve yüzde 45 risk azalmasına yol açtığını bildirdi [366]. Dikkat çekici bir şekilde, egzersizle ilişkili risk azalması, egzersizin sıklığı ve yoğunluğundan bağımsız olarak bireysel çalışmaların çoğunda gözlemlenmiştir.
Çalışmalar, nöroproteksiyonun arkasındaki potansiyel mekanizmalar olarak egzersizin antioksidan ve antiinflamatuar etkilerini öne sürmektedir [367,368]. Egzersizin anti-inflamatuar sonuçları arasında dolaşımdaki azalmış IL-6 ancak artmış IL-10 ve IL-1RA, daha düşük sayıda Treg, dolaşımda daha yüksek sayıda inflamatuar monosit ve inhibe edilmiş monosit işlevi bulunur [ 369]. Bunların yanı sıra, fiziksel egzersiz azalmış yaşlanan T hücreleri, artmış NK hücre sitotoksisitesi ve nötrofil fagositozu ve lökositlerde daha uzun telomerler ile ilişkilidir [370]. Ek olarak, orta düzeyde kardiyovasküler egzersiz, yaşlılarda influenza aşılamasından sonra seroproteksiyonu iyileştirmiştir [371]. İmmün yaşlanmayı yavaşlatmak, gelişmiş bağışıklık gözetimi ve CNS onarımı yoluyla beyin yaşlanmasını ve bilişsel gerilemeyi sınırlayacaktır.
Ayrıca, tek bir egzersiz seansı bile, düzenli egzersizle daha da güçlendirilen BDNF düzeylerini artırır [372]. İlginç bir şekilde, BDNF'deki egzersize bağlı artış, erkeklerde kadınlara göre daha belirgindir. Keton cisimlerinin ayrıca BDNF ekspresyonunu [373,374] indüklediği ve muhtemelen ketojenik diyetlerin nörolojik hastalıklarda nöroprotektif etkisine katkıda bulunduğu gösterilmiştir [375].
CR, nöronal hasarı önlemek için gösterilen başka bir müdahaledir. Artmış BDNF ekspresyonuna ve gelişmiş nörogeneze yol açar [376], glikolizden keton cisimlerinin kullanımına enerjik bir kaymaya neden olur, beyaz cevher bütünlüğünü korur ve farelerde uzun süreli belleği geliştirir[377]. Sıçanlarda, alternatif bir günlük CR rejimi, kimyasal olarak indüklenen hasara karşı nöronal direnci arttırır [378]. CR kaynaklı nöroproteksiyonun bir mekanizması muhtemelen beyindeki oksidatif stresin baskılanmasından kaynaklanmaktadır [379,380]. Bununla birlikte, kalori alımında yüzde 50'lik bir azalma ile şiddetli CR'nin sıçanlarda depresif davranışa neden olduğu bildirildi [381]. Alzheimer hastalığının fare modellerinde, CR, muhtemelen SIRT1 aktivasyonunu içeren bir mekanizma yoluyla amiloid plak birikimini sınırlayabilir[382,383]. [384].
Kemirgenlerdeki tüm olumlu sonuçlara rağmen, insan olmayan primatlarda CR'nin nöroprotektif etkileri çok net değildir, bununla birlikte geniş insan çalışmaları eksiktir [385]. Bununla birlikte, insanlarla yapılan küçük, randomize kontrollü bir deneme, bilişsel işlevde önemli bir gelişme ile sonuçlanmadı [386]. Yaşlı yetişkinler üzerinde yapılan bir başka klinik çalışma, 3 aylık CR'den sonra iyileştirilmiş hafıza skorları gösterdi [387]. 3-aylık CR diyeti uygulanan obez kadınlarda hipokampusta daha yüksek fonksiyonel bağlantı ile birlikte gelişmiş hafıza bildirilmiştir [388]. Nöroprotektif etkilerin kapsamını anlamak için CR ile daha kapsamlı insan çalışmaları gereklidir.
İlginç bir şekilde, yakın zamanda BCG aşısının, BCG immünoterapisi ile tedavi edilen mesane kanseri hastalarında, tedavi edilmeyen hastalara kıyasla Alzheimer ve Parkinson hastalıkları riskini azalttığı gösterilmiştir [389,390]. Mesane kanseri tedavisinde BCG, olağan intradermal uygulama yolu yerine doğrudan mesaneye uygulanır. Heyecan verici gelecek araştırma projeleri, intradermal BCG'nin nörodejeneratif hastalıklar üzerindeki etkilerini değerlendirmek ve eğitimli bağışıklığın nöroprotektif etkilerde bir rol oynayıp oynamadığını bulmak için altta yatan mekanizmaları araştırmak olacaktır. Şu anda, geç başlangıçlı Alzheimer hastalarında (NCT04449926) intradermal BCG enjeksiyonlarının kullanıldığı bir klinik deney yürütülmektedir.
Son sözler
Biyolojik yaşlanma, organizmanın tüm sistemlerini içeren karmaşık bir süreçtir. Bağışıklık sistemi bunun tam merkezindedir ve diğerleriyle etkileşim içindedir. Yaşlanan bağışıklık sistemi, diğerlerinin yanı sıra, yaşlıların enfeksiyonlara ve yaşa bağlı metabolik ve nörodejeneratif hastalıklara karşı yüksek duyarlılığının suçlusudur. Bu nedenle, doğuştan gelen ve adaptif immünolojik yanıtların iyileştirilmesi, enfeksiyona bağlı morbidite ve mortaliteyi azaltmak ve yaşlı bireylerde aşı yanıtını artırmak için son derece önemlidir. Burada ayrıca, metabolik düzenlemede ve sağlıklı bir merkezi sinir sisteminin korunmasında bağışıklık belleğinin yeni rollerine işaret eden geniş bir araştırma bütünü sunduk. Merkezi bir düğüm olarak bağışıklık ile yaşlanmaya tüm açılardan yaklaşmak ve yaşlanmadan her yerde ve her yerde etkilenen ortak mekanizmaları hedef alan yaşlanma karşıtı müdahaleler tasarlamak, daha fazla araştırma yapmak için mantıklı bir yoldur. Metformin ve resveratrol gibi farmakolojik ajanların yanı sıra kalori kısıtlaması ve fiziksel egzersiz gibi davranışsal müdahaleler, yaşlanmanın birçok yönünü düzenleyebilir ve hayvan modellerinde ve insanlarda umut verici sonuçlar vermiştir. Sağlıklı bağırsaklar, işlevsel beyinler ve ciddi enfeksiyonlardan arınmış uzun bir yaşam sürmeye çalışan insanlar için kapsamlı bir strateji gereklidir.
beyannameler
Çıkar Çatışması Yazarlar rakip çıkar beyan etmemektedir.
Açık Erişim Bu makale Creative Commons Attribution 4.0 Uluslararası Lisansı ile lisanslanmıştır ve orijinal yazara uygun şekilde atıfta bulunduğunuz sürece herhangi bir ortamda veya biçimde kullanım, paylaşım, uyarlama, dağıtım ve çoğaltmaya izin verir. (ler) ve kaynak, Creative Commons lisansına bir bağlantı sağlayın ve değişiklik yapılıp yapılmadığını belirtin. Bu makaledeki resimler veya diğer üçüncü şahıs materyalleri, materyalin kredi limitinde aksi belirtilmedikçe makalenin Creative Commons lisansına dahildir. Materyal, makalenin Creative Commons lisansına dahil değilse ve kullanım amacınız yasal düzenlemeler tarafından izin verilmiyorsa veya izin verilen kullanımı aşarsa, doğrudan telif hakkı sahibinden izin almanız gerekir. Bu lisansın bir kopyasını görüntülemek için http://creativecommons.org/licenses/by/4.0/ adresini ziyaret edin.
Bu makale, Clinical Reviews in Allergy & Immunology'den alınmıştır https://doi.org/10.1007/s12016-021-08905-x


