

Blumea Laciniata'dan Elde Edilen Polifenoller, İnsülin Sinyal Yolu Yoluyla Caenorhabditis Elegans'ta Ömrü Uzattı ve Strese Karşı Direnci Artırdı
Jul 11, 2022
Lütfen iletişime geçinoscar.xiao@wecistanche.comdaha fazla bilgi için
Soyut: Blumea laciniata Asya'da bir halk ilacı olarak yaygın olarak kullanılmaktadır, ancak bununla ilgili literatür nadiren bildirilmektedir. B. laciniata'dan (EBL) elde edilen polifenol özütünün (klorojenik asit, rutin ve luteolin-4-O-glukozit içeren) in vitro olarak güçlü antioksidan yetenek gösterdiğini doğruladık. Bu nedenle, bu çalışmada EBL'nin antioksidan ve yaşlanma karşıtı özelliklerini in vivo olarak daha fazla araştırmak için Caenorhabditis elegans uyguladık. Sonuçlar, EBL'nin C.elegans'ın termal stres altında hayatta kalma süresini yüzde 12,62 artırdığını ve reaktif oksijen türlerinin yanı sıra malonaldehit içeriğini keskin bir şekilde azalttığını gösterdi. Ayrıca EBL, katalaz ve süperoksit dismutaz gibi antioksidan enzimlerin aktivitelerini arttırdı. Ek olarak, EBL çekirdeğe bir transkripsiyon faktörü olan DAF-16'ı destekledi. Ayrıca yaşlanma karşıtı etki göstererek C.elegans'ın ömrünü yüzde 17,39 uzatmıştır. Farklı mutantlar, insülin/IGF-1 sinyal yolunun, EBL'nin C. elegans üzerindeki antioksidan ve yaşlanma karşıtı etkisine katıldığını gösterdi.
Daha fazla bilgi için lütfen buraya tıklayın
anahtar kelimeler: Blumea laciniata; antioksidan yeteneği; yaşlanma karşıtı etki; Caenorhabditis elegans
1. Giriş
Yaşlanma ve gençliğin peşinde koşma, bilimsel topluluklardan her zaman geniş bir ilgi uyandırmıştır [1,2. Metabolizma sürecinde, enzimatik veya enzimatik olmayan reaksiyonlara katılmak için özel bir durumda eşleşmemiş elektronlar içeren reaktif oksijen türleri (ROS) gibi serbest radikaller üretilir [3,4]. ROS, sinyal iletiminde ve farklı metabolizma türlerinin sürecinde hayati bir rol oynar. Normalde, ROS'un oluşumu ve ortadan kaldırılması arasında hassas bir denge vardır. Ancak bu denge dış uyaranlarla kolayca bozulur. Denge bozulduğunda artan ROS sayısı daha fazla oksidatif stres reaksiyonlarına neden olacaktır; daha sonra, daha fazla ROS, DNA, proteinler ve lipitler gibi biyomakromoleküllere saldırır, böylece hücresel yapıya ve fonksiyona zarar vererek hücre fonksiyonunun kaybına, gen mutasyonuna, yaşlanmaya, hastalıklara ve hatta hücre ölümüne yol açar [5]. Örneğin, çok yüksek bir ROS seviyesi sağlıklı beyne zarar verir ve Alzheimer hastalığının semptomlarını hızlandırır [6]. Bu arada, hücrelerin içinde daha fazla ROS yaşlanmaya yol açacaktır []. Bazı teoriler, antioksidanların organizmaların oksidatif strese karşı savunmak için antioksidan yeteneğini artırabileceğine ve bazı yönlerden yaşlanmayı yavaşlatabileceğine işaret etmiştir [8-11. Bu nedenle oksidasyonu azaltmak için uygun antioksidanların bulunması istenmektedir. Bu nedenle, ana türün tarihi boyunca yaşlanmayı geciktirmek için her zaman doğal antioksidanlar aranmıştır[11]. Doğal bitkilerden elde edilen polifenoller, her zaman umut verici antioksidanlar bulmak için bir araştırma alanıdır, çünkü polifenoller, ya bir diyetin parçası olarak ya da ayrı bileşikler (takviyeler gibi) olarak sağlıklı yaşlanma için potansiyel bir iyileştirici araç olarak kabul edilir [12].
Şu anda, Caenorhabditis elegans, nematodun tüm genomu dizilendiğinden ve insan genleri ile homoloji yüzde 40'tan fazlaya ulaştığından, doğal antioksidan ilaçları taramak için umut verici bir model organizmadır [13-15]. C.elegans günümüzde potansiyel antioksidan yeteneği ve özellikle yaşlanma karşıtı etkisi nedeniyle umut verici bitkisel ilaçları araştırmak için uygulanmaktadır [8,16]. Yaban mersinden elde edilen fenolik bakımından zengin özün, C.elegans'ın ısı, ultraviyole-B radyasyonu ve parakuat gibi streslere karşı direncini arttırdığı kanıtlanmıştır; dahası, C.elegans'ın ömrünü yüzde 22.2~44.4 oranında uzattı [17]. Caesalpinia Mimosoideae'nin yapraklarından elde edilen fenolik ekstrakt, oksidatif stres direncini arttırdı ve DAF-16/FOXO yolu [18] yoluyla Caenorhabditis elegans'ın ömrünü uzattı.cistanche แ แ ม เว ย์Zeytin polifenolleri, C. elegans'ın sağlık süresini arttırdı ve doğal bir polifenol bileşiği olan kateşin asidi, Caenorhabditis elegans'ın ömrünü mitofaj yollarıyla uzattı. [19,20]. Vitaminler ve polifenoller (özellikle resveratrol, antosiyaninler, flavanonlar ve izoflavonlar) gibi bitki bazlı metabolitler gibi diyetsel antioksidanlar, hücrelerde ROS oluşumunu azaltarak yaşlanmayı yavaşlatır ve böylece canlı organizmaların ömrünü uzatır [21].
Cistanche yaşlanmayı geciktirebilir
Blumea laciniata, Asya'da yaygın olarak kullanılan bir bitkisel halk ilacıdır. Önceki çalışmamızda, B. laciniata'nın antioksidan kapasitesi, polifenollerin içeriği ile bağlantılı olarak ilişkilendirildi. Ek olarak, B.laciniata'dan (EBL) elde edilen polifenol özü, serbest radikalleri mükemmel bir şekilde temizledi ve HeLa hücrelerini H2O2 tarafından indüklenen oksidatif strese karşı koruyarak in vitro güçlü antioksidan yetenek gösterdi [22]. EBL in vitro olarak güçlü antioksidan yeteneği gösterse de, iç ortam karmaşıktır ve EBL'nin hala mükemmel bir antioksidan kapasite gösterip göstermediği bilinmemektedir. Bu nedenle, bu mevcut çalışmada, EBL'nin antioksidan potansiyelini ve yaşlanma karşıtı etkisini in vivo olarak daha fazla değerlendirmek için C.elegans'ı uyguladık.
2. Malzemeler ve Yöntemler
2.1. Malzemeler ve Kimyasallar
Blumea laciniata, Çin'in Sichuan Eyaleti, Zigong'dan 29 derece 18'41"K, 104 derece 47'31" E'de elde edildi. Bitki, Sichuan Tarım Üniversitesi Yaşam Bilimleri Fakültesi Botanik Bölümü'nden profesör Chao Hu tarafından tanımlandı. . Bütün bitki 3 kez distile su ile yıkandı ve 45 derecede 4 gün kurutuldu. Daha sonra, yeraltı kısmı da dahil olmak üzere bütün bitki, ince bir toz haline getirildi.
Pepton, tripton ve maya özütü, OXOID Co., Ltd.'den (Besting Stoke, UK) satın alındı.ne kadar cistanche alınırEtanol, sodyum klorür, magnezyum sülfat, kalsiyum klorür ve diğerleri, Chengdu Kelong Chemistry Co., Ltd.'den (Chengdu, Çin) elde edildi. Reaktif oksijen türleri (ROS) kiti, süperoksit dismutaz kiti (SOD), katalaz kiti (CAT), malonaldehit kiti (MDA) ve toplam antioksidan kapasite kiti (T-AOC) Nanjing Jiancheng Biyomühendislik Enstitüsü'nden (Nanjing, Çin).
2.2.Blumea laciniata'dan (EBL) Polifenol Ekstraktının Hazırlanması
Blumea laciniata tozu, ultrason yardımıyla 40 derecede 45 dakika boyunca yüzde 80 etanol ile karıştırıldı. Daha sonra çözelti döner buharlaştırma ile konsantre edildi ve Blumea laciniata'dan (EBL) polifenol özü elde etmek için liyofilize edildi. EBL'deki polifenol içeriği yüzde 45~48 idi ve kimyasal bileşimler, önceki çalışmamızda gösterildiği gibi yüksek performanslı sıvı kromatografisi ile değerlendirildi [22]. Beş fenolik bileşen, klorojenik asit, izoorientin, rutin, luteolin-4-O-glukozit ve sinnamik asit olarak tanımlandı.
2.3. C. Orleans Suşları ve Bakımı
Yabani tip Bristol N2, transgenik nematod türleri ve Escherichia coli OP50, Caenorhabditis Genetik Merkezi tarafından nazikçe sağlandı. Bu çalışmada uygulanan transgenik solucanlar TJ356 daf-16:GFP(zls356), CF1038 daf-16(mu86)I., CB1370 daf-2(e1370)III ., TJ1052 yaş-1(hx546)II., VC204, -2(ok393)X., VC345 sgk-1(ok538)X., ve EU1 dış görünüm-1( Tüm nematodlar, 20 derecede gıda olarak OP50 tabakası olan bir nematod büyüme ortamı (NGM) plakası üzerinde tutuldu EBL, dimetil sülfoksit (DMSO) içinde çözüldü ve sıvı sırasında ortam 50 derece olduğunda bir NGM plakasına döküldü. aşama(son DMSO konsantrasyonu yüzde 0.1'den azdı) Termal stres için pozitif kontrol, 10 ug/mL'lik bir konsantrasyonda askorbik asit(Vc) idi.
2.4. Gıda Gümrükleme Testi
Gıda temizleme testi önceki çalışmaya göre yapıldı [23]. Senkronize solucanlar, sodyum hipoklorit yöntemiyle elde edildi [24]. L4 larvaları, EBL ve 5-florourasil (35 mM) içeren bir 96-kuyu plakasına yerleştirildi. Plakanın absorbansı her gün 600 nm'de okundu.

2.5. Doğurganlık Testi
Hamile solucanlar, yumurtlamaları için 2 saat nematod yetiştirme ortamına (NGM) yerleştirildi ve Ll solucanları elde etmek için 20 derecede inkübe edildi. Daha sonra solucanlar, EBL'nin varlığı veya yokluğu ile yeni bir plakaya aktarıldı. Solucanlar yumurtlamaya başladığında, solucanlar yumurtlamayı bırakana kadar solucanlar yeni bir NGM plakasına konuldu. Ayrıca yumurtalar 20 derecede 24 saat inkübe edilmiştir. Daha sonra yumurtadan çıkan solucanlar kaydedildi. Her konsantrasyon için on solucan kullanıldı.
2.6.Termal Stres Testi
Senkronize L1 solucanları, 48 saatlik tedavi için plakaya yerleştirildi. Daha sonra solucanlar 5 saatlik maruz kalma için 35 dereceye kaydırıldı. Daha sonra solucanlar 24 saat boyunca 20 derecede yerleştirildi ve canlı solucanlar sayıldı. Her bağımsız deney için otuz solucan kullanıldı.
2.7.Ömür Değerlendirmesi
Senkronize L1 solucanları, 20 derecede EBL içeren veya içermeyen bir NGM plakasına yerleştirildi. Rehin verme süresi boyunca, solucanlar her gün yeni bir plakaya aktarıldı (plaka başına 60 solucan). Solucanlar yumurtlamayı bıraktığında, nematodlar iki günde bir yeni bir NGM'ye aktarıldı. Ölü solucanların sayısı sayıldı ve yaşayan solucanlar gözlemlendi.
2.8. ROS Düzeyinin Değerlendirilmesi
Senkronize L1 solucanları, 48 saat boyunca 20 derecede EBL içeren veya içermeyen bir NGM plakasına yerleştirildi. Daha sonra, stres koşulları için solucanlar, 1.5 saat boyunca 35°C'ye yerleştirildi; normal koşullar için solucanlar, 1.5 saat boyunca 20 derecede yerleştirildi. Daha sonra solucanlar toplandı ve OP50'yi çıkarmak için 5 kez K ortamı ile yıkandı. Üreticinin talimatlarına göre C.elegans'ta ROS'u boyamak için bir roket kullanıldı. ROS'un floresan yoğunluğu, 488 nm'lik uyarma dalga boyunda ve 525 nm'lik emisyon dalga boyunda okunmuştur. Ayrıca solucanlar, bir floresan mikroskobu (OLYMPUS BX53) altında ROS seviyesini gözlemlemek için bir cam slayt üzerine yerleştirildi.
2.9.Antioksidan Enzimlerin Aktivitelerinin ve MDA İçeriğinin Değerlendirilmesi
Senkronize L1 solucanları, 20 derece C'de 48 saat boyunca EBL'li ve EBL'siz bir NGM plakasına yerleştirildi. Ardından, termal stres için solucanlar, 1.5 saat boyunca 35 dereceye kaydırıldı; normal koşullar için solucanlar, 1.5 saat boyunca 20°C'ye yerleştirildi. Ardından solucanlar, OP50'yi çıkarmak için 5 kez bir K ortamı ile yıkandı. Ek olarak, tüm solucanlar -80 derecede 10 dakika donduruldu ve ardından ezildi. Daha sonra süpernatan, protein solüsyonunu elde etmek için 12,000×g rpm/dk'da 10 dakika santrifüjlendi. Çözelti, sonraki testler için yeni bir tüpe eklendi.cistanche nedirProtein içeriği önceki yöntemle belirlendi [25] ve CAT, SOD ve T-AOC aktiviteleri ile MDA içeriği kit talimatlarına göre ölçüldü.
2.10.DAF-16 Transkripsiyon Faktörünün Görselleştirilmesi
Transgenik soy TJ356, DAF-16 transkripsiyon faktörü üzerinde bir GFP taşıdı, böylece C.elegans'taki lokalizasyonu gözlemlemeyi kolaylaştırdı. Senkronize L1 larvaları, 48 saat boyunca EBL'ye maruz bırakıldı; solucanlar, sodyum azid (35 mM) ile anesteziye tabi tutuldu ve DAF-16 transkripsiyon faktörünün lokalizasyonu, bir floresan mikroskobu (OLYMPUS BX53) altında gözlemlendi. Her bağımsız deneyde 10 solucan vardı.
2.11.İstatistikler
Bu çalışmada elde edilen tüm veriler GraphPad Prism 8.0 kullanılarak analiz edildi. Ömür eğrilerinin karşılaştırmaları log-rank testleri ile yapılmıştır. Nicel verilerin analizleri tek yönlü ANOVA ile değerlendirildi. Ek olarak, ortalama değerlerdeki istatistiksel farklılıkları değerlendirmek için eşleştirilmemiş, iki kuyruklu bir t testi yapıldı. Tüm veriler ortalama ± SD olarak gösterildi. p<0.05 was="" considered="" to="" be="">
3. Sonuçlar
3.1.EBL C. elegans'ta Toksisite Yok Gösterdi
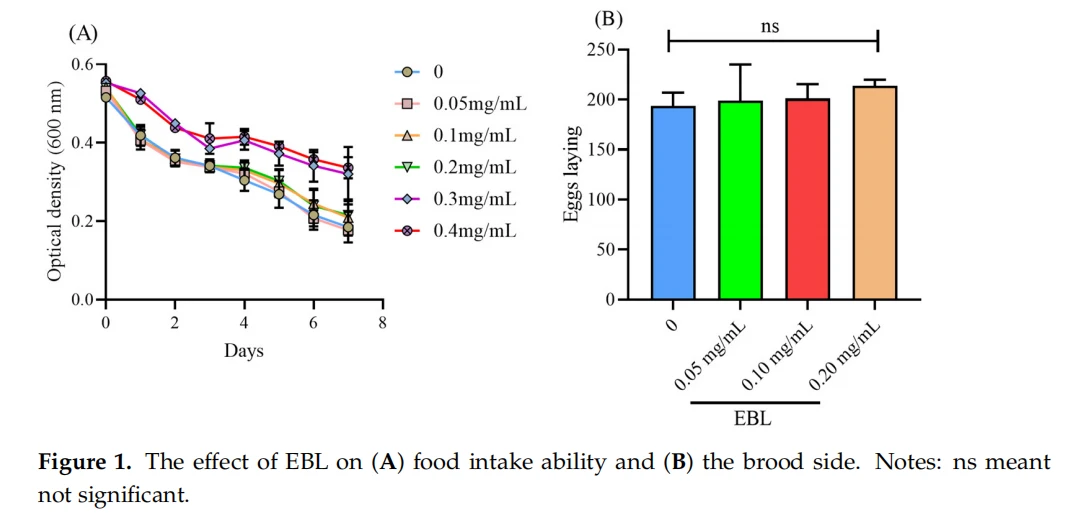
A high concentration of drugs may have negative effects on C.elegans. Therefore, a suitable concentration of EBL to use on C.elegans shall be determined. As shown in Figure 1A,0.3 and 0.4mg/mL of EBL slowed down food intake ability, while 0-0.2 mg/mL showed no evident impact on C. elegans. Hence, three concentrations(0.05, 0.10, and 0.20 mg/mL)were adopted to evaluate the effect on reproduction ability. As shown in Figure 1B, the worms in the blank group laid 193.6± 13.46 eggs. Additionally, after treatment with EBL, the numbers of laid eggs were 198.9±36.20,201.2±14.39, and 213.8±6.150, respectively, showing no significant difference compared with the blank group (p>{{0}}.05). Bu vesileyle, sonraki testler için 0.05, 0.1 ve 0.2 mg/mL EBL seçilmiştir.
3.2. EBL, C.elegans'ın Termal Stres Altında Hayatta Kalmasını Artırdı
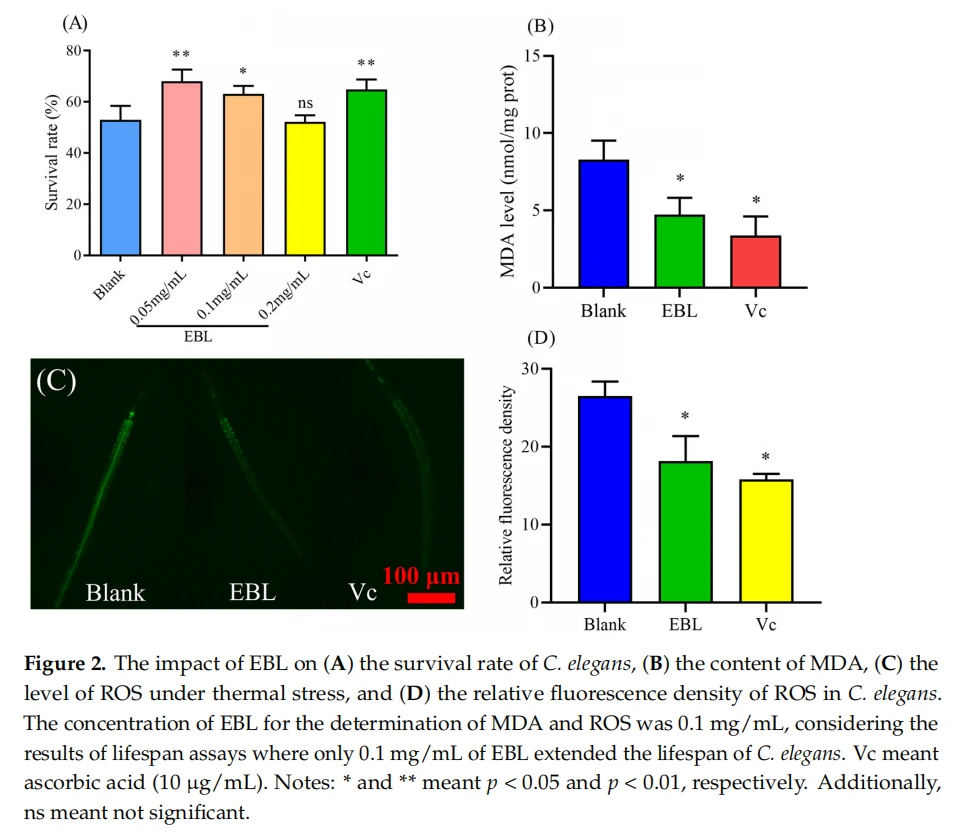
Normally, C. elegans lives at 20 °C. When the worms were shifted to a higher temperature they were stressed, the level of ROS will increase, and the survival of C.elegans under thermal stress will decrease [26]. As shown in Figure 2A, the survival in the blank group was 52.94±5.48%, and with 48 h of treatment of 0.05 and 0.1 mg/mL of EBL, the survival rates were significantly enhanced by 17.63%and 12.62%, respectively. However, 0.2 mg/ml of EBL failed to prolong survival (p>{{0}}.05). Bu nedenle, 0,05 ve 0,1 mg/mL EBL, C.elegans'ın termal strese karşı direncini arttırdı ve bariz koruma gösterdi.
3.3.EBL Termal Stres Altında C.elegans'ta ROS ve MDA İçeriğini Azalttı
Stres direnci ile antioksidan yetenek arasında yakın bir ilişki vardır [27]. Termal stres altında, artan ROS seviyesi, DNA ve proteinler gibi hücrelerdeki biyomakromoleküllere saldıracaktır [28]. Doğal bitki özü daha sonra C. elegans'taki antioksidan savunma sistemini güçlendirir, böylece ROS'u ortadan kaldırır ve C.elegans'ın termal stres ve oksidatif stres gibi streslere karşı direncini artırır [29,30]. Böylece C.elegans'ta EBL'nin ROS düzeyine etkisini belirledik. Şekil 2C'de gösterildiği gibi, farklı gruplarda ROS seviyesi farklıydı. EBL ile ön işleme tabi tutulan solucanlardaki ROS seviyesi, yüzde 31,60 oranında önemli ölçüde azaldı (Şekil 2D), yani EBL ile tedavi edilen C.elegans'taki güçlü direnç yeteneği, ROS üzerinde temizleme ile ilişkilendirildi.

Bir biyobelirteç olarak MDA, serbest radikal saldırı ve lipid peroksidasyonunun derecesini yansıtabilir; bu nedenle, MDA içeriği, yaşlanma ve metabolizma sürecinde oksidatif hasarın ana sembolü olarak kabul edilir [31]. Şekil 2B'de gösterildiği gibi, boş gruptaki MDA içeriği büyük ölçüde yüksekti. Ek olarak, EBL tedavisi ile solucanlardaki MDA seviyesi yüzde 41,46 oranında keskin bir şekilde azaldı. Bu sonuç, EBL'nin lipid peroksidasyonunu azalttığını ve termal stresin neden olduğu oksidatif hasarı hafiflettiğini gösterdi.
3.4.EBL Termal Stres Altında C.elegans'ta Antioksidan Enzimlerin Aktivitelerini Artırdı
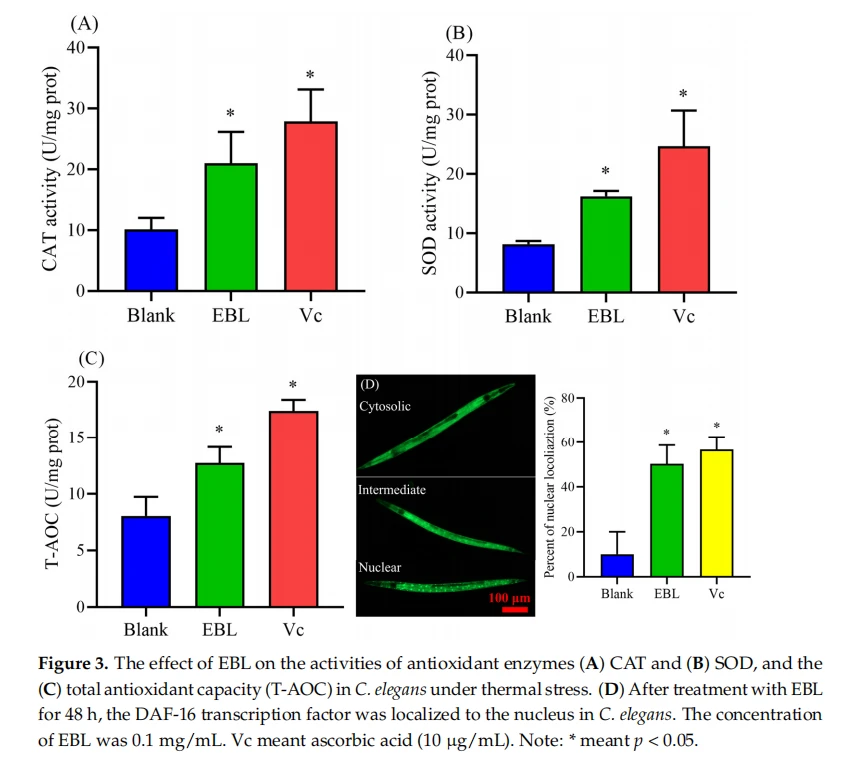
Oksidasyonun neden olduğu hasarda antioksidan savunma sistemi önemli bir rol oynar [32]. EBL ile tedaviden sonra, antioksidan savunma sisteminin düzenlenmesi ile ilgili olabilecek oksidatif hasarın derecesi azaldı. Bu nedenle, antioksidan enzimlerin aktivitelerini daha da değerlendirdik.cistanche satın alŞekil 3A'da gösterildiği gibi, CAT aktivitesi, boş gruba kıyasla yüzde 46,73 oranında önemli ölçüde arttı. Ek olarak, SOD aktivitesi de yüzde 43,84 oranında artırıldı (Şekil 3B).biyoflavonoidlerC.elegans'taki iki ana antioksidan enzimin aktiviteleri iyileştirildi, böylece toplam antioksidan yeteneği daha güçlü hale getirildi (Şekil 3C). Bu nedenle EBL, antioksidan savunma sistemini harekete geçirmiş; antioksidan enzimler daha sonra artan ROS'u ortadan kaldırarak, ısı stresi altında sağkalımı iyileştirdi ve in vivo olarak mükemmel antioksidan yeteneği gösterdi.
3.5. EBL, DAF-16'ın Nucleus'a Yerelleştirilmesini Destekledi
EBL'nin C.elegans üzerindeki etkisinin, metabolizma, stres yanıtı ve yaşam döngüsünün ana düzenleyici merkezi olan daf-16 ile ilişkili olup olmadığını daha fazla araştırmak için [33,34], bir TJ356 transgenik solucanı uygulandı. DAF-16 transkripsiyon faktörünün C.elegans içindeki yeri. Antioksidan enzimlerin genleri, daf-16'ın akış aşağısında bulunur. Şekil 3D'de gösterildiği gibi, EBL ile 48 saatlik tedaviden sonra, çekirdekte bulunan DAF-16 transkripsiyon faktörünün sıklığı yüzde 40.30 oranında önemli ölçüde arttı, yani EBL'nin aktive ettiği DAF-16.
3.6. EBL Mutantların Hayatta Kalmasını Artıramadı
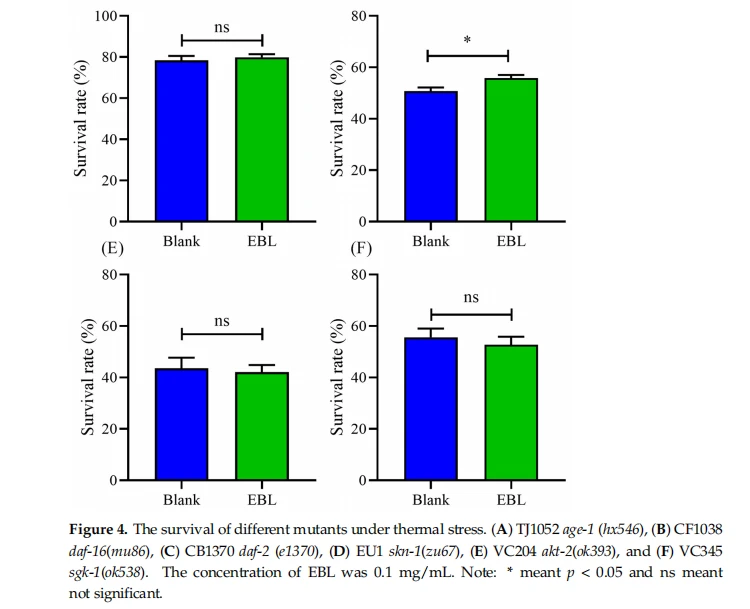
EBL, vahşi tip C. elegans'ın termal stres altında hayatta kalmasını iyileştirdi (Şekil). Bu nedenle, mekanizmayı değerlendirmek için altı tip mutant kullandık. Şekil 4A'da gösterildiği gibi, yaş-1 genini eksik olan TJ1052 suşunun hayatta kalması, EBL ile tedavi edildikten sonra artmadı, yani yaş-1, direnç kapasitesini artırma sürecinde anahtar bir gendi , EBL tarafından indüklenen. Benzer şekilde, EBL, CF1038 (Şekil 4B), CB1370(Şekil 4C), VC204(Şekil 4E) ve VC345'in (Şekil 4F) hayatta kalmasını arttırmada başarısız oldu. Bu nedenle, daf-16. daf-2, at-2 ve sgk-1, dört gen, EBL'nin C.elegans'ın termal stres altındaki direncini güçlendirmesi için gerekliydi. Ayrıca, EBL, EU1 nematodlarının hayatta kalma oranını yüzde 5,01 oranında önemli ölçüde artırdı (Şekil 4D). Bununla birlikte, EBL, vahşi tip solucanların hayatta kalma oranını yüzde 12,62 artırdı ve bu, EU1 suşu üzerindeki etkiden önemli ölçüde farklıydı.
Bu nedenle, EBL, EU1 solucanlarında direnci tam olarak geri yükleyemedi, bu da derinin-1 EBL sürecine kısmen katıldığını gösteriyor.
3.8. EBL Mutantların Ömrünü Uzatamadı
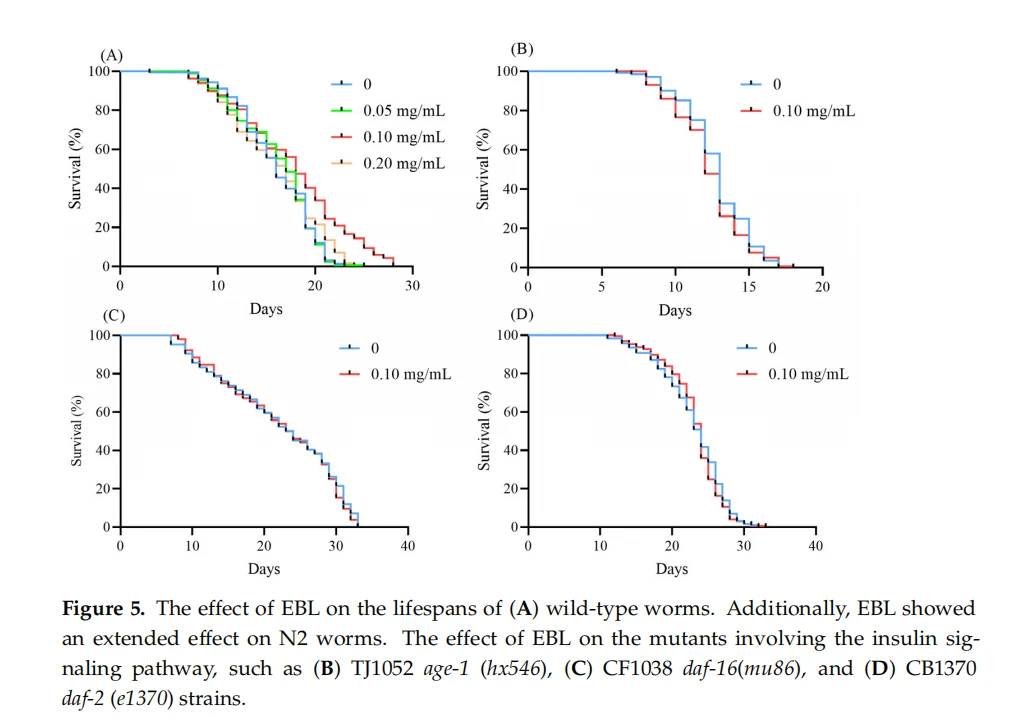
To further explore the mechanism, three mutants were applied to evaluate the anti-aging effect of EBL. As shown in Figure 5B, the lifespans of TJ1052 between the blank group and the EBL group were not significantly changed (p >0.05). As the results show in Figure 5C, the mean lifespan of CF1038 was 12.67 ±0.58 days, and with the treatment of EBL the survival time was not prolonged (p>0.05). Ek olarak, EBL, CB1370 solucanlarının ömrünü uzatmadı (Şekil 5D). Dolayısıyla, EBL'nin C.elegans.daf-16'nın ömrünü uzatması için yaş-1 ve daf-2 gerekliydi-16, yaş-1 ve daf{{8}'ın akış aşağısında bulunuyordu. }. EBL'nin uzun ömürlülüğünün düzenlenmesinde daf-16'ın rolünü değerlendirmek için CF1038 türünü kullandık. Bu nedenle, daf-2, age-1 ve daf-16 olmak üzere üç gen, EBL'nin mükemmel bir yaşlanma karşıtı etki göstermesi için gerekliydi.
3.9.EBL Normal Koşullar Altında C.elegans'ta Normal Bir ROS ve MDA Düzeyinde Tuttu
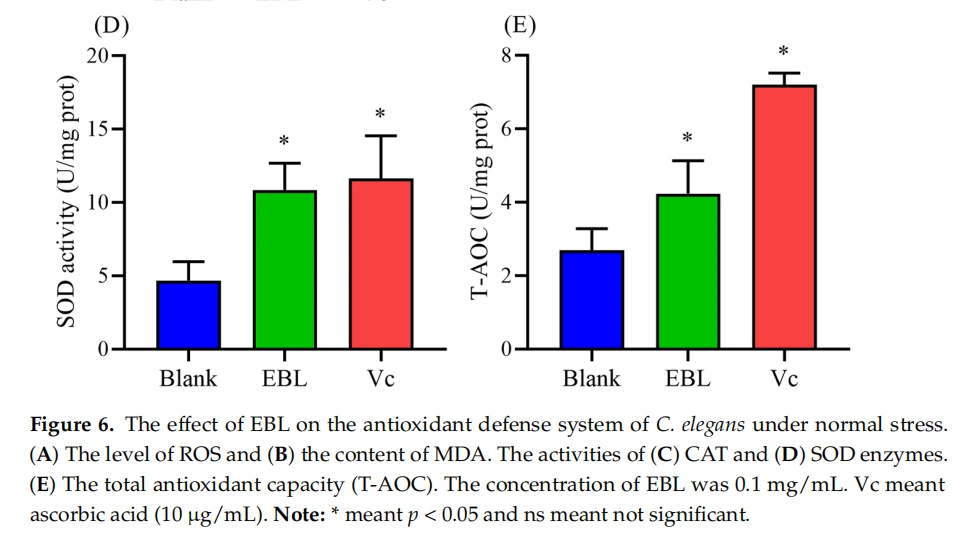
EBL in vivo olarak güçlü antioksidan yeteneğe sahip olduğundan, EBL'nin C.elegans'ın ömrünü uzatmak için antioksidan savunma sistemini düzenleyebileceğini varsaydık. Bu nedenle, normal stres altında ROS seviyesini ve MDA içeriğini belirledik. Şekil 6A'da gösterildiği gibi, ROS seviyesi önemli ölçüde değişmedi. Bu arada, MDA'nın içeriği de değişmedi (Şekil 6B). Bu sonuçlar, EBL'nin C. elegans üzerinde hiçbir uyarıcı etki göstermediğini ve ayrıca solucanları normal fizyolojik bir seviyede tuttuğunu göstermektedir.
3.10.EBL Normal Koşullarda C.elegans'ın Antioksidan Yeteneğini Artırdı
Bulgularımızı daha da doğrulamak için C.elegans'ın antioksidan yeteneği normal stres altında değerlendirildi. Şekil 6C'de gösterildiği gibi, CAT aktivitesi yüzde 175,71 oranında büyük ölçüde arttı. Ek olarak, EBL ile tedavi edildikten sonra SOD aktivitesi de yüzde 131,57 oranında önemli ölçüde iyileştirildi (Şekil 6D). Bu iki enzim, antioksidan savunma sisteminin ana savunucularıydı. Böylece C.elegans'ın toplam antioksidan kapasitesi yüzde 57,46 oranında artırıldı (Şekil 6E). Bu nedenle EBL, C.elegans'taki antioksidan savunma sistemini aktive ederek normal ROS ve MDA seviyelerini koruyarak uzun bir ömür sağlar.
4. Tartışma
EBL'nin, bitkilerden elde edilen diğer fenollere benzer şekilde, H2O2'nin neden olduğu oksidatif hasara karşı HeLa hücrelerini koruduğu kanıtlanmıştır [22]. Bununla birlikte, iç ortamlar büyük ölçüde karmaşıktır ve hücre tahlillerinin vücuttaki karmaşık ortamlar arasındaki düzenlemeyi yansıtması zordur. Bu nedenle, bu çalışmada, EBL'nin antioksidan yeteneğini in vivo olarak kapsamlı bir şekilde değerlendirmek için C.elegans'ı kullandık. Isı stresi altında daha fazla ROS üretildi ve vücuda saldırarak düşük bir hayatta kalma oranına yol açtı [36]. Sonuçların sonunda gösterildiği gibi (Şekil 2A), EBL, C.elegans'ın termal stres altında hayatta kalmasını arttırdı, bu da EBLexerts'in C.elegans'ta belirli bir antioksidan kapasiteye sahip olduğunu gösterir. Vücutta, antioksidan savunma sistemi ana savunucudur ve özellikle CAT ve SOD gibi antioksidan enzimler, artan sayıda serbest radikali ortadan kaldırmak için kullanılan başlıca ajanlardır [37]. EBL, termal stres altında CAT ve SOD aktivitelerini destekledi. Böylece C.elegans'ın toplam antioksidan kapasitesi arttırılmıştır (Şekil 3A-C). Ayrıca, antioksidan enzimler uyarıldığında, ROS seviyesi keskin bir şekilde azaldı ve lipid peroksidasyonuna ek olarak oksidatif hasarın, MDA içeriği azaldıkça azaldığı tahmin edildi. Bu süreç, C.elegans'ta etkili olan diğer doğal ürünler arasında yaygın olarak görülmektedir. Zeytin yapraklarından elde edilen fenolik ekstraktın, CAT, SOD ve glutatyon peroksidazın (GSH-Px) aktivitelerini aktive ettiği ve daha sonra ROS seviyesini düşürdüğü ve C.elegans'ın termal strese karşı direncini arttırdığı kanıtlanmıştır [23]. Anacardium occidentale'den elde edilen polifenolik ekstrakt, SOD-3 ve GST-4 gibi stres tepkisi genlerinin ekspresyonunu uyardı, bu daha sonra ROS seviyesini azalttı ve stres koşulları altında C.elegans'ın hayatta kalmasını arttırdı [38]. Bu nedenle, EBL'nin artan ROS seviyesi gibi zorlu ortamlara karşı C.elegans'ın antioksidan savunma sistemini aktive ederek solucanları koruduğunu tahmin ettik.
İnsülin/IGF-1 sinyal yolu (IIS), yaşlanmayı, gelişmeyi ve stresi düzenlemenin en önemli yollarından biridir. Daha yüksek hayvanlarda FOXO'nun bir homologu olan DAF-16 transkripsiyon faktörü, IIS yolunda önemli bir faktördür ve daf-16 ifadesi, C.elegans'ın ısıya, oksidasyona direnci ile yakından ilişkilidir. , ve metaller [33,34]. Bu nedenle, EBL'nin IS yolunu C.elegans'ın termal koşullara karşı direncini güçlendirmek için düzenleyip düzenlemediğini merak ettik. Daha sonra, EBL'nin DAF-16 transkripsiyon faktörünün yeri üzerindeki etkisi değerlendirildi ve DAF-16 transkripsiyon faktörünün çekirdekte bulunma sıklığı, EBL olmadan tedavi edilenden daha fazlaydı(Şekil 3 BOYUTLU). Dolayısıyla bu sonuç hipotezimizi desteklemiştir. Diğer doğal fenolik özlerde olduğu gibi, Agrimonia procera Wallr. ekstrakt, DAF-16'ı çekirdeğe teşvik ederek C.elegans'ın termal strese karşı direncini arttırdı [39]. Bu arada, antioksidan enzimlerin genleri daf-16'ın akış aşağısında bulunur. DAF-16 transkripsiyon faktörü çekirdeğe uyarılır, daf-16 geninin ifadesi etkinleştirilir ve sod-3 ve ctl-1 gibi aşağı akış genlerinin ifadesi etkinleştirilir. daha sonra yükseltilir ve bunun antioksidan enzimlerin aktivitelerini arttırdığı gösterilir |33,34]. Bununla birlikte, IIS yolu, karmaşık bir sinyal iletim yoludur. daf-16 aktivitesi, yukarı akış yaşı-1 ve daf-2 genleri ve ayrıca AKT-1, AKT-2 fosforilasyonu tarafından düzenlenir. SGK-1, JNK-1 ve CST-1 [40]. Daha fazla araştırma üzerine, TJ1052 age-1(hx546), CF1038 daf-16(mu86), CB1370 daf-2(e1370), VC204 gibi mutantların hayatta kalma oranı -2(ok393) ve VC345 sgk-1(ok538) önemli ölçüde değişmedi, bu da IIS yolunun EBL tarafından indüklenen direnci arttırmada rol oynadığı anlamına geliyor. Bu nedenle, tek kelimeyle, EBL ile tedavi edildikten sonra, CAT ve SOD aktivitelerinin önemli ölçüde arttığı fenomeni, IIS yolunun düzenlenmesi ve çekirdekte daha fazla DAF-16 transkripsiyon faktörünün indüklenmesi ile ilişkilendirildi. EBL tarafından, böylece solucanlardaki yüksek ROS seviyesini azaltarak, in vivo olarak mükemmel bir antioksidan kapasite sergiler.
Diğer bir tür olan EU1 skin-1(zu67), strese karşı direnci düzenleyen hayati bir gen olan IIS yoluna dahil değildir. SKN-1, oksidatif stres yanıtını düzenlemek için p38 MAPK yolunda işlev görür ve DAF-2-aracılı insülin/IGF-1-benzeri sinyalleşmede DAF-16/FOXO'ya paralel olarak çalışır yetişkin ömrünü düzenleme yolu [41]. Ek olarak, diğer araştırmalar, SKN-1'nin DAF'ın akış aşağısında bulunan AKT-1, AKT-2 ve SGK-1 kinazları tarafından doğrudan fosforile edilebileceğini göstermiştir{{13} } insülin sinyal yolunda [40A42]. Bu nedenle, cildin-1 katılımını değerlendirdik. EBL, EU1 türünün hayatta kalmasını yüzde 5.01 artırdı, bu da vahşi tip C.elegans üzerindeki etkiden (yüzde 12.62) nispeten daha düşüktü. Bu sonuç, skin-1 geninin C,elegans'ın direncini artırma sürecinde kısmen yer aldığını göstermiştir. Önceki araştırmalarda, diğer doğal bitkiler de C. elegans'ın direncini düzenlemek için IIS yolunu düzenlemişti. Klorojenik asit, C.elegans'ı HIF-1, HSF-1 ve otofaji yoluyla termal strese karşı korumuştur [43]. Anacardium occidentale'den elde edilen fenolik ekstrakt, DAF-16/FoxO ve SKN-1/Nrf-2 sinyal yolları [38] yoluyla hücre içi reaktif oksijen türlerini (ROS) zayıflattı. On sekiz fenolik bileşim içeren geleneksel bir Çin bitki çayı, C.elegans'ta artan stres direnci (oksidatif strese ve ısı stresine karşı) ve bu koruyucu mekanizma, insülin/insülin benzeri büyüme faktörü sinyalleşmesi (IS-) bağımlı şekilde [44]. Sonuç olarak, EBL, C. elegans'ın termal strese karşı direncini, bitkilerden elde edilen diğer doğal fenollerin yanı sıra deri-1 gibi diğer yollara eşlik eden IIS yolu aracılığıyla artırdı.
Genellikle, antioksidan yetenek yaşlanma karşıtı bir etkiyle ilişkilendirilir |45-47]. Rosa rugosa çayından elde edilen polifenol özü, C.elegans'ın ömrünü uzatmanın yanı sıra termotoleransı ve oksidatif strese karşı direnci arttırmıştır [48]. Üzüm prinası ekstraktları da C.elegans'ın stres koşullarında hayatta kalmasını arttırmış ve ömürlerini uzatmıştır [36. EBL in vitro ve in vivo olarak güçlü bir antioksidan yetenek gösterdiğinden, EBL'nin C.elegans'ın ömrünü uzatıp uzatamayacağını merak ettik. Sonuçlarda nihayetinde görüldüğü gibi, EBL, C.elegans'ın ortalama ömrünü boş gruba kıyasla yüzde 17,31 oranında önemli ölçüde uzatarak mükemmel yaşlanma karşıtı yetenek gösterdi. Bu nedenle, antioksidan potansiyeli ve yaşlanmayı geciktirme yeteneği arasındaki bağlantıyı bulmak için normal stres altında C.elegans'ın antioksidan yeteneğini daha da araştırdık. Yaşlanmanın ana belirteçleri olan ROS ve MDA, önemli ölçüde değişmedi. Sonuçların gösterdiği gibi, CAT ve SOD aktiviteleri şaşırtıcı bir şekilde desteklendi. C.elegans'ın toplam antioksidan kapasitesi de geliştirildi(Şekil 6C-E). Dolayısıyla, EBL'nin C. elegans'ı normal fizyolojik seviyede tutmak için antioksidan savunma sistemini aktive ettiğini varsaydık; bu nedenle, artan RO seviyesi, oksidatif hasardan kaçınarak zamanında temizlenebilir. C.elegans'ın yaşam döngüsü, başta IIS yolu olmak üzere birkaç ana yolla kontrol edilir. Bulgularımız ayrıca, EBL'nin uzun ömür etkisi göstermesi için yaş-1,daf-16 ve daf-2'nın gerekli olduğunu, yani IIS yolunun sürece katıldığını gösterdi. IIS yolunda daf-2 ve age-1 genleri, C.elegans'ın üremesini ve yaşam döngüsünü düzenleyen ana faktör olan daf-16'ın ifadesini engeller. EBL, DAF-16'nın çekirdeğe transkripsiyonunu aktive ettiğinden, EBL'nin C.elegans'ın ömrünü uzatmak için IIS yolunu baskılayabileceğini varsaydık. EBL'nin kimyasal bileşimleri daha önce tanımlanmıştır [22]. Ana bileşen klorojenik asitti. Ayrıca, klorojenik asidin C.elegans'ın yaşlanması üzerinde, esas olarak insülin/IGF-1 sinyal yolundaki DAF-16 yoluyla bir etki gösterdiği kanıtlanmıştır [49]. Doğal bir polifenol bileşiği olan kateşin asit, Caenorhabditis elegans'ın ömrünü mitofaj yolları yoluyla uzatmıştır [20]. Bu nedenle, bu çalışmada, EBL, IIS yolu aracılığıyla mükemmel antioksidan yetenek ve yaşlanma karşıtı etki sergiledi.
Normalde metallerin ve diğer tehlikeli maddelerin neden olduğu ana hasar, organda akut veya kronik oksidatif hasardır [50]. Metal iyon homeostazının bozulması, oksidatif strese neden olabilir, ROS seviyesini yükseltebilir ve ardından DNA hasarına, lipid peroksidasyonuna, protein modifikasyonuna ve kanser, kardiyovasküler hastalık, diyabet ve diğerleri dahil olmak üzere diğer etkilere neden olabilir [51]. Benzer şekilde resveratrol, C.elegans'ta demir kaynaklı toksisiteyi azaltmıştır [52]. Geleneksel bir Çin tıbbı olan Tetrastigma hemsleyanum, ROS seviyesini azaltarak C.elegans'ı akrilamidin neden olduğu toksisiteden korumuştur [53]. Bu nedenle güçlü bir antioksidan özelliğe sahip olan EBL'nin organı oksidatif hasardan koruyabileceğinden şüphelendik ki bu umut verici bir bakış açısı olacaktır.
5. Sonuçlar
Bu çalışmada, EBL'nin antioksidan yeteneğini in vivo olarak daha fazla değerlendirmek için C.elegans kullandık. Sonuçların sonunda gösterdiği gibi, EBL çekirdeğe daha fazla DAF-16 transkripsiyon faktörünü destekledi ve SOD ve CAT gibi antioksidan enzimlerin aktivitelerini arttırdı. Daha sonra, ROS'un iç seviyesi ve MDA içeriği keskin bir şekilde azaltılarak oksidatif stres koşulları altında hayatta kalma oranı arttırıldı. Bu arada EBL, IIS yolu ile antioksidan kapasitesini artırarak C.elegans'ın ömrünü de uzatmıştır. Ayrıca, EBL, TJ1052, CF1038 ve CB1370 gibi mutantların ömrünü ve hayatta kalma oranını uzatmayı başaramadı, bu da EBL'nin C.elegans'ın sağlığını geliştirmek için insülin sinyal yolunu düzenleyebileceği anlamına geliyor. Bu sonuçlar, EBL'nin in vivo olarak güçlü antioksidan yeteneğe sahip olduğunu ve EBL'nin daha ileri yaşlanma karşıtı farmakolojik araştırmalar için umut verici bir potansiyel ajan olabileceğini göstermektedir.
Bu makale Antioxidants 2021, 10, 1744'ten alınmıştır. https://doi.org/10.3390/antiox10111744 https://www.mdpi.com/journal/antioxidants


