Cistanche Deserticola'nın ağ farmakolojisi ve deneysel doğrulama kullanarak Alzheimer hastalığını tedavi ettiği mekanizmanın araştırılması
Dec 10, 2024
2 Sonuçlar
2.1 Cistanche Deserticola'nın ana aktif bileşenlerinin ve içerik hedeflerinin taranması
Cistanche Deserticola, TCMSP veritabanı ve Swiss ADME platformu aracılığıyla arandı ve literatür arama, örneğin Sheilacton, Yangambin, Quercetin, arachidonat, markine, akteosid, ekinakozit ve beta-sitosterol ile sonuçlandı.

2.2 Hastalık hedeflerinin taranması ve Venn diyagramı hazırlama, protein-protein etkileşim ağı (PPI) yapısı ve go ve kegg
Zenginleştirme analizi OMIM, genekartlar ve NCBI veritabanları yoluyla gerçekleştirildi ve taramadan sonra toplam 2 013 AD ile ilgili hedefler elde edildi. Cistanche Deserticola bileşen hedeflerini ve AD ile ilgili hedefleri Venny Diyagramı Çevrimiçi web sitesine aktarın ve toplam 207 ilaç-hastalık kavşak hedefi elde edin ve Şekil 1A'da gösterildiği gibi bir Venn diyagramı çekin. İlaç-hastalık etkileşimini analiz etmek için 207 kavşak hedefini String veritabanına aktarın. Daha sonra veri dosyasını Cytoscape yazılımına aktarın ve dereceden, yakınlık ve aralarında sayısal taramadan sonra 42 hedef ve 593 kenar elde edilir. Derece boyutu sıralamasına göre, TNF, AKT1, CASP3, PPARG, EGFR, MMP9, ESR1, HIF1A anahtar hedef genler olarak seçilir ve protein-protein etkileşim ağı diyagramı çekilir (Şekil 1B).
AD'nin Cistanche Deserticola tarafından tedavisinde yer alan hedeflerin yaşam sürecini açıklamak için, Metascape veritabanı, yukarıda elde edilen 42 hedef üzerinde GO zenginleştirme analizi gerçekleştirmek için kullanıldı: hücresel bileşen (CC), moleküler fonksiyon (MF) ve biyolojik süreç (BP). Projeler, p≤ 0. 0 5 standardı ile tarandı ve ilk on hücresel bileşen, moleküler fonksiyonlar ve biyolojik süreçler, mikrobiyoloji çevrimiçi çizim web sitesi kullanılarak kabarcık diyagramlarına çekildi (Şekil 1C); David Online Aracı, hastalık ve ilaçların 42 ortak temel hedefi üzerinde KEGG zenginleştirme analizi yapmak için kullanılmıştır ve P≤0.05 olan projeler tarandı. Sonuçlar, toplam 172 sinyal yolunun zenginleştirildiğini gösterdi. En iyi 20 yol P değerine göre seçildi ve kabarcık diyagramı mikrobiyoloji çevrimiçi platformu kullanılarak çizildi (Şekil 1D). Zenginleştirme sonuçları, AD tedavisinde Cistanche Deserticola mekanizmasının PI3K-AKT yolu, kanser yolu, yapışma odak ve diğer yollarla yakından ilişkili olabileceğini göstermiştir.
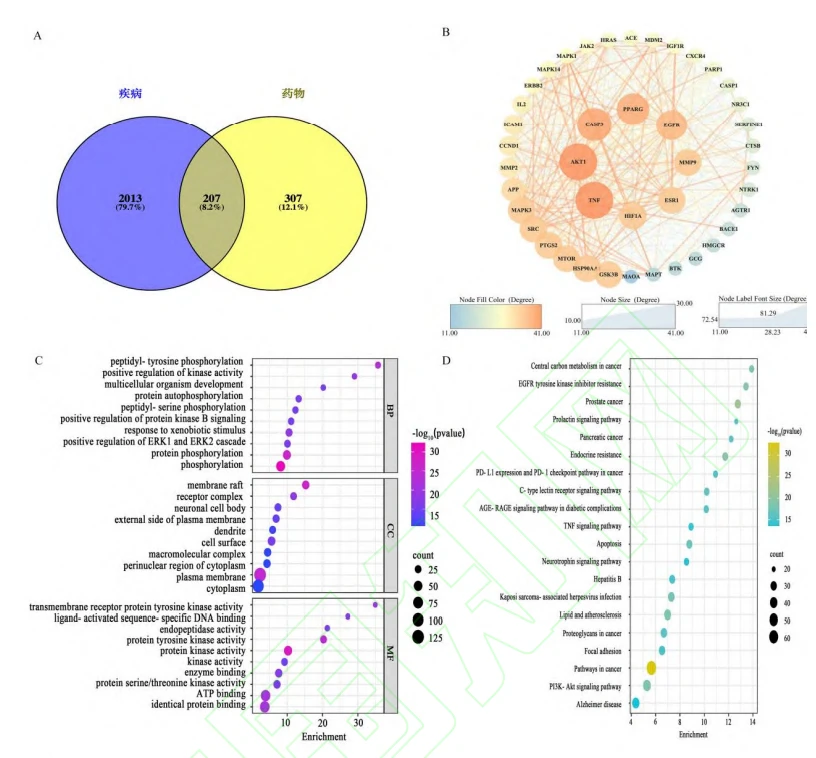
Şekil 1 (a) Alzheimer Hastalığı Hedefleri ve Cistanche Bileşeni Venn grafiğini hedefler; (B) protein-protein etkileşim ağları; (C) Zenginleştirme analizi kabarcık diyagramı; (D) KEGG Zenginleştirme Analizi Kabarcık Diyagramı
2.3 İlaç-Yatık-Hız-Pathway-Hedget Haritasının Hazırlanması
KEGG zenginleştirme sonuçlarını PPI ağı inşaat sonuçları ile birleştirerek, bir ilaç-içme-hastalık-yol-hedef ağı çizilebilir (Şekil 2). Mavi Üçgen: İlaç Cistanche Deserticola; Turuncu Üçgen: Hastalık AD; açık yeşil daire: ilacın ana bileşeni; Sarı Çember: Cistanche Deserticola tarafından tedavi edilen hastalık ile ilgili ana yol; Koyu yeşil dikdörtgen: ilaç-hastalık ile ilgili hedef; Kenar: düğümler arasındaki korelasyon

Şekil 2 Sahneye gitmeden önce yer navigasyon testinin her grubunda fareler tarafından kat edilen toplam mesafe (x s, mm)
| Grup | 1. Gün | 2. Gün | 3. Gün | 4. Gün | 5. Gün |
|---|---|---|---|---|---|
| Samri | 11,963.53 | 7,759.00 | 5,660.00 | 3,922.00 | 1,984.67 |
| Model | 11,977.35 | 8,417.67 | 5,465.38 | 7,329.67 | 5,517.67 |
| L-GCS (Dikey Geçiş Sistemi) | 11,964.33 | 8,330.33 | 6,226.87 | 4,789.33 | 3,867.47 |
TAB 3 KAPALI Navigasyon testinin her grubundaki farelerin kaçış gecikmesi (x s, s)
| Grup | 1. Gün | 2. Gün | 3. Gün | 4. Gün | 5. Gün |
|---|---|---|---|---|---|
| Samri | 50.33 ± 1.24 | 45. 00 ± 43.43 | 39.67 ± 21.55 | 35. 00 ± 6.64 | 30.01 ± 1.64 |
| Model | 53. 00 ± 3.81 | 47. 00 ± 4.81 | 41. 00 ± 2.71 | 36. 00 ± 4.81 | 31. 00 ± 1.81 |
| L-GCS (Dikey Geçiş Sistemi) | 54. 00 ± 4.12 | 47.67 ± 4.34 | 39.67 ± 1.22 | 35.75 ± 2.45 | 36. 00 ± 1.81* |
| M-GCS (Bağımsız Yönetim) | 52.67 ± 4.47 | 46. 00 ± 4. 00 | 35.75 ± 2.67 | 34. 00 ± 1.53 | 32. 00 ± 2.31* |
| H-GCS | 50.33 ± 2.11 | 45.67 ± 3.25 | 36.50 ± 2.31* | 35.75 ± 1.22* | 31.50 ± 1.81* |
| F | 2.84 |
*Not: Samri Grubu ile karşılaştırıldığında,P <{0}}. 0 5; Model grubu ile karşılaştırıldığında, † p <0.05; L-GCS ve H-GCS grupları, ‡ P <0.05.
Başka değişikliklere ihtiyacınız varsa, bana bildirin!

Şekil 3 Hedef çeyrekte harcanan sürenin yüzdesi ve prob deneme testinde her bir fare grubu tarafından geçen platformun sayısı sayısı
2.4.2 y labirent deneyi
Y labirent deneyinin sonuçları şunları gösterdi: SAMR1 grubu ile karşılaştırıldığında, model grubunun yeni silahları keşfetme süresi ve değişim oranının önemli ölçüde azaldığı (P<0.05); compared with the Model group, the M-GCs group and H-GCs group's novel The arm exploration time was significantly increased (P<0.05); the spontaneous alternation rate of new arms in the GCs-administered group was significantly higher than that in the Model group (P<0.05), among which the spontaneous alternation rate of the M-GCs group was higher than that of the other administration groups ( P <0.05) (Fig. 4).

2.5 GC'lerin fare hipokampal nöronlarının sayısı ve morfolojisi üzerindeki etkileri
NISSL boyama sonuçları, SAMR1 grubundaki nöronal piramidal hücrelerin tam şekil ve düzgün düzenleme ile yuvarlak veya oval olduğunu gösterdi. Hücre içi NISSL cisimleri derinden boyanmış ve sayı daha büyüktü. SAMR1 grubu ile karşılaştırıldığında, model grubundaki nöronal piramidal hücreler, somatik hücrelerin morfolojisi kırıldı, düzenleme dağıldı ve NISSL cisimleri hafif renklendirildi ve tam piramidal hücrelerin sayısı önemli ölçüde azaldı (P<0.05); compared with the Model group, the morphology of the pyramidal cells in the GCs administration group was more complete and the arrangement was more complete. Relatively neat, the number of complete pyramidal cells increased significantly (P<0.05). Among them, most pyramidal cells in the M-GCs group were complete in shape and more neatly arranged. The number of complete pyramidal cells was significantly higher than that in other drug administration groups. increased (P <0.05), as shown in Figure 5.

2.4.2 y labirent deneyi
Y labirent deneyinin sonuçları şunları gösterdi: SAMR1 grubu ile karşılaştırıldığında, model grubunun yeni silahları keşfetme süresi ve değişim oranının önemli ölçüde azaldığı (P<0.05); compared with the Model group, the M-GCs group and H-GCs group's novel The arm exploration time was significantly increased (P<0.05); the spontaneous alternation rate of new arms in the GCs-administered group was significantly higher than that in the Model group (P<0.05), among which the spontaneous alternation rate of the M-GCs group was higher than that of the other administration groups ( P <0.05) (Fig. 4).
2.5 GC'lerin fare hipokampal nöronlarının sayısı ve morfolojisi üzerindeki etkileri
NISSL boyama sonuçları, SAMR1 grubundaki nöronal piramidal hücrelerin tam şekil ve düzgün düzenleme ile yuvarlak veya oval olduğunu gösterdi. Hücre içi NISSL cisimleri derinden boyanmış ve sayı daha büyüktü. SAMR1 grubu ile karşılaştırıldığında, model grubundaki nöronal piramidal hücreler, somatik hücrelerin morfolojisi kırıldı, düzenleme dağıldı ve NISSL cisimleri hafif renklendirildi ve tam piramidal hücrelerin sayısı önemli ölçüde azaldı (P<0.05); compared with the Model group, the morphology of the pyramidal cells in the GCs administration group was more complete and the arrangement was more complete. Relatively neat, the number of complete pyramidal cells increased significantly (P<0.05). Among them, most pyramidal cells in the M-GCs group were complete in shape and more neatly arranged. The number of complete pyramidal cells was significantly higher than that in other drug administration groups. increased (P <0.05), as shown in Figure 5.
2.6 GC'lerin fare hipokampüsünde PI3K-AKT yoluyla ilgili proteinlerin ve tau proteininin ekspresyonu üzerindeki etkisi
İmmünohistokimyasal boyama sonuçları, SAMR1 grubu ile karşılaştırıldığında, model grubundaki hipokampal CA1 alanında PI3K ve P-AKT'yi eksprese eden pozitif hücre sayısının önemli ölçüde azaldığını gösterdi (P<0.05), and the number of positive cells expressing P-Tau was significantly increased (P < 0.05); compared with the Model group, the number of positive cells in the hippocampal CA1 area of PI3K and P-Akt in the GCs group was significantly increased (P<0.05), and the number of positive cells expressing P-Tau was significantly reduced (P<0.05 ); among them, the number of positive cells expressing PI3K and P-Akt in the CA1 area of mouse hippocampus was significantly increased in the M-GCs group compared with other GCs administration groups (P<0.05), see Figure 6.

Şekil 7 Western blot deneysel şeridi grafiği
TAB 4 Şerit absorbans değeri (x s)
| Grup | 1. Gün | 2. Gün | 3. Gün | 4. Gün | 5. Gün |
|---|---|---|---|---|---|
| Samri | 50.33 ± 1.24 | 45. 00 ± 43.43 | 39.67 ± 21.55 | 35. 00 ± 6.64 | 30.01 ± 1.64 |
| Model | 53. 00 ± 3.81 | 47. 00 ± 4.81 | 41. 00 ± 2.71 | 36. 00 ± 4.81 | 31. 00 ± 1.81 |
| L-GCS (Dikey Geçiş Sistemi) | 54. 00 ± 4.12 | 47.67 ± 4.34 | 39.67 ± 1.22 | 35.75 ± 2.45 | 36. 00 ± 1.81* |
| M-GCS (Bağımsız Yönetim) | 52.67 ± 4.47 | 46. 00 ± 4. 00 | 35.75 ± 2.67 | 34. 00 ± 1.53 | 32. 00 ± 2.31* |
| H-GCS (Mali İşler Müdürü) | 50.33 ± 2.11 | 45.67 ± 3.25 | 36.50 ± 2.31* | 35.75 ± 1.22* | 31.50 ± 1.81* |
| F | 2.84 |
*Not: Samri Grubu ile karşılaştırıldığında,P <{0}}. 0 5; Model grubu ile karşılaştırıldığında, † p <0.05; L-GCS ve H-GCS grupları, ‡ P <0.05.
3 Tartışma
Alzheimer hastalığı yaygın bir nörodejeneratif hastalıktır. Sinsi başlangıç ve sürekli ilerlemeye sahip kronik bir hastalık olarak, hafıza, dil, biliş, kişilik ve davranışsal işlevler gibi anormal klinik belirtilerle karakterizedir [15,16]. Şu anda, Alzheimer hastalığının patogenezi karmaşıktır ve Ap amiloid birikimi, nöronların oksidatif stresi, nöroinflamasyon, Tau proteininin anormal fosforilasyonu ve bağırsak flora dengesizliği gibi birçok teori vardır. Bunlar arasında, tau protein fosforilasyonunun neden olduğu nöronların enflamatuar apoptozu, AD'nin neden olduğu bilişsel bozukluğun önemli bir mekanizmasıdır [17,18]. Tau proteini, nöronal aksonlarla ilişkili mikrotübülle ilişkili bir proteindir (haritalar). Ana işlevi mikrotübül oluşumunu teşvik etmek, stabilitelerini korumak ve aksonal taşımayı düzenlemektir [19,20]. Tau proteininin aşırı fosforilasyonu, mikrotübüllere bağlanma yeteneğini kaybederek mikrotübül depolimerizasyonuna, aksonal disfonksiyona ve nörofibriler karışıklıklara neden olacak ve nöronal dejenerasyon ve apoptoza yol açacaktır [21]. Çalışmalar, çeşitli ilişkili sinyal yollarının, aralarında hücre içi fosfatidilinositol kinaz B (PI3K/Akt) yolunun oynadığı tau proteininin fosforilasyonu ile yakından ilişkili olduğunu bulmuştur.
Yukarıda belirtilen ağ farmakolojisi çalışmasında, Go ve Kegg zenginleştirme analizi, i3K/Akt yolunun Cistanche deserticola tarafından AD'nin iyileştirilmesinde önemli bir rol oynadığını ve hücre apoptozu, senil plak oluşumu ve nöronal göçüklerle yakından ilişkili olduğunu gösterdi; GCS ve AD'nin ortak hedefleri, AKT1'in PI3K/AKT yolunda önemli bir anahtar hedefi ve anahtar protein olduğu String veritabanı aracılığıyla tarandı. Akt'ın yukarı akış molekülü olarak PI3K, spesifik bir hücre içi fosfatidilinositol kinazdır [23]. Memelilerde, PI3K ailesi, tip I izozimlerinin PI3K-AKT yolundaki ana düzenleyici hedefler olduğu Tip I, II ve III izozimlerine sahiptir. PI3K'nın IA tipi izozimi, tirozin reseptör kinazlar gibi proteinlere bağlandığında, PI3K fosforile edilebilir ve aktive edilebilir, PIP2 hedefini hücre zarının dışındaki PIP3 hedefi, akt1, akt1, bir alt tipi haline getirmek için fosforilize eder. Akt ailesinin üyeleri, hücre sağkalımı, proliferasyon, metabolizma ve büyüme gibi biyolojik işlevleri düzenleme yeteneğine sahiptir. Bir yandan, fosforile edilmiş akt1, serin kalıntısında β hücresi kll/lenfoma (BCL -2) ile ilişkili hücre ölümü agonistini (BAD) fosforile edebilir, böylece hücre apoptozunu inhibe edebilir [27]. Öte yandan, akış aşağı proteinleri mTOR, GSK3β ve FOXO'yu düzenleyebilir, böylece P-tau proteini üretimini azaltabilir [28-30].
P-tau proteininin artması AD'nin ayırt edici bir patolojik özelliği olarak kabul edilebildiğinden, bilişsel düşüş ve sinaptik kayıp ile yakından ilişkili olduğuna inanılmaktadır. Bu nedenle, PI3K/AKT sinyal yolunun aktivasyonu, Alzheimer hastalığının iyileştirilmesinde önemli bir rol oynayabilir.
Cistanche Deserticola, bitkinin kurutulmuş pullu yaprakları olan eti gövdesidir Cistanche Deserticola. Doğada sıcak, tatlı ve tuzlu tadı ve böbrek ve kalın bağırsak meridyenlerine aittir. Böbreyi tonlamak ve Yang'ı güçlendirmek, bağırsakları nemlendirmek ve kabızlığı hafifletmek için bir ilaçtır [31]. Anti-apoptoz, anti-oksidasyon, hücre otofajisinin ve nöroendokrinleri düzenleme, fiziksel gücü arttırma ve öğrenme ve bilişin iyileştirilmesinin etkileri vardır. Merkezi sinir sistemi hastalıklarının önlenmesi ve tedavisinde önemli bir değere sahiptir [32]. Birçok literatür, Cistanche Deserticola'nın serebral iskemi-reperfüzyon nedeniyle yaralanan nöronların otofajisinde amino asitleri koruyabileceğini ve heyecanlandırabileceğini kaydeder, demans sıçanlarında nöronal oksidatif stresi iyileştirir, lipopolisakkaritin indüklediği mikroglial inflamatuar yanıtı [{{{5 {{{{5 {5 {5 {5 {, 5 {{5 {5 {, 5 {{5 {5 {5 {5 ıçın, bağışıklık fonksiyonunu arttırır [{{ Yukarıdaki davranışsal deneyler, model grubu ile karşılaştırıldığında, GCS grubundaki farelerin öğrenme ve bilişte önemli gelişmeleri olduğunu gösterdi (P<0.05); Nissl staining experiments found that the number of pyramidal cells in the GCs group was significantly increased compared with the Model group, with complete morphology and neat arrangement (P<0.05); immunohistochemistry and Western blot experiments found that GCs could significantly increase the expression of PI3K and P-Akt proteins in the hippocampus of SAMP8 mice and significantly reduce the expression of P-Tau protein (P<0.05), which indicates that Cistanche deserticola may play a role in improving Alzheimer's disease by regulating the PI3K-Akt signaling pathway and affecting the production of P-Tau. This study used SAMP8 mice to construct an Alzheimer's disease model. Through network pharmacology, the main mechanism of action of Cistanche deserticola in treating Alzheimer's disease was explored, and a preliminary discussion of the mechanism of action and the optimal drug dose were explored. The subsequent exploration will continue to explore the mechanism of action and efficacy of Cistanche deserticola in improving the learning and cognitive function of AD model animals, in order to provide more modern scientific basis for the development of Cistanche deserticola products for the prevention and treatment of AD.