STEAP1 Kimerik Antijen Reseptörü T Hücresi ve Tümör Lokalize IL-12 İmmünoterapisi ile İleri Prostat Kanserinin Hedeflenmesi
Sep 18, 2023
Prostat 1'in altı transmembran epitelyal antijeni (STEAP1), prostat kanserinde terapötik hedefleme için bir hücre yüzeyi antijenidir. Burada, ölümcül metastatik prostat kanserlerinde prostat spesifik membran antijenine (PSMA) göre STEAP1'in geniş ekspresyonunu ve STEAP1-yönelimli kimerik antijen reseptörü (CAR) T hücresi terapisinin gelişimini rapor ediyoruz. STEAP1 CAR T hücreleri, düşük antijen yoğunluğunda reaktivite, metastatik prostat kanseri modellerinde antitümör aktivitesi ve insan STEAP1 nakavt fare modelinde güvenlik gösterir. STEAP1 antijen kaçışı, tekrarlayan bir tedavi direnci mekanizmasıdır ve azalmış tümör antijeni işlemesi ve sunumu ile ilişkilidir. Kollajen bağlama alanı (CBD)-IL-12 füzyon proteini formundaki tümör lokalize interlökin-12 (IL-12) terapisinin STEAP1 CAR T hücresi terapisiyle birleştirilmesiyle uygulanması, Prostat kanserinin immünolojik olarak soğuk tümör mikro ortamını yeniden şekillendirerek ve konakçı immünitesi ve epitop yayılımının devreye girmesi yoluyla STEAP1 antijen kaçışıyla mücadele ederek antitümör etkinliği.

Çin otu cistanche bitkisi-Antitümör
Metastatic prostate cancer represents an incurable disease responsible for over 33,000 deaths per year in the United States1. Prostate cancer is critically reliant on androgen receptor (AR) signaling and thus the suppression of gonadal androgen production through surgical or chemical castration (androgen deprivation therapy) has been a mainstay of treatment for advanced disease. However, metastatic prostate cancer inevitably develops resistance to androgen deprivation therapy and enters a stage called metastatic castration-resistant prostate cancer (mCRPC). mCRPC is currently incurable and is considered the end stage of the disease and is associated with a median overall survival of three years2. In the past decade, multiple therapies including an inhibitor of extragonadal androgen synthesis (abiraterone acetate)3, second-generation AR antagonists (enzalutamide)4, radioactive isotope (radium-223)5, and a prostate-specific membrane antigen (PSMA)-specific radioligand therapy (lutetium Lu 177 via votide tetraxetan)6 have been approved for mCRPC. Each of these agents extends survival on average by several months but long-term remissions are rare. Strategies to reprogram the immune system to combat prostate cancer first gained traction with the clinical approval of the dendritic cell vaccine sipuleucel-T for asymptomatic mCRPC7. More recently, several types of immunotherapies including immune checkpoint inhibitors, a DNA cancer vaccine, antibody-drug conjugates (ADC), T cell engaging bispecific antibodies (T-BsAb), and chimeric antigen receptor (CAR) T cell therapies have been under active clinical investigation8,9. CARs are synthetic receptors that leverage the potency, expansion, and memory of T cells and can be engineered against virtually any tumor-associated cell surface antigen. The adoptive transfer of CAR T cells has rapidly become an established treatment for hematologic malignancies with exceptional response rates leading to six clinical approvals in the last five years10. In contrast, CAR T cell therapies targeting solid tumors have lagged due to additional challenges related to the lack of bona fide tumor-specific antigens, inhospitable tumor microenvironments, and poor trafficking, persistence, and expansion of CAR T cells11. Despite the challenges observed in driving effective immune responses toward solid tumors, recent early-phase clinical trials investigating CAR T cell therapies targeting PSMA in mCRPC have reported safety and evidence of significant biochemical and radiographic responses12,13. These preliminary results serve to embolden efforts to develop and optimize new CAR T cell therapies for prostate cancer. While PSMA is the preeminent target for therapeutic and diagnostic development in prostate cancer, recent work indicates that PSMA expression may be quite heterogeneous in mCRPC14. Tumor antigen heterogeneity, especially in the context of single antigen-targeted CAR T cell therapies for solid tumors like prostate cancer, is an important barrier to therapeutic efficacy15. Thus, identifying cell surface antigens with broad and relatively homogeneous expression in prostate cancer is imperative. In addition, very few if any tumor-associated antigens demonstrate tumor-restricted expression—most also exhibit low-level expression in normal tissues that could represent liabilities for CAR T cell therapies due to on-target off-tumor toxicities which can lead to devastating consequences including death16. We previously performed integrated transcriptomic and cell surface proteomic profiling of human prostate adenocarcinoma cell lines and identified six transmembrane epithelial antigens of the prostate 1 (STEAP1) as one of the most highly enriched cell surface antigens17. STEAP1 was first described over two decades ago18 and was recognized as being highly expressed in prostate cancer. STEAP1 is strongly expressed in >Kemik veya lenf nodu tutulumu olan mCRPC'lerin %80'i19, Ewing sarkomunun %62'si20 ve diğer birçok kanser türü21. STEAP1, diğer STEAP proteinleri22ile homotrimerler veya heterotrimerler oluşturabilen STEAP Metallo redüktaz ailesine aittir. STEAP1'in kanser hücresi çoğalmasını, istilasını ve epitelyalden mezenkimal geçişi teşvik etmede yerleşik bir fonksiyonel rolü vardır-26.
Cistanche tubulosa'nın faydaları-Antitümör
Ayrıca STEAP1 normal dokuda sınırlı ekspresyon sergiliyor27, bu da onu kanser tedavisi için son derece zorlayıcı bir hedef haline getiriyor. STEAP1'i hedeflemek için çok sayıda immünoterapötik ajan geliştirildi ancak hiçbiri klinik olarak onaylanmadı. Monometil auristatin E'ye bağlı hümanize anti-STEAP1 IgG1 antikorundan oluşan ADC vandor tuzumab ved otin'in (DSTP3086S), mCRPC'de yapılan bir faz I klinik deneyinde kabul edilebilir bir güvenlik profiline sahip olduğu bulundu ancak çok az objektif tümör tepkisi gözlemlendi28. İki anti-STEAP1 fragmanı-antijen bağlama (Fab) alanını, bir anti-CD3 tek zincirli değişken fragmanı (scFv) ve AMG 509 olarak adlandırılan efektör fonksiyonundan yoksun olacak şekilde tasarlanmış bir fragman kristalleştirilebilir (Fc) alanını içeren bir T-BsAb şu anda değerlendirilmektedir. mCRPC29'da bir faz I klinik denemesinde (NCT04221542). BC261 adı verilen asimetrik çift değerli T-BsAb'nin yakın zamanda prostat kanseri ve Ewing sarkomunun çoklu preklinik modellerinde güçlü antitümör aktivitesi gösterdiği rapor edildi30. Ek olarak, bir STEAP1 peptidine spesifik bir insan lökosit antijeni (HLA) sınıf I ile sınırlı T hücresi reseptörünün (TCR), transgenik T hücrelerinin adaptif transferinden sonra klinik öncesi bir ksenograft modelinde lokal ve metastatik Ewing sarkomu büyümesini inhibe ettiği gösterilmiştir31. Bu çalışmada, mevcut PSMA teranostik çağında STEAP1'i hedeflemenin faydasını araştırmak için ölümcül mCRPC'de STEAP1 ve PSMA'nın göreceli ifadesinin karşılaştırmalı bir analizini gerçekleştiriyoruz. İkinci nesil STEAP1 CAR'ları antijene spesifik T hücresi aktivasyonu ve hedef hücre sitolizi için tasarlıyor ve tarıyor ve daha ileri karakterizasyon için bir lider aday ortaya koyuyoruz. STEAP1 CAR T hücrelerinin fonksiyonel epitop özgüllüğünü belirliyoruz ve birden fazla donörden alınan STEAP1 CAR T hücre ürünlerinin genişlemesinin ve immünfenotipinin profilini çıkarıyoruz. Daha sonra, prostat kanserinin ilgili klinik öncesi modellerinde STEAP1 CAR T hücre tedavisinin gücünü ve ön güvenliğini belirledik, ancak tedavi direncinin bir mekanizması olarak STEAP1 antijen ekspresyonunun tekrarlayan kaybını gözlemledik. Bu sorunun üstesinden gelmek için, prostat kanserinin bağışıklık baskılayıcı tümör mikro ortamını yeniden şekillendiren ve antitümör yanıtlarını genişletmek için endojen bağışıklığı devreye sokan CBD-IL-12'nin eş zamanlı uygulanmasını değerlendiriyoruz. Toplu olarak bu çalışmalar, STEAP1 CAR T hücre tedavisinin mCRPC'li erkeklere klinik çevirisi için güçlü bir gerekçe sağlar ve potansiyel terapötik direnç mekanizmalarının üstesinden gelmeye yönelik stratejilere rehberlik eder.

Cistanche tubulosa'nın faydaları-Antitümör
Sonuçlar
STEAP1, tedaviye dirençli mCRPC dokularında geniş çapta eksprese edilir
We first set out to determine the pattern and extent of STEAP1 expression relative to PSMA in advanced metastatic prostate cancer. We performed immunohistochemical (IHC) staining on a duplicate set of tissue microarrays consisting of 121 metastatic tumors (each with up to three cores represented) collected from 44 men with lethal mCRPC patients collected by rapid autopsy between the years 2010 and 2017 through the University of Washington Tumor Acquisition Necropsy Program32 (Fig. 1a). Plasma membrane staining for STEAP1 and PSMA in each tissue was scored by a research pathologist and semiquantitative H-scores were determined based on the staining intensity (Supple mentary Fig. 1a) multiplied by the percentage of cancer cells staining at each intensity (Supplementary Fig. 1b). By implementing a minimal staining threshold with an H-score cut-off of 30, we found that 87.7% of evaluable matched mCRPC tissues (100 of 114) demonstrated staining for STEAP1 compared to only 60.5% (69 of 114) for PSMA (Fig. 1b). In addition, 28.1% of mCRPC tissues (32 of 114) showed STEAP1 but not PSMA staining (Fig. 1b, c) whereas only 0.9% (one of 114) exhibited PSMA but not STEAP1 staining. Based on these results, we used a linear mixed statistical model to determine that the odds of non-zero (H-score >{{0}}) boyama, STEAP1 için PSMA'ya göre 22-kat (%95 GA 6-173) daha yüksekti ve H-puanı olasılığı 3'ten büyük veya eşit{{ 27}}, STEAP1 için PSMA'ya göre 84-kat (%95 GA 30-317) daha yüksektir. Kemikteki ortalama STEAP1 H-skoru (193; %95 CI 171 ila 215) lenf nodu metastazlarından önemli ölçüde daha yüksekti (fark −48; %95 CI −21 ila −76; p < 0.001) ve visseral metastazlardan önemli ölçüde daha yüksek (fark -59; %95 GA -42 ila -77; p < 0,001). Lenf nodu metastazında ortalama STEAP1 H skoru arasında viseral metastazlarla karşılaştırıldığında anlamlı bir fark yoktu (fark 11; %95 CI -16 ila 39; p=0.4) (Ek Şekil 1c). Ayrıca mCRPC biyopsilerinde intratumoral PSMA heterojenitesine ilişkin yakın tarihli bir raporla tutarlı olan çekirdekler içinde PSMA'nın heterojen ekspresyonuna sahip birkaç vakayı da gözlemledik (Şekil 1d). Ortalama H-skoru eşiği 30'dan büyük veya ona eşit olan hasta düzeyinde analiz ve McNemar testi, değerlendirilebilir hastaların %95'inin (44'ün 42'si) STEAP1 ekspresyonu olan tümörlere sahip olduğunu, %68'inin (44'ün 30'u) PSMA pozitif olduğunu ortaya çıkardı (Ek Şekil 1d). STEAP1 ve PSMA ekspresyonu ile ilişkili hastalar arası ve hasta içi heterojenlik modellerini incelemek için hipergeometrik, Simpson ve Shannon çeşitlilik puanlarını değerlendirmek üzere STEAP1 ve PSMA H-puanlarını kullandık. Tüm metastatik bölgelerde (yüksek STEAP1) STEAP1 ekspresyonu gösteren hastaların% 68'i (30/44) ve STEAP1 ekspresyonu olan ve olmayan metastatik bölgeleri gösteren% 32 (14/44) hasta ile iki STEAP1 ekspresyonu modeli (Şekil 1e) gözlemledik. (heterojen STEAP1). Tüm metastatik dokuların STEAP1 ekspresyonundan yoksun olduğu hiçbir hasta tanımlanmadı. Aynı kohorttaki PSMA ekspresyonu için benzer bir analiz, hastaların %45'inde (20/44) yüksek PSMA ekspresyonu olduğunu, %32'sinde (14/44) heterojen PSMA ekspresyonu olduğunu ve %23'ünde (10/44) PSMA ekspresyonu olmadığını ortaya çıkardı. AR ve IHC tarafından değerlendirilen nöroendokrin marker sinaptofizin (SYP) ekspresyonu kullanılarak mCRPC dokularının moleküler alt sınıflandırmasına dayanarak, yüksek veya heterojen STEAP1 ve PSMA ekspresyonu olan hastaların çoğunda AR-pozitif prostat kanseri (AR+/SYP- veya AR+/SYP+) bulunurken, bu hastalarda AR+/SYP- veya AR+/SYP+ bulunur. PSMA ekspresyonu olmayan hastalarda AR-null prostat kanseri (AR-/SYP+ veya AR-/SYP-) vardı. STEAP1 ve AR'nin ekspresyonu arasında (p <0.001), STEAP1'in bir androjen olduğu göz önüne alındığında beklenen doku mikrodizisinde (Ek Şekil 2a, b) temsil edilen vakalarda rastgele etkiye sahip uygun bir doğrusal karışık model ile pozitif bir korelasyon belirledik. -düzenlenmiş gen33,34. Buna karşılık, STEAP1 ve SYP'nin ifadesi arasında olumsuz bir eğilim takdir edildi (Ek Şekil 2c). Bu bulgular, PSMA35 gibi, STEAP1 ekspresyonunun da prostat kanserinin nöroendokrin transdiferansiasyonuyla kaybolabileceğini düşündürmektedir.

Fig. 1 | Comparative analysis of STEAP1 and PSMA in lethal, metastatic castration-resistant prostate cancer (mCRPC). a Characteristics of the mCRPC tissues represented on University of Washington Tissue Acquisition Necropsy Tissue Microarray 92 (UW TAN TMA92). b Contingency table showing the frequency of mCRPC tissues with STEAP1 or PSMA IHC staining above or below an H-score threshold of 30. Micrographs of select mCRPC tissues after STEAP1 and PSMA IHC staining to highlight the (c) absence of PSMA but the presence of STEAP1 expression and (d) intratumoral heterogeneity of PSMA expression but not STEAP1. Scale bars = 50 µm. For panels (c, d) n = 332 mCRPC cores were immunostained for STEAP1 and PSMA. e Dot and box plot showing the distribution of STEAP1 (top) and PSMA (bottom) H-scores in 44 patients from the UW TAN TMA92 cohort. Each dot represents a tumor specimen/core (n = 319 cores for PSMA and 333 cores for STEAP1) and the color indicates the molecular subtype: AR+/SYP+ (red), AR+/SYP− (green), AR−/SYP+ (yellow) and AR−/SYP− (purple). Gray rectangles show interquartile ranges spanning the 25th to the 75th percentiles of PSMA H-scores from each patient. Bar plots (on the right) summarize the frequencies of patients classified based on STEAP1 and PSMA expression as no expression (all cores with H-score ≤30, light grey), heterogeneous expression (at least one core with H-score ≤30 and H-score >30, mid grey) and high expression (all cores with H-scores >30, koyu gri). Kaynak verileri Kaynak Veri dosyasında sağlanır.
GeliştirmeGüçlü, antijene spesifik bir STEAP1 CAR'ın seçeneği
STEAP1'in son aşamadaki mCRPC'deki yaygın ifadesi ve kanserin ilerlemesinde bildirilen işlevsel rolü göz önüne alındığında27,36,37, daha sonra lentiviral STEAP1-'e özgü ikinci nesil CAR tasarlamaya başladık. Hematopoietik kök hücre gen terapisi39 için yaygın olarak kullanılan pCCL-c-MNDU3-X lentiviral omurgasını38 kullandık ve dahili MNDU3 promotörü tarafından tahrik edilen T hücrelerinde CAR ekspresyonunun, bir EFS destekleyicisi40. Bir 4-1BB ortak uyarıcı alanı, T hücresi hafıza oluşumu ve uzun süreli kalıcılığıyla olan ilişkisi nedeniyle tercih edildi41 ve ikinci nesil 4-1BB için antijen eşiğini azalttığı gösterildiği için bir CD28 zar ötesi alanı tanıtıldı CAR T hücresi aktivasyonu42. Bir faz I klinik denemesinden sonra gelişimi durdurulan STEAP1'i hedefleyen bir ADC olan vandor tuzumab vedotin'den türetilen tamamen insanlaştırılmış scFv'yi dahil ettik28. Bu scFv, orijinal olarak Agensys, Inc. tarafından geliştirilen ve hücre bazlı bağlanma analizlerinde43 1 nM afinite gösteren fare monoklonal antikorunun (mAb 120.545) insanlaştırılmış bir varyantıdır. CAR etkinliğini potansiyel olarak ayarlamak için, kısa (IgG4 menteşe), orta (IgG4 menteşe-CH3) ve uzun (IgG4 menteşe-CH2- CH3) dahil olmak üzere üç farklı menteşe/ara parçası uzunluğu uyguladık. Uzun aralayıcı, Fc-gamma reseptör bağlanmasını ve uzun aralayıcı CAR T hücrelerinin immün yetmezlikli farelere adaptif transferi ile ortaya çıkan aktivasyonla indüklenen hücre ölümünü önlemek için CH2 alanında daha önce açıklanan 4/2- NQ mutasyonları44 ile tasarlandı. Üç aday CAR, aynı zamanda bir transdüksiyon işaretçisi olarak kesik epidermal büyüme faktörü reseptörünü (EGFRt) birlikte ifade eden lentiviral vektöre (Şekil 2a) klonlandı. Lentivirüsler oluşturuldu ve ferezden toplanan insan donör periferik kan mononükleer hücrelerinden (PBMC'ler) zenginleştirilmiş insan CD4 ve CD8 T hücrelerinin transdüksiyonu için kullanıldı. Genişletilmiş CD4 ve CD8 CAR T hücreleri immünofenotiplendi (Ek Şekil 3a) ve fonksiyonel aktivitelerini değerlendirmek için normal bir CD4 / CD8 oranına sahip tanımlanmış bir kompozisyonun hücre ürünleri halinde yeniden oluşturuldu. STEAP1 ekspresyonunu izojenik bir şekilde kontrol etmek için, doğal STEAP1 ekspresyonunu gösteren ve CRISPR/Cas9 genom düzenlemesi ile STEAP1 nakavtını (ko) gerçekleştiren 22Rv1 insan prostat kanseri hücre hattına odaklandık. Daha sonra, STEAP1 eksprese eden bir lentivirüs ile transdüksiyon yoluyla 22Rv1 STEAP1 ko'dan bir STEAP1 kurtarma hattı oluşturduk (Şekil 2b). Bu çizgiler daha sonra üç kısa, orta ve uzun aralayıcı STEAP1 CAR T hücresini, T hücresi aktivasyonunun bir göstergesi olarak interferon-gamma (IFN-) salınımının okunmasıyla ortak kültür analizlerinde taramak için kullanıldı. Yalnızca uzun aralayıcı STEAP1 CAR T hücreleri (bundan sonra STEAP1-BBζ CAR T hücreleri olarak anılacaktır) beklenen antijene özgü IFN salınım modelini gösterirken, kısa ve orta ayırıcı STEAP1 CAR T hücreleri göstermedi (Şekil 2c). , Ek Şekil 3b, c). Ayrıca STEAP1-BBζ CAR T hücreleri, transdüksiyona tabi tutulmamış T hücrelerine kıyasla 22Rv1 hücrelerinin önemli ölçüde doza bağımlı sitolizi gösterdi (Şekil 2d) ve 22Rv1 STEAP1 ko hücrelerinin göreceli olarak korunduğunu gösterdi (Şekil 2e). Daha sonra, doğal STEAP1 ekspresyonu olmayan ancak lentiviral transdüksiyon yoluyla STEAP1'i (DU145 STEAP1) eksprese edecek şekilde tasarlanan DU145 insan prostat kanseri hücre hattında benzer çalışmalar gerçekleştirildi (Ek Şekil 4a). Bu ortamda, STEAP1-BBζ CAR T hücresi aktivasyonu, ana DU145 hücreleri değil, yalnızca DU145 STEAP1 hücreleri içeren ortak kültürlerde gözlendi (Ek Şekil 4b). Sitolitik aktivite yalnızca STEAP1-BBζ CAR T hücreleriyle takdir edildi ve DU145 STEAP1 hücreleriyle ortak kültürlerde transdüksiyona tabi tutulmamış T hücreleriyle değerlendirilmedi (Ek Şekil 4c). Daha sonra doğal STEAP1 ekspresyonunu immünoblot analizi ile karakterize etmek için daha büyük bir insan prostat kanseri hücre dizisi panelini analiz ettik. Bilinen AR ekspresyonu/aktivitesine (LNCaP, 22Rv1, VCaP ve LNCaP95) sahip hücre çizgileri, değişen seviyelerde STEAP1 ifadesi gösterirken, AR-null hücre çizgileri (PC3, DU145, MSKCC EF1 ve NCI-H660) eksprese etmiyor gibi görünüyor tespit edilebilir STEAP1 seviyeleri (Şekil 2f). IFN salınımına dayalı antijene spesifik aktivasyonlarını daha da doğrulamak için bu hatlarla STEAP1-BBζ CAR T'nin ortak kültürlerini gerçekleştirmeye devam ettik (Şekil 2g). Bununla birlikte, belirgin bir STEAP1 protein ifadesi göstermeyen PC3 hattının (Şekil 2f), STEAP1-BBζ CAR T hücrelerinin önemli ölçüde aktivasyonunu indüklediği yönünde uyumsuz bir bulgu gözlemledik. Önceki literatür STEAP1'in PC3 hücre hattında düşük seviyelerde eksprese edildiğini ileri sürmüştür45. Aslında, uzun süreli immünoblot maruziyeti, STEAP1'in çok düşük ekspresyonunun varlığını düşündüren bir bant ortaya çıkardı (Şekil 2h). STEAP1-BBζ CAR T hücresi aktivasyonunun PC3 hücrelerindeki bu küçük STEAP1 ifadesinden kaynaklanıp kaynaklanmadığını doğrulamak için üç PC3 STEAP1 ko alt çizgisi oluşturduk (Şekil 2h) ve tekrar STEAP{{133} ile ortak kültürler gerçekleştirdik }BBζ CAR T hücreleri. PC3 hattındaki STEAP1 ko, STEAP1-BBζ CAR T hücresi aktivasyonunun iptal edilmesine yol açtı (Şekil 2i), bu da özgüllüğü daha da doğruladı ve STEAP1-BBζ CAR T hücrelerinin düşük sıcaklıklara duyarlılığına dair kanıt sağladı antijen yoğunluğu koşulları.
STEAP1-BBζ CAR'ın fare Steap1 ve insan STEAP1B ile çapraz reaktivitesinin olmaması

cistanche takviyesi faydaları-bağışıklığı artırır
Vandor tuzumab vedotinin anti-insan özgüllüğü ile tutarlı olarak, STEAP1-BBζ CAR T hücreleri fare Steap1 ile çapraz reaktivite göstermedi (Ek Şekil 4a, d, e). Bununla birlikte, bunu, STEAP1-BBζ CAR T hücreleri tarafından epitop tanınması için hangi ECD'lerin kritik olduğunu belirlemek üzere fare Steap1 (Ek Şekil 4f) üzerinde üç insan STEAP1 hücre dışı alanını (ECD'ler) ayrı ayrı yeniden oluşturmak için bir fırsat olarak kullandık. Fare ECD'lerinin insan ECD'leriyle tek tek değiştirilmesiyle fare Steap1'i eksprese etmek üzere tasarlanmış STEAP1-BBζ CAR T hücreleri ve DU145 hücreleriyle ortak kültür deneyleri yapıldı. İnsan STEAP1 ECD2'sinin, ancak ECD1 veya ECD3'ün STEAP1-BBζ CAR T hücre aktivasyonu ile ilişkili olduğunu bulduk (Ek Şekil 4g). İlginç bir şekilde, insan STEAP1 ve fare Steap1 ECD2'si %93,9 (31/33 amino asit) homoloji gösterdi (Ek Şekil 4h), bu da insan STEAP1'in Q198 ve/veya I209'unun STEAP{30}}BBζ tarafından üretken tanınma açısından kritik olduğunu gösterir. CAR T hücreleri. Q198'in, kriyojenik elektron mikroskobu22 tarafından çözümlenen yeni bir yapıya dayanan bir etkileşim sıcak noktasının parçası olarak 120.545'in Fab'ı ile etkileşime girdiği gösterilmiştir. İnsan STEAP protein ailesinden STEAP1B, STEAP145 ile en büyük homolojiye sahiptir. Hepsi insan STEAP1 ECD2'nin amino asit dizisinin tamamen korunduğunu gösteren üç STEAP1B transkripti tanımlanmıştır (Ek Şekil 5a). Konsensüs membran topolojisi tahmin algoritması TOPCONS46, ECD2 alan dizilerinin üç STEAP1B protein izoformunda (Ek Şekil 5b) hücre dışı olduğunu öngördü, ancak beş topoloji tahmin modeli arasında fikir birliği olmaması nedeniyle hSTEAP1 ile karşılaştırıldığında STEAP1B için düşük güvenilirlik puanları olmasına rağmen TOPCONS tarafından kullanılan (OCTOPUS, Philius, PolyPhobius, SCAMPI ve SPOCTOPUS) (Ek Şekil 5c). Başka bir in silico gizli Markov modeline dayalı topoloji tahmin aracı TMHMM47 kullanılarak yapılan önceki analiz, STEAP1B protein izoformları 1 ve 245'te bu dizinin hücre dışı yerine hücre içi olabileceğini de öne sürmüştü. Bununla birlikte, STEAP1B'nin kristal yapısının bunu doğrudan doğruladığı henüz belirlenmedi. bu tahminler. STEAP1- BBζ CAR T hücrelerinin de STEAP1B'ye karşı reaktif olup olmadığını işlevsel olarak değerlendirmek için, STEAP1B'nin üç izoformunun her birini ifade edecek şekilde tasarlanmış DU145 hatlarını kullanarak ortak kültürler gerçekleştirdik. STEAP1-BBζ CAR T hücresi aktivasyonunun kanıtını tespit edemedik (Ek Şekil 5d), bu da STEAP1-BBζ CAR T hücreleri tarafından tanınan STEAP1 epitopunun bir ektodomain'in parçası olarak sunulamayabileceğini öne sürüyor Görünür dizi homolojisine rağmen STEAP1B tarafından.
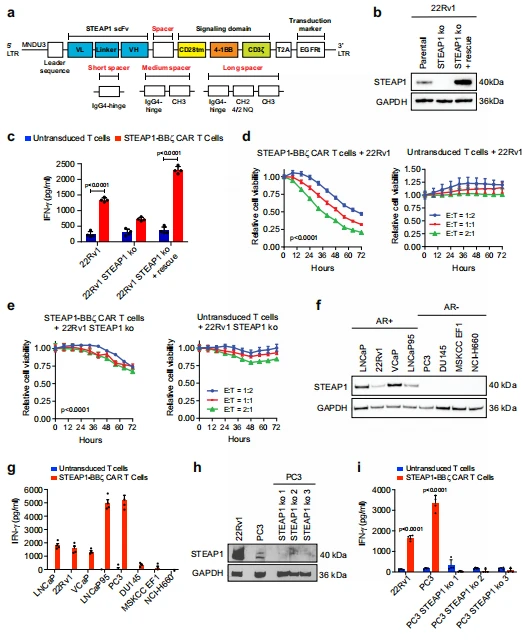
Şekil 2|STEAP1 CAR T hücresi tedavisine yönelik bir ipucu belirlemek amacıyla ikinci nesil 4-1BB kimerik antijen reseptörlerinin (CAR'lar) taranması. Lentiviral STEAP1 CAR yapısının şeması ve kısa, orta ve uzun aralayıcılara dayalı varyasyon. LTR uzun terminal tekrarı, MNDU3 Moloney murin lösemi virüsü U3 bölgesi, scFv tek zincirli değişken fragman, VL değişken hafif zincir, VH değişken ağır zincir, tm transmembran, EGFRt kesik epidermal büyüme faktörü reseptörü, 4/2 NQ {{1{{28 }}}} Fc-gama reseptörlerine bağlanmayı önlemek için CH2 alanı mutasyonları. b 22Rv1 ana hücrelerinde, STEAP1 nakavt (ko) hücrelerinde ve STEAP1'in kurtarılmasıyla STEAP1 ko hücrelerinde STEAP1'in immünoblotları. c IFN-enzime bağlı immünosorbent tahlili (ELISA), transdüksiyona tabi tutulmamış T hücrelerinin veya STEAP1-BBζ CAR T hücrelerinin, 24 saatte 1:1 oranında 22Rv1 alt dizilerinin her biri ile ortak kültürlerinden elde edilir (p < 0.001). (d) 22Rv1 ve (e) 22Rv1 STEAP1 ko hedef hücrelerinin zaman içindeki göreceli hücre canlılığı, (sol) STEAP1-BBζ CAR T hücreleri (p < 0,001) veya ( sağda) değişken efektör-hedef (E: T) hücre oranlarında dönüştürülmemiş T hücreleri. f Androjen reseptörü (AR)-pozitif insan prostat kanseri hücre hatlarında STEAP1'in ekspresyonunu gösteren ancak AR-negatif prostat kanseri hücre hatlarında göstermeyen immünoblotlar. g IFN- 24 saatte 1:1 oranında (f)'deki insan prostat kanseri hücre dizilerinin her biri ile dönüştürülmemiş T hücrelerinin veya STEAP1- BBζ CAR T hücrelerinin ortak kültürlerinden ELISA ile nicelikselleştirme. h 22Rv1, PC3 ve PC3 STEAP1 ko alt hatlarında STEAP1 için immünoblotlar. I IFN-, transdüksiyona tabi tutulmamış T hücrelerinin veya STEAP1- BBζ CAR T hücrelerinin ortak kültürlerinden ELISA ile niceleme, (h)'deki her hücre çizgisi 24 saatte 1:1 oranında (p < 0,001). Paneller için (c–e, g ve i) koşul başına n=4 biyolojik kopya kullanılmıştır ve hata çubukları, SEM ile ortalamayı temsil etmektedir. Panel (b, f, h), n=3 biyolojik kopyayı temsil eden sonuçları görüntüler. GAPDH, protein yükleme kontrolü olarak kullanıldı. Paneller (c) ve (i) için Sidak'ın çoklu karşılaştırma testleri ile iki yönlü ANOVA kullanıldı. Panel (d) ve (e) için Tukey'in çoklu karşılaştırma testiyle iki yönlü ANOVA kullanıldı. Kaynak verileri Kaynak Veri dosyasında sağlanır.
Bir dizi donörde STEAP1-BBζ CAR T hücresi ürünlerinin karakterizasyonu
Daha sonra, sağlıklı donörlerden toplanan üç bağımsız periferik kan mononükleer hücre (PBMC'ler) setini kullanarak STEAP1-BBζ CAR T hücre ürünlerinin genişleme, transdüksiyon verimliliği ve immünofenotipinin profilini çıkardık. Kültürden sonraki 11 gün içinde genellikle STEAP1-BBζ CAR T hücrelerinin 20- ile 40-kat arası genişlediğini gözlemledik (Ek Şekil 6a). EGFRt+ CD8 T hücrelerinin yüzdesi %24,3 ila 54,2 arasında değişirken, STEAP1-BBζ CAR T hücresi ürünlerimizde EGFRt+ CD4 T hücrelerinin yüzdesi daha yüksekti ve %60,1 ila 74,9 arasında değişiyordu (Ek Şekil 6b). Dönüştürülmemiş ve STEAP1- BBζ CAR T hücresi alt kümelerinde T hücresi tükenme belirteçleri PD-1 ve LAG-3'nin ifadesini inceledik ve ifadede önemli bir artış gözlemlemedik (Ek Şekil 6c). ). Bu bulgu, STEAP1-BBζ CAR'ın tonik sinyalinin düşük olduğunu veya yok olduğunu ileri sürdü; bu, yapısal CAR sinyallemesinin CAR T hücresi efektör fonksiyonunu olumsuz yönde etkileyebilmesi açısından cesaret vericiydi48. Hem kök hücre hafızası T hücresi (Tscm) hem de merkezi hafıza T hücresi (TCM) fenotipleri, in vivo49-51 sürekli çoğalmayı ve kalıcılığı teşvik ettikleri için CAR T hücre tedavisinin terapötik etkinliği ile ilişkilendirilmiştir. Dönüştürülmemiş ve STEAP1-BBζ CAR T hücresi alt kümelerinin immünofenotiplemesi, hücre ürünlerinin türetildiği donör PBMC'lerdeki T hücresi alt kümeleriyle karşılaştırıldığında daha yüksek Tscm hücresi frekansları gösterdi (Ek Şekil 6d). Bu etki muhtemelen T hücresi genişleme ortamına IL-7 ve/veya IL-15'nin eklenmesinden kaynaklanmaktadır çünkü bu sitokinlerin Tscm farklılaşmasını koruduğu ve güçlendirdiği gösterilmiştir51,52. Analizimiz aynı zamanda özellikle CD8 STEAP1-BBζ CAR T hücrelerinde Tcm popülasyonlarında bir zenginleşme olduğunu ortaya çıkardı (Ek Şekil 6e).
STEAP1-BBζ CAR T hücreleri, bağışıklık yetersizliği olan farelerde oluşturulan doğal STEAP1 ekspresyonu ile yaygın prostat kanseri modellerinde önemli antitümör etkileri göstermektedir

cistanche tubulosa-bağışıklık sistemini iyileştirir
İn vivo antitümör aktivitesine yönelik bir başlangıç taraması olarak, erkek NOD scid gama (NSG) farelerinde 22Rv1 deri altı ksenograft tümörleri belirledik. Tümörler yaklaşık 100 mm3'e büyüdüğünde fareler, 5 x 10⁶ transdüksiyona tabi tutulmamış T hücreleri veya STEAP1-BBζ CAR T hücrelerinden oluşan tek bir tümör içi enjeksiyonla tedavi edildi. STEAP1- BBζ CAR T hücreleriyle tümör içi tedavi, tedavinin 18. gününde istatistiksel olarak anlamlı olan önemli tümör büyümesi inhibisyonu ile ilişkilendirildi (Şekil 3a). Fareler 25. günde kurban edildi ve STEAP1-BBζ CAR T hücreleri ile tedavi edilen farelerden kalan tümörler, geniş nekrotik kalıntı alanları gösterdi ve canlı tümör bölgelerine CD3+ STEAP1-BBζ ile sızdı CAR T hücreleri (Ek Şekil 7a). STEAP1 ekspresyonu, tedavi grupları arasındaki tümörlerde korunmuştur (Ek Şekil 7b). Ateş böceği lusiferaz (Luc) ifadesini güçlendirmek için 22Rv1 hücrelerini lentivirüs ile dönüştürdük ve 106 22Rv1-fLuc hücreleri, erkek NSG farelerinin kuyruk damarlarına enjekte edildi. Metastatik kolonizasyon, iki hafta sonra canlı biyolüminesans görüntüleme (BLI) ile görselleştirildi; bu noktada farelere, 5 x 10⁶ transdüksiyona tabi tutulmamış T hücreleri veya STEAP1-BBζ CAR T hücrelerinin tek bir intravenöz enjeksiyonu uygulandı (Şekil 3b). . Seri BLI, transdüksiyona tabi tutulmamış T hücreleriyle tedavi edilen farelerde hastalığın hızlı ilerlediğini ortaya koyarken, STEAP1-BBζ CAR T hücreleri alan fareler, tümör ilerlemesinde (Şekil 3c, d) ve hayatta kalma süresinin uzamasında (31 güne karşı 97 gün) önemli bir gecikme gösterdi. , p=0.0018 log-sıra testi ile, Şekil 3e). Tedavi kolları arasında fare ağırlıklarında anlamlı bir fark yoktu (Ek Şekil 7c). Çalışmanın sonunda tümörlerin IHC boyanması, STEAP1 ekspresyonunda önemli bir azalma gösterdi (Ek Şekil 7d), bu da antijen kaçışının bir direnç mekanizması olduğunu gösterir. Bununla birlikte, morfolojik değişiklikleri, AR ve PSMA ekspresyonunun kaybını53 veya SYP ekspresyonunun kazanımını takdir etmediğimiz için bu, değişken bir prostat kanseri durumuna transdiferansiasyonun bir sonucu değildi (Ek Şekil 7d). STEAP1 kaybının prostat kanserindeki küresel etkisini araştırmak için, daha önce hazırladığımız izojenik 22Rv1 vahşi tip (wt), 22Rv1 STEAP1 ko ve 22Rv1 STEAP1 ko + kurtarma hücre hatlarının transkriptom profilini çıkardık (Şekil 2b). 22Rv1 STEAP1 ko hücrelerini ağırlıkça 22Rv1 hücreleriyle karşılaştıran diferansiyel gen ekspresyon analizi, önemli ölçüde aşağı regüle edilmiş ~1700 gen tanımladı (FDR 0,05'ten az veya eşit, kat değişimi<2) with STEAP1 knockout. Rescue of STEAP1 expression in the 22Rv1 STEAP1 ko cells revealed that ~600 genes were significantly upregulated (FDR ≤ 0.05, fold-change>2) STEAP1 eklentisi ile (Ek Şekil 8a). Gen Seti Zenginleştirme Analizi (GSEA), STEAP1 ekspresyonunun modülasyonuyla düzensiz olabilecek birkaç biyolojik yolu aday gösterdi. Bunlar arasında öne çıkanlar, STEAP1 nakavtıyla negatif olarak zenginleştirilen ve STEAP1'in geri eklenmesiyle kurtarılan Kreb döngüsü ve glikoliz dahil olmak üzere hücre döngüsü ilerlemesi ve çoklu metabolik süreçlerdi (Ek Şekil 8b). Doğrulanmış 31-gen hücre döngüsü ilerlemesi (CCP) imzasını54, STEAP1 nakavtıyla ilişkili CCP imzasında önemli ölçüde {{'ye yükselen −0,8 puanla önemli ölçüde aşağı regüle edildiğini gösteren verilerimize uyguladık. 14}}.5, STEAP1 ifadesinin kurtarılmasıyla (Ek Şekil 8c). Bu veriler, LNCaP prostat kanseri hücre hattında STEAP1'in yok edilmesinin, apoptozu37 indüklerken hücre canlılığını ve proliferasyonunu bozduğunu belirten önceki bir yayınla tutarlıdır. Ayrıca antijen işleme ve sunumunun, STEAP1 nakavtıyla en önemli ölçüde zenginleştirilmiş KEGG yollarından biri olduğunu da belirttik (Ek Şekil 8b). İmmünproteazom kompleksinin bir üyesi olan PSME1 (proteazom aktivatör alt birimi 1), majör doku uyumluluk kompleksi (MHC) sınıf I peptidi için kritik olan TAP1 (taşıyıcı 1, ATP bağlayıcı kaset alt aile üyesi) dahil olmak üzere genlerde önemli bir azalma gözlemledik. yükleme kompleksi ve MR1 (ana doku uyumluluk kompleksi, sınıf I ile ilişkili), HLA-DQ-B1 ve HLA-DQB2 (Ek Şekil 8d) gibi birkaç MHC sınıf I ve II geni. Ayrıca, transkriptom analizi ile antijen kaybı gösteren (Şekil 3c, Ek Şekil 7d) STEAP1- BBζ CAR T hücre terapisi ile tedavi edilen 22Rv1 yayılmış modellerden toplanan tümörleri de araştırdık. Diferansiyel gen ekspresyonu analizi ve bunu takip eden GSEA, STEAP1-BBζ CAR T hücre tedavisi ile tedavi edilen farelerdeki 22Rv1 metastatik tümörleri transdüksiyona tabi tutulmamış T hücreleri ile tedavi edilen farelerle karşılaştırarak MHC, sitotoksik lenfositler ve T hücresi aktivasyonuyla ilgili yollarda negatif zenginleşme gösterdi ( Ek Şekil 9a, b). Ayrıca MHC sınıf I ve II genlerinin ekspresyonunu spesifik olarak değerlendirdik ve STEAP1-BBζ CAR T hücre terapisi ile tedavi edilen 22Rv1 tümörlerinde belirgin aşağı regülasyonlarını gözlemledik (Ek Şekil 9c). Bu sonuç, bu tümörlerde IHC ile HLA-A, B, C boyamasında önemli bir azalma ile de doğrulandı (Ek Şekil 9d). Bu verilerin potansiyel anlamı, STEAP1-BBζ CAR T hücre terapisi ile tedavinin ve bunun sonucunda prostat kanserinde STEAP1 tümör antijen ekspresyonunun kaybının, antijen işleme ve sunumunun bozulması yoluyla daha fazla immünoterapi direncine yol açabileceğidir. Ayrıca erkek NSG farelerini kuyruk damarından enjeksiyon yoluyla C4-2B-fLuc hücreleriyle aşıladık. C4-2B, LNCaP55'in kastrasyona dirençli bir alt çizgisidir ve büyüme kinetiği tipik prostat kanseriyle daha uyumludur. Enjeksiyondan dört hafta sonra, metastatik kolonizasyon BLI ile doğrulandı ve fareler, 5 x 10⁶ transdüksiyona tabi tutulmamış T hücreleri veya STEAP1-BBζ CAR T hücrelerinin tek bir intravenöz enjeksiyonu ile tedavi edildi (Şekil 3b). Seri BLI, tedaviden sonraki beş hafta içinde STEAP1-BBζ CAR T hücreleri alan tüm farelerde tam bir yanıt gösterdi (Şekil 3f, g). Dönüştürülmemiş T hücresi tedavi grubunda artan kilo kaybı eğilimi belirledik (Ek Şekil 10a), ancak bu istatistiksel olarak anlamlı değildi. STEAP1-BBζ CAR T hücreleri ile tedavi edilen farelerin otopsisi, makroskobik bir hastalık göstermedi ve organların ex vivo BLI'sı herhangi bir sinyal ortaya çıkarmadı (Ek Şekil 10b), bu farelerin muhtemelen iyileştiğini düşündürmektedir. Deneyin sonunda STEAP1-BBζ CAR T hücrelerinin çevresel kalıcılığını, saptanabilir CD3+ EGFRt+ splenositlerin varlığına dayanarak belirledik (Şekil 3h).
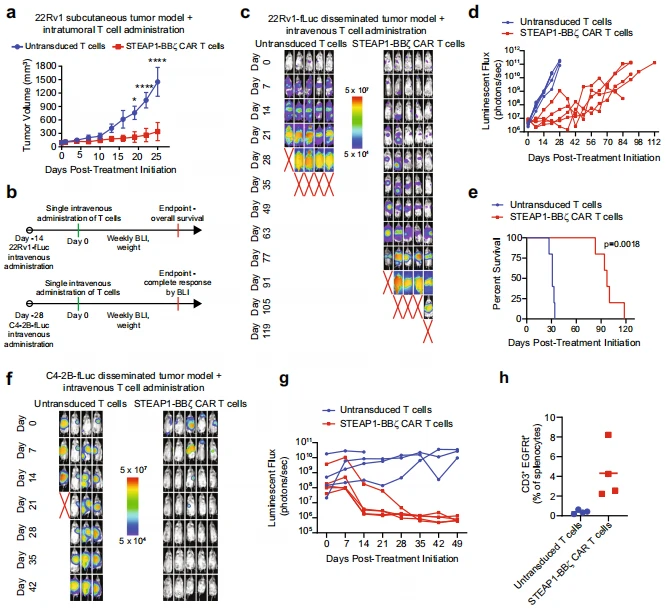
Şekil 3|Doğal STEAP1 ekspresyonuna sahip prostat kanseri modellerinde STEAP1-BBζ CAR T hücre tedavisinin in vivo antitümör aktivitesi. a NSG farelerinde 22Rv1 deri altı tümörlerinin hacimleri (transdüksiyona tabi tutulmamış T hücreleri grubu için n=4 ve STEAP1-BBζ CAR T hücreleri grubu için n=5) 5'lik tek bir tümör içi enjeksiyondan sonra zaman içinde × 106 transdüksiyona tabi tutulmamış T hücresi veya normal CD4/CD8 oranlarında STEAP{{10}}BBζ CAR T hücresi. 20. ve 25. günlerde p < 0.0001. Çubuklar SEM ile ortalamayı temsil eder. b 22Rv1 (üstte) ve C4-2B (altta) yayılmış modeller için tümör tehdidi deneylerinin şeması. Luc ateşböceği lusiferazı, BLI biyolüminesans görüntüleme. c 22Rv1-fLuc metastazları aşılanmış ve normal CD4/'de 5 x 10⁶ dönüştürülmemiş T hücresi veya STEAP1-BBζ CAR T hücresinden oluşan tek bir intravenöz enjeksiyonla tedavi edilen NSG farelerinin seri canlı biyolüminesans görüntülemesi (BLI) 0. günde CD8 oranları. Kırmızı X, ölen fareleri belirtir. Bir parlaklık ölçeği gösterilir. d (c)'deki her farenin canlı BLI'sından zaman içindeki toplam akışın miktarını gösteren çizim. e Log-rank (Mantel-Cox) testi ile belirlenen istatistiksel anlamlılığa sahip (c)'deki farelerin Kaplan-Meier hayatta kalma eğrileri. Paneller için (c-e) koşul başına n=5 fare kullanıldı. f C4-2B metastazları aşılanmış ve günde normal CD4/CD8 oranlarında 5 x 10⁶ dönüştürülmemiş T hücresi veya STEAP1-BBζ CAR T hücresinden oluşan tek bir intravenöz enjeksiyonla tedavi edilen NSG farelerinin seri canlı BLI'sı 0. Kırmızı X, ölen fareleri belirtir. Bir parlaklık ölçeği gösterilir. g (f)'deki her farenin canlı BLI'sından zaman içindeki toplam akışın miktarını gösteren çizim. Paneller için (f, g) transdüksiyona tabi tutulmamış T hücreleri grubunda n=4 fare ve STEAP1-BBζ CAR T hücreleri grubunda n=5 fare kullanıldı. h Sonunda STEAP1-BBζ CAR T hücreleri (n=4) ile tedavi edilen farelerin splenositlerinden akış sitometrisi ile CD3+ EGFRt+ STEAP1-BBζ CAR T hücrelerinin miktarının belirlenmesi deneyin 49. gününde. Çubuklar ortalamayı temsil eder. Panel (a) için Sidak'ın çoklu karşılaştırma testiyle iki yönlü ANOVA kullanıldı. Kaynak verileri Kaynak Veri dosyasında sağlanır.
Fare içinde fare STEAP1 CAR T hücresi çalışmaları antitümör terapötik etkinliğini göstermektedir
PC3 hücre hattının çok düşük STEAP1 antijen yoğunluğu (~1500 molekül/hücre) bağlamında gözlemlenen STEAP1-BBζ CAR T hücrelerinin aktivasyonu ve sitolitik aktivitesi (Şekil 2g-i, Ek Şekil 11a, b) ) ve yayılmış bir PC3-fLuc tümör modelinde (Ek Şekil 11c-e) in vivo antitümör aktivitesinin kanıtı, hedef dışı tümör toksisiteleri potansiyeli hakkındaki endişeleri ortaya koydu. İzlenebilir bir model organizmadaki potansiyel toksisiteyi değerlendirmek için, insan STEAP1 geninin C57Bl/6 arka planındaki fare Steap1 gen lokusuna nakledildiği bir insan STEAP1 nakavt (hSTEAP1-KI) faresi ürettik ( Şekil 4a). Kuyruk DNA'sının polimeraz zincir reaksiyonu (PCR) ile gerçekleştirilen genotipleme ile bir fare kolonisi oluşturuldu (Şekil 4b). Hem homozigot hem de heterozigot hSTEAP1-KI fareleri, yabani tip yavrularla karşılaştırıldığında hiçbir belirgin fenotipik veya üreme anormalliği sergilemedi. Erkek ve dişi heterozigot hSTEAP1-KI (hSTEAP1-KI/ +) fareleri üzerinde kantitatif ters transkripsiyon PCR'ye (qRT-PCR) dayalı insan STEAP1 ekspresyonu için bir doku araştırması gerçekleştirildi ve en büyük göreceli ifadeyi ortaya çıkardı prostatta, bunu uterus ve adrenal bezde takip eder (Şekil 4c). Erkek hSTEAP1-KI/ + prostat ve adrenal bezlerinin STEAP1 IHC ile yapılan yerinde analizi, insan STEAP1 ekspresyonunun prostatın luminal epitel hücreleriyle (Şekil 4d) ve adrenal korteksteki ekspresyonla (Şekil 4e) sınırlı olduğunu ortaya çıkardı. . STEAP1 CAR'ın fareleştirilmiş bir versiyonu, STEAP1-mBBζ CAR olarak adlandırılır; burada scFv ve IgG4 menteşe-CH2-CH3 ayırıcısı muhafaza edilir ancak CD28 zar ötesi alanı, 4-1BB ortak uyarıcı alanı ve CD3ζ aktivasyon alanı, fare ortologlarıyla değiştirildi ve bir gammaretroviral yapıya klonlandı (Şekil 4f). Ek olarak, insan EGFRt transdüksiyon işaretleyicisi, potansiyel immünojeniteyi en aza indirmek için kesik bir fare CD19'u (mCD19t) ile değiştirildi. Fare splenositlerinden zenginleştirilmiş T hücrelerinin etkili retroviral transdüksiyonunu doğruladık (Şekil 4g) ve fare STEAP1-mBBζ CAR T hücrelerinin, insan STEAP1'i eksprese etmek üzere tasarlanmış RM9 fare prostat kanseri hücre hattının56 sitolizini indükleme kapasitesini gösterdik. (RM9- hSTEAP1) lentiviral transdüksiyonla (Şekil 4h). Fare STEAP1-mBBζ CAR T hücrelerinin in vivo etkinliği, NSG farelerinde yayılmış bir RM9-STEAP1-fLuc tümör modelinde doğrulandı (Ek Şekil 12a). RM9-STEAP1-fLuc hücrelerinin kuyruk damarına enjeksiyonundan bir hafta sonra fareler, kuyruk damarı enjeksiyonu yoluyla 5 x 10⁶ transdüksiyona tabi tutulmamış fare T hücreleri veya fare STEAP1-mBBζ CAR T hücreleri ile tedavi edildi . Transdüksiyona tabi tutulmamış fare T hücreleri alan fareler, kontrolsüz hastalık ilerlemesi sergilerken, STEAP1-mBBζ CAR T hücreleriyle tedavi edilen fareler, hastalığın hızlı gerilemesini tekdüze bir şekilde sergiledi ve bunu on gün sonra müteakip nüksetme izledi (Ek Şekil 12b, c). STEAP1-mBBζ CAR T hücre tedavisi, istatistiksel olarak anlamlı bir hayatta kalma faydası ile ilişkilendirildi (22 güne karşı 12 gün, log-sıra testi ile p=0.0039, Ek Şekil 12d). Ölümden önce tümör yükü arttığından her iki tedavi grubunda da kilo kaybı belirgindi (Ek Şekil 12e, f). Otopsi sırasında toplanan fare splenositlerinin analizi, STEAP1-mBBζ CAR T hücrelerinin periferik kalıcılığını gösterdi ve mCD3+ mCD19t+ hücrelerinin evlat edinme transferinden sonra 24 güne kadar saptanması (Ek Şekil 12g). Her iki tedavi grubundaki farelerden akciğerler toplandı ve STEAP1 IHC, STEAP1-mBBζ CAR T hücreleriyle tedavi edilen farelerin akciğer metastazlarında STEAP1 ekspresyonunda kayıp gösterdi (Ek Şekil 12h). Daha sonra klonal RM9-STEAP1-fLuc çizgilerini genişleterek gözlemlenen tümör antijen kaçışının STEAP1 ifadesinde önceden var olan heterojenliğin bir sonucu olup olmadığını belirledik. Deney, NSG farelerinde klonal, yayılmış bir RM9-STEAP1- fLuc tümör modeliyle tekrarlandı (Ek Şekil 13a). Bu bağlamda, STEAP1-mBBζ CAR T hücreleriyle tedavi edilen fareler, hızlı ve kalıcı bir tam yanıt gösterdi (Ek Şekil 13b-d). Bu bulgular, STEAP1-mBBζ CAR T hücrelerinin STEAP1+ prostat kanserini yok etme potansiyelini vurguluyor ve ayrıca STEAP1'in heterojen olduğu ilerlemiş prostat kanseri hastalarının alt gruplarında direncin üstesinden gelmek için ek terapötik stratejilere ihtiyaç duyulabileceğini öne sürüyor. ifade mevcuttur (Şekil 1e).

erkekler için cistanche faydaları-bağışıklık sistemini güçlendirir
Cistanche Enhance Immunity ürünlerini görüntülemek için buraya tıklayın
【Daha fazlasını isteyin】 E-posta:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
STEAP1 CAR T hücre tedavisi insanlaştırılmış bir STEAP1 fare modelinde güvenlidir
STEAP1-mBBζ CAR T hücre tedavisinin hem klinik öncesi güvenliğini hem de etkinliğini araştırmak için, erkek heterozigot hSTEAP1-KI farelerini genetik olmayan, klonal olmayan RM9-STEAP{{4} ile aşıladık }fLuc hücreleri kuyruk damarı enjeksiyonu ile (Şekil 5a). Yaklaşık bir hafta sonra metastatik kolonizasyonun BLI ile doğrulanmasının ardından farelere intraperitoneal enjeksiyonla 100 mg/kg ön koşullandırma siklofosfamid verildi57. Bir gün sonra fareler, kuyruk damarından enjeksiyon yoluyla 5 x 10⁶ transdüksiyona tabi tutulmamış fare T hücreleri veya fare STEAP1-mBBζ CAR T hücreleri ile tedaviye randomize edildi. Fare STEAP1-mBBζ CAR T hücreleri alan tüm fareler, BLI'ye göre tedavinin başlamasının ilk haftasında tümör yükünde bir azalma gösterdi (Şekil 5b, c). Gözlemlenen yanıt kısa ömürlü oldu ancak hayatta kalma süresinin mütevazı bir uzamasına yol açtı (21 güne karşılık 12 gün, log-sıra testiyle p=0.0138, Şekil 5d) - klonal olmayan RM'den elde edilen bulgulara benzer NSG farelerinde 9-STEAP1-fLuc deneyleri (Ek Şekil 12d). Antitümör etkinliğine dair açık kanıtların gözlemlendiği bu doz seviyesinde, özellikle fare STEAP1-mBBζ CAR T hücre tedavisiyle ilişkilendirilen ciddi toksisiteler veya erken ölümler görülmedi. Kilo kaybı, artan tümör yükü ile ilişkiliydi ancak her iki tedavi kolunda da ortaktı (Şekil 5e, f). STEAP1-mBBζ CAR T hücre tedavisinin potansiyel toksisitesini daha fazla değerlendirmek için benzer bir deney, RM9-hSTEAP1 tümörleri taşıyan ve tümör içermeyen heterozigot hSTEAP1-KI farelerinde paralel olarak gerçekleştirildi. Dönüştürülmemiş T hücreleri veya STEAP1- mBBζ CAR T hücreleri ile tedavi edilen tümör taşımayan fareler, hayatta kalma (Ek Şekil 14a) veya vücut ağırlığı kaybı dahil olmak üzere büyük toksisiteler (Ek Şekil 14b) açısından herhangi bir farklılık göstermedi. STEAP1-BBζ CAR, potansiyel olarak immünojenik olabilecek değiştirilmiş bir IgG4 aralayıcıdan oluştuğundan, bu deneyde farelerden retroorbital kanamalar toplayarak bir fare anti-insan antikoru (MAHA) tepkisini değerlendirdik. STEAP1-BBζ CAR T hücreleriyle tedaviden sonraki 8. günde farelerin serumunda hiçbir anti-insan IgG ve IgM antikoru tespit edilmedi (Ek Şekil 14c).
Önemli olarak, STEAP1-mBBζ CAR T hücreleriyle tedavi edilen heterozigot hSTEAP1-KI fareleri, belirgin bir doku bozulması veya prostatta CD3+ T hücrelerinin artan infiltrasyonunu göstermedi (Ek Şekil 15a, b). ) veya adrenal bez (Ek Şekil 15c, d), dönüştürülmemiş T hücreleri ile tedavi edilen muadillerine göre, hedef dışı tümör toksisitelerinin bulunmadığını gösterir. Deneyin sonunda toplanan akciğerler, transdüksiyona tabi tutulmamış fare T hücreleri ile tedavi edilen farelerde bölgesel heterojenite ile RM9-hSTEAP1 pulmoner metastazlarında insan STEAP1 ekspresyonunu gösterdi (Şekil 5g). Öte yandan, fare STEAP1-mBBζ CAR T hücreleriyle tedavi edilen farelerden alınan tümörler, yine insan STEAP1 ekspresyonunun olmadığını gösterdi (Şekil 5h). Fare STEAP1- mBBζ CAR T hücresi terapisinin ve insan STEAP1 antijen kaybının, RM9-hSTEAP1 tümörlerindeki antijen sunumunu da etkileyip etkilemediğini değerlendirmek için, fare beta-2-mikroglobulin (B2m) için IHC gerçekleştirdik ) MHC sınıf I moleküllerinin önemli bir bileşenidir. Fare STEAP1-mBBζ CAR T hücreleriyle tedaviden sonra, transdüksiyona tabi tutulmamış T hücrelerine (Ek Şekil 15e, f) kıyasla, 22Rv1 modelindeki bulgularımız ile tutarlı olarak, ilerleyici tümörlerde B2m ekspresyonunun önemli ölçüde aşağı regüle edildiğini gözlemledik.
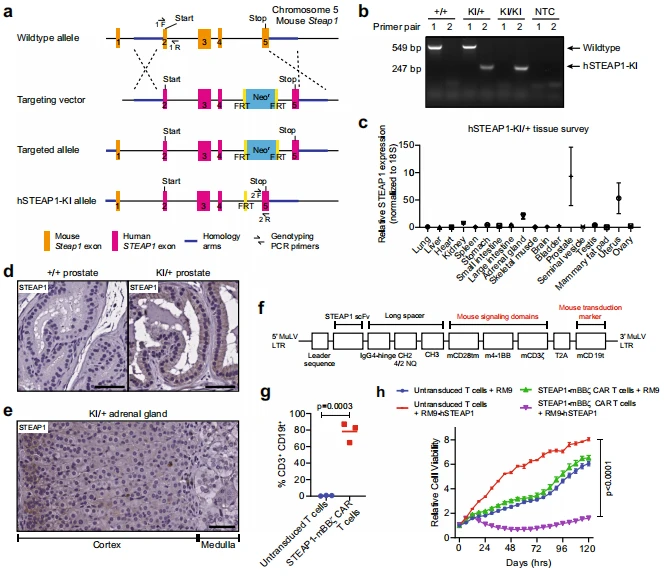
Şekil 4|İnsan STEAP1 devre dışı bırakılan (hSTEAP1-KI) fare modeli ve fareleştirilmiş STEAP1 CAR ile fare içinde fare sisteminin kurulması. İnsan STEAP1 eksonlarını C57Bl/6 arka planındaki fare Steap1 lokusuna 2-5 ekzonunu sokmak için bir hedefleme vektörü kullanan homolog rekombinasyon stratejisini gösteren şematik. FRT Flippase tanıma hedefi. b Yabani tip (+/+), heterozigot (KI/+) veya homozigot (KI/KI) farelerin kuyruk ucu genotiplemesinden, vahşi tip veya hSTEAP1-KI alellerinin bölümlerini çoğaltmayı amaçlayan primer çiftleri kullanılarak PCR ürünlerinin görselleştirilmesi . NTC boş şablon kontrolü. Biyolojik olarak bağımsız n=3 deneyden temsili jel görüntüsü. c insan STEAP1 ekspresyonu için qPCR, hSTEAP1-KI/+ farelerinden alınan dokular üzerinde yapılan bir araştırmada 18 S ekspresyonuna normalleştirildi. Cinsiyete özgü organlar için n=3 ve ortak organlar için n=6. Çubuklar SEM ile ortalamayı temsil eder. (D) (sol) +/+ ve (sağ) KI/+ farelerden alınan prostat dokularının ve (e) bir KI/+ faresinden alınan bir adrenal bezinin STEAP1 IHC boyamasının fotoğraf mikrografları. Ölçek çubukları=50 µm. Panel (d, e) için STEAP1 immün boyaması biyolojik olarak bağımsız n=3 numune üzerinde gerçekleştirildi. f Retroviral fareleştirilmiş STEAP1 CAR yapısının şeması. MuLV murin lösemi virüsü, mCD19t fare kesik CD19. g Akış sitometrisi (p {{40}}.0003) ile fare CD3+ CD19t+ hücrelerinin frekansına dayalı üç bağımsız deneyden aktive edilmiş fare T hücrelerinin retroviral transdüksiyonunun etkinliğinin niceliğinin belirlenmesi. h RM9 veya RM9-hSTEAP1 hedef hücrelerinin zaman içindeki bağıl hücre canlılığı, fare STEAP1-mBBζ CAR T hücreleri veya dönüştürülmemiş T hücreleri ile 1:1 oranında ortak kültür üzerine floresans canlı hücre görüntülemesi ile ölçülür (p < 0,0001). Koşul başına n=4 biyolojik kopya. Hata çubukları SEM ile ortalamayı temsil eder. Panel (g) için Welch düzeltmeli eşleştirilmemiş iki kuyruklu Öğrenci t testi kullanıldı. Panel (h)'de Sidak'ın çoklu karşılaştırma testiyle iki yönlü ANOVA kullanıldı. Kaynak verileri Kaynak Veri dosyasında sağlanır.
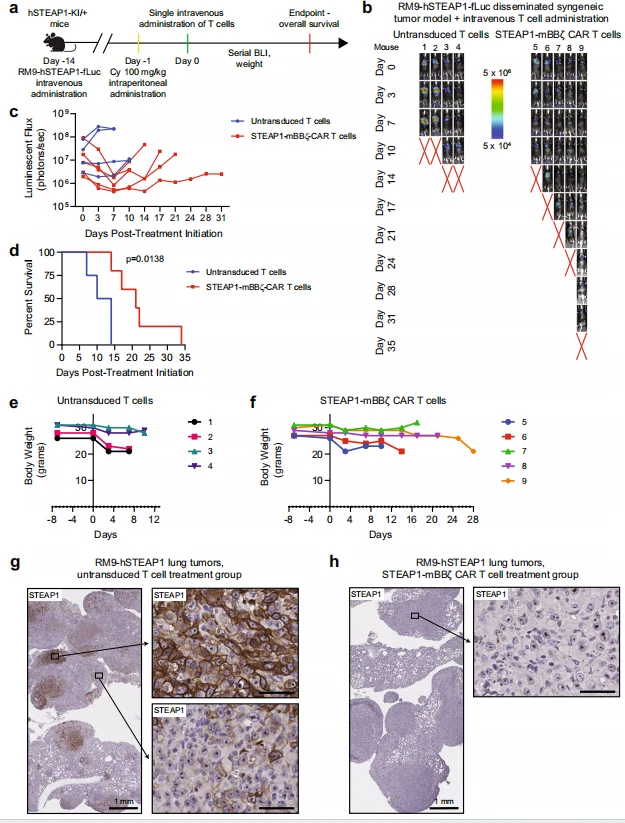
Şekil 5|Singeneik, yayılmış prostat kanseri taşıyan hSTEAP1-KI farelerinde fare STEAP1-mBBζ CAR T hücrelerinin etkinliğinin ve güvenliğinin belirlenmesi.
Kolajen bağlama alanı-IL-12 füzyon sitokini, gelişmiş T hücresi reseptör sinyali ve antijen sunumu yoluyla antitümör tepkilerini ortaya çıkarır
IL{{0}}, T hücresi yanıtlarını düzenleyen ve IFN- üretimine yol açan, p40 ve p35 alt birimlerinden oluşan bir heterodimerik sitokindir. Sistemik IL-12 uygulamasıyla ilişkili çarpıcı antitümör yanıtları çeşitli klinik öncesi modellerde gösterilmiştir58,59 ancak bu terapötik yaklaşımın kliniğe aktarılması doz sınırlayıcı toksisiteler ve etkisizlik60-63 nedeniyle durdurulmuştur. Bu sorunları aşmak için alternatif stratejiler, tümör mikro ortamının benzersiz özelliklerinden yararlanacak şekilde intratumoral dağıtım veya IL-12 füzyon proteinlerinin mühendisliği yoluyla IL{{10}}}'yi tümörlere lokalize etmeyi amaçlıyordu. Yakın zamanda açıklanan yaklaşımlardan biri, kollajen bağlama alanı (CBD, Şekil 6a) olarak görev yapan ve füzyon proteinlerinin, düzensiz tümör vaskülatürü64'te açığa çıkan kollajene bağlanmasını sağlayan von Willebrand faktör A3 alanına füzyondur. Sistemik CBD-IL-12 tedavisinin, geliştirilmiş IFN sinyali yoluyla immünolojik olarak "soğuk" fare meme kanseri ve melanom modellerinin tümör mikro ortamlarını yeniden şekillendirdiği ve anti-PD{{20}} ile işbirliği yaptığı gösterilmiştir. Tümörün yok edilmesini sağlamak için bağışıklık kontrol noktası inhibisyonu65. CBD-IL-12'nin prostat kanserini "soğuk"tan "sıcak"a dönüştürmede ve antitümör yanıtlarını tetiklemede etkili olup olamayacağını sorduk. Sırasıyla erkek C57Bl/6 ve FVB farelerinde deri altı, sinjeneik RM9 ve Myc-CaP tümörleri belirlendi ve fareler, araç, anti-PD-1 veya CBD-IL-12 ile tedaviye randomize edildi. . Sistemik CBD-IL-12 uygulaması, aksi takdirde anti-PD-1 tedavisine zayıf yanıt veren hem genetik kökenli RM9 hem de Myc-CaP tümör modellerinde önemli tümör büyümesi inhibisyonunu tetikledi (Şekil 6b, Ek Şekil 16a). . CBD-IL-12'nin etki mekanizmaları hakkında daha fazla bilgi edinmek için, araç veya CBDIL-12 ile tedavi edilen farelerden alınan RM9 tümörlerinin tek hücreli RNA-seq (scRNA-seq) analizini gerçekleştirdik. Düzgün Manifold Yaklaşımı ve Projeksiyon grafikleri, antitümör aktivitesi ile tutarlı olarak tümör epitel, fibroblast ve endotel hücre bölmelerinde (Ek Şekil 16b) önemli bir azalma olduğunu ortaya çıkardı. ScRNA-seq verilerinde doğuştan gelen ve adaptif bağışıklık hücresi alt kümelerinin işaretleyici bazlı profili (Şekil 6c,d), CD8+ T hücrelerinde önemli bir artış tespit etti (%7,55'e karşı 0,76%) , XCR1+ IRF8+ geleneksel tip 1 dendritik hücre (cDC1, 1.33 vs. %0), CD86+ INOS2+ M1 polarize makrofajlar ( Araç kontrol grubuyla karşılaştırıldığında CBDIL-12 tedavi grubundaki tümörlerde CD64+ F4/ 80+ monositleri/makrofajları (%29,2'ye karşı %4,43) %2,26 ve %0'dır. İmmünosupresif CD163+ CD206+ M2 polarize makrofajlarda (%0'a karşı %0,25) ve Ly6G+ nötrofillerinde (%0,52'ye karşı %1,08) azalma da CBD-IL{91}} terapisiyle ilişkilendirildi. IHC analizi, araçla tedavi edilen RM9 tümörlerinde genel olarak CD8+ T hücrelerinin bulunmadığını, CBD-IL-12 ile tedavi edilenlerin ise gözle görülür derecede önemli bir CD8+ T hücresi infiltrasyonu gösterdiğini doğruladı (Ek Şekil 16c) . Tümör hücreleri, antijen işlemenin yukarı regülasyonu ile tutarlı olarak, proteazom ve immünproteazom alt birimleri Psmb8 ve Psmb9 ile majör doku uyumluluk kompleksi sınıf I (MHC I) genleri H2-K1, H2-D1 ve B2m'nin zenginleştirilmiş ifadesini gösterdi ve sunum makineleri (Şekil 6e, Ek Şekil 16d). Buna paralel olarak, T hücreleri, T hücresi reseptör sinyallemesi ve bir lenfoid ile lenfoid olmayan bir hücre arasındaki immün düzenleyici etkileşimler ile ilişkili gelişmiş gen ekspresyonu sergiledi (Şekil 6f, Ek Şekil 16e). Mononükleer fagosit sisteminin (MPS) hücreleri, antijen işleme ve çapraz sunumun yanı sıra sitokin sinyallemesiyle ilgili zenginleştirilmiş gen ekspresyonu gösterdi (Ek Şekil 16f, g). Bu çalışmalar, tümör mikro ortamının yeniden programlanması ve hem doğuştan gelen hem de kazanılmış bağışıklık sistemlerinin devreye girmesi yoluyla prostat kanseri modellerinde CBD-IL{113}}'nin antitümör aktivitesini ortaya koydu.
Eş zamanlı STEAP1-mBBζ CAR T hücresi ve CBD-IL-12 terapisiyle gelişmiş tümör kontrolü
Daha sonra, antitümör bağışıklık tepkisinin CBD-IL-12 tedavisiyle genişletilmesinin, tümör antijen heterojenliğiyle mücadele ederek ve antijen işlenmesini kurtararak prostat kanserinde STEAP1-mBBζ CAR T hücre tedavisinin terapötik etkinliğini artırabileceğini varsaydık. sunum. Bu nedenle, erkek heterozigot hSTEAP1-KI farelerinde genetik kökenli, klonal olmayan RM9-STEAP1-fLuc metastazları belirledik ve 5 x 10⁶ ile tedaviye randomize ettik transdüksiyona tabi tutulmamış fare T hücreleri veya fare STEAP1-mBBζ CAR T hücreleri, retroorbital sinüs enjeksiyonu ile haftalık CBD-IL-12 tedavisiyle birlikte veya bu tedavi olmaksızın kuyruk damarı enjeksiyonu yoluyla. Tek başına veya STEAP1-mBBζ CAR T terapisiyle kombinasyon halinde CBD-IL-12 terapisi alan gruplar, lenfo tüketen siklofosfamid almadı (Şekil 7a). Seri BLI, dönüştürülmemiş T hücreleri ve CBD-IL-12 ile tedavi edilen farelerde hastalığın hızlı ilerlediğini ortaya koyarken, CBD-IL-12 tedavisi ile kombinasyon halinde STEAP1-BBζ CAR T hücreleri alan farelerde hastalığın önemli bir ilerleme gösterdiği ortaya çıktı tümörün ilerlemesinde gecikme (Şekil 7b, c). Daha da önemlisi, fare STEAP1- mBBζ CAR T hücreleri ve haftalık CBD-IL-12 ile kombine tedavi, diğer tüm tedavi gruplarıyla karşılaştırıldığında genel hayatta kalma oranında istatistiksel olarak anlamlı bir uzama ile ilişkilendirildi (Şekil 7d). Tedavinin 0. ve 8. gününde toplanan retroorbital kanamalar üzerindeki plazma sitokin analizi, proinflamatuar sitokinler IFN-, TNF-, IL-6 ve IL-4 düzeylerinde önemli bir artış gösterdi (Şekil 7e, Ek Şekil). . 17) STEAP1-mBBζ CAR T hücreleri ve CBD-IL-12 ile tedavi edilen farelerde. Otopsi sırasında kalıntı tümörler toplandı ve STEAP1 IHC, hem tek başına STEAP1- mBBζ CAR T hücreleriyle hem de CBD-IL-12 ile kombinasyon halinde tedavi edilen farelerden alınan tümörlerde antijen kaybı gösterdi (Şekil 8a). Ek olarak, CBD-IL-12 tedavisiyle ilişkili tümör B2m ekspresyonunda (Şekil 8a) bir artış gözlemledik. IL-12 tedavisine tabi tutulan tümör koşullarında CD3+ T hücreleri de arttı (Şekil 8b), ancak bir eğilim takdir edilirken, tümör içi T hücrelerinde IL-12 tedavisine tabi tutulan tümör koşullarında istatistiksel olarak anlamlı bir artış bulamadık. STEAP1-mBBζ CAR T hücresi ve birleşik STEAP1-mBBζ CAR T hücresi ve CBD-IL-12 tedavi grupları. Kombine STEAP1-mBBζ CAR T hücresi ve CBD-IL-12 ile tedavi edilen farelerden alınanlar da dahil olmak üzere, 10. günde maksimum tedavi yanıtında (nadir) ve tümör ilerlemesi (nüksetme) için şefkatli uç noktalarda toplanan kalıntı tümörler, tek hücrelere ayrışan ve bağışıklık hücresi alt kümeleri, multiparametrik akış sitometrisi ile karakterize edildi (Ek Şekil 18). ScRNA-seq sonuçlarımızla uyumlu olarak, tek başına veya STEAP1-mBBζ CAR T hücreleriyle kombinasyon halinde CBD-IL-12 tedavisi, CD11b+ Ly6C-/+F4/{{68'de önemli bir artışa yol açtı }} MHC-II+ makrofajları (Şekil 8c, d, Ek şekil 19a). CD11b+ Ly6CF4/80+ MHC-II+ hücreleri, olgun antijen sunan makrofajları temsil eder66 ve bu popülasyon tercihen zenginleştirilmiştir ve CBD-IL{84} ile proinflamatuar M1 polarizasyonunun bir belirteci olarak artan indüklenmiş nitrik oksit sentaz (iNOS) ekspresyonu göstermiştir. } terapi. Ayrıca cDC1 popülasyonunda bir genişleme ve geleneksel tip 2 dendritik hücre (cDC2) popülasyonunda bir azalma gözlemledik (Şekil 8e, Ek Şekil 19b). cDC1'in, antitümör sitotoksik CD{91}} T hücrelerinin aktivasyonunda ve potansiyel terapötik direnç mekanizmalarında rol oynadığı gösterilmiştir. Tregs67 dahil CD4+ T hücrelerinin doğal öldürücüsü olan KLRG1+ ve KLRG1- oranlarındaki anlamlı farkın aktivasyonu için cDC2 önemliyken, tümöre hücre göçüne dair bir işaret bulamadık. . CDC2 bulgularıyla tutarlı olarak, tedavi gruplarındaki hücreler (Ek Şekil 19d). CD{99}} FOXP{100}} Treg'lerin frekans profili, Ly6G+'nın CBD-IL{108}} terapisiyle nötralize edilirken F40/80+ SiglecF+ eozinofillerinin arttığı Treg'lerde bir azalma olduğunu ortaya çıkardı (Ek) Şekil 19c). İlgi çekici bir şekilde, STEAP1-'e CBD-IL-12 eklenmesiyle trofillerin azaldığı görüldü. Kombine STEAP1-mBBζ mBBζ CAR T hücresi tedavisinden sonra nükseden tümörlerde bunu gözlemledik (Şekil 8f, G). Özellikle, bu CAR T hücresi ve CBD-IL{116}} terapisinin sıklığında cDC1'de bir azalma olmuş ve Treg'lerde bir artışla tedaviyle tümörle ilişkili nötrofillerde artış olmuş, bu da sitotoksik CD8 STEAP{120'in hazırlanmasının azaldığını göstermektedir. }}mBBζ CAR T hücreleri, transdüksiyona tabi tutulmamış T hücreleriyle karşılaştırıldığında (54'e karşılık T hücreleri ve immünosüpresif Treg sinyalinin zenginleşmesi %34), CBD-IL-12 terapisi koşullarında azaldı, ancak kombine STEAP sonrasında tümör nüksetmesi üzerine arttı 1-mBBζ CAR T hücresi ve CBD-IL{127}} tedavisi (%19 ila 42). Bu bulgular, tümörle ilişkili nötrofillerin immünosüpresif özelliklerinin, tedavi direncine ve tümör ilerlemesine aracılık etmede önemli bir rol oynayabileceğini göstermektedir. Genel olarak bu analizler, CBD-IL{132}} tedavisinin, düşmanca bağışıklık baskılayıcı tümör ortamını proinflamatuar bir duruma döndürdüğünü ve benimsenerek aktarılan STEAP{134}}mBBζ CAR T hücre tedavisiyle birlikte antitümör aktivitesini genişlettiğini göstermektedir. Ayrıca otopsi sırasında her tedavi grubundan toplanan akciğer taşıyan tümörler üzerinde multipleks PCR bazlı TCR beta zincir dizilimi68 kullanarak TCR repertuar analizi gerçekleştirdik. Tek başına CBD-IL-12 ile ve STEAP1-mBBζ CAR T hücre terapisi ile kombinasyon halinde tedavi edilen farelerden alınan numunelerde Simpson klonalitesinde önemli bir azalma gözlemledik; bu, tümör içi T hücresi çeşitliliğinin arttığının göstergesiydi (Şekil 1). 8 saat). Bu bulgular, STEAP1 CAR T hücresi tedavisine ek olarak CBD-IL{143}} eklemenin, prostat kanseri tümörü mikro ortamının yeniden modellenmesi, antijen işleme ve sunumunun geliştirilmesi ve epitop yayılımını teşvik etmek için konakçı bağışıklığının devreye sokulması yoluyla faydalı olabileceğini ortaya koymaktadır.
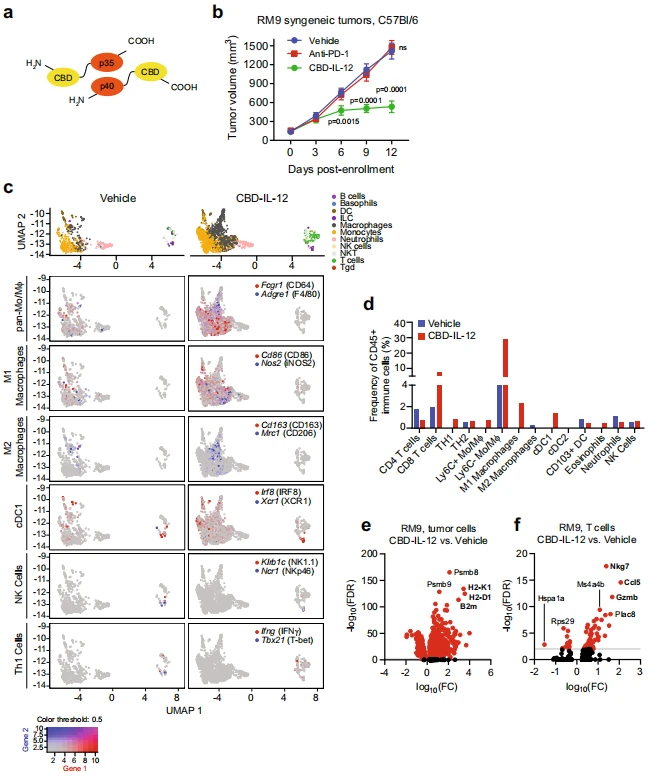
Şekil 6|Sistemik kolajen bağlayıcı alan IL-12 (CBD-IL-12) sitokin füzyon tedavisi, prostat kanseri tümörünün büyümesini engeller ve tümörün bağışıklık mikro ortamını yeniden programlar. Von Willebrand faktör alanı A3'ten CBD'ye kaynaşmış p35 ve p40 alt birimlerinden oluşan CBD-IL-12 Şeması. b Her 5 günde bir intraperitoneal enjeksiyon yoluyla araç, anti-PD-1 (klon 29 F.1A12) 200 Μg ile tedavi ile zaman içinde genetik kökenli C57Bl/6 farelerinde RM9 deri altı tümörlerinin hacimleri veya 0. günden başlayarak her 5 günde bir intravenöz enjeksiyon yoluyla CBD-IL-12 25 Μg. Araçtaki n=7 fare ve CBD-IL-12 ile tedavi edilen gruplar ve anti anti gruptaki n=8 fare -PD1 ile tedavi edilen grup. 9. ve 12. günlerde p < 0,0001. Çubuklar SEM ile ortalamayı temsil eder. P değerleri, Dunnett'in çoklu karşılaştırma testiyle iki yönlü ANOVA'dan türetilmiştir, ns anlamlı değildir. c Her biri araç veya CBD-IL ile tedavi edilen farelerden toplanan beş RM9 tümörünün tek hücreli RNA-seq (scRNA-seq) analizinden farklı bağışıklık hücresi alt kümelerinin (üstte) Tekdüzen Manifold Yaklaşımı ve Projeksiyonu (UMAP) çizimleri{{41} }. Pan-monositler/makrofajlar, M1 ve M2 polarize makrofajlar, geleneksel tip 1 dendritik hücreler (cDC1), doğal öldürücü (NK) hücreler ve T yardımcı tip 1 (Th1) için bağışıklık hücresi alt kümesine özgü işaretleyicilerin gen ekspresyonuyla renklendirilmiş UMAP grafikleri hücreler. d CD4+ ve CD8+ T hücreleri, Th1 (Infg+ Tbx{) dahil olmak üzere scRNA-seq analizi ile tanımlanan spesifik bağışıklık hücresi popülasyonlarının (CD45 + bağışıklık hücrelerine göre) sıklığını gösteren grafikler {56}} ) ve Th2 (cMAF+ Gata3+ ) hücreleri, Ly6C+/− monositler/makrofajlar (Ly6C+/− Adgre1+ ), M1 makrofajları (CD80+ CD{{67} } INOS2+), M2 makrofajları (CD163+ Mrc1+ cMAF+), cDC1 (XCR1+ IRF8+), geleneksel tip 2 dendritik hücreler (cDC2) , CD1+ IRF4+ ), göçmen CD103+ dendritik hücreler (Itgae+), eozinofiller (SiglecF+), nötrofiller (Ly6G+) ve NK hücreleri (Klrb1c+ Ncr1+ ) araç veya CBDIL-12 ile tedavi edilen tümörlerde. Araçla tedavi edilenlere göre CBD-IL{91}} ile tedavi edilen farelerin RM9 tümörlerinden (e) tümör hücrelerinde ve (f) T hücrelerinde diferansiyel gen ekspresyonunu gösteren volkan grafikleri. FC kat değişimi, FDR yanlış keşif oranı. Kaynak verileri Kaynak Veri dosyasında sağlanır.
Tartışma
CAR T hücre terapisinin ve diğer bağışıklık temelli hedefe yönelik terapötiklerin etkinliği, büyük ölçüde, bireysel bir hastadaki tümör popülasyonunu oluşturan hücrelerin tamamında veya çoğunda tutarlı antijen ekspresyonuna bağlıdır. Bununla birlikte, mCRPC'ye ilerlemenin ve tedavi direncinin farklı transkripsiyonel programlar-71 ve hücre yüzeyi antijen ekspresyonu ile işaretlenmiş farklı hastalık alt tiplerinin ortaya çıkışı ile ilişkili olduğu prostat kanseri dahil katı tümörlerde antijen heterojenliği belirgindir. PSMA, hastalığın ilerlemesi spektrumunda önemli düzeyde aşırı ekspresyon bulunmasıyla prostat kanserinde önde gelen biyobelirteçlerden biri olarak kabul edilirken, çalışmamız, ölümcül mCRPC'de PSMA ekspresyonunun heterojen olduğunu gösteren yeni bir yayından14 elde edilen bulguları desteklemektedir. Bu ortamda STEAP1'in PSMA'dan daha geniş bir şekilde ifade edildiğini ancak hiçbir şekilde tüm mCRPC dokularında yüksek seviyelerde eşit şekilde ifade edilmediğini gösterdik. CAR T hücre terapisi dahil hiçbir antijen hedefli tedavi, mCRPC'de önceden var olan tümör antijen heterojenitesinin üstesinden gelemez. Bu nedenle, aşılmaz terapötik baskı uygulayan kombinatoryal tedavileri mümkün kılabilecek mCRPC'deki STEAP1 gibi ek terapötik hedeflerin iyice doğrulanması kritik öneme sahiptir. Bunlar arasında ikili antijen hedefli (örneğin, PSMA ve STEAP1) CAR T hücre tedavileri veya CAR T hücre terapilerini ADC'ler, T-BsAb'ler veya antijenden bağımsız ve bağımlı tümör öldürülmesini güçlü bir şekilde destekleyen diğer tedavilerle birleştiren multimodal stratejiler bulunur. Oldukça antijene spesifik olan ve CAR tarafından tanınan epitopu STEAP1'in ikinci ECD'sine işlevsel olarak lokalize eden, STEAP1-hedefli bir CAR T hücre terapisi tasarladık. STEAP1-BBζ CAR T hücrelerimiz, hem farede insan hem de farede fare çalışmalarında, birden fazla yayılmış prostat kanseri modeline karşı önemli antitümör aktivitesi göstermektedir. Daha da önemlisi, STEAP1-BBζ CAR'ımız, PC3 prostat kanseri modeline karşı reaktivitenin de gösterdiği gibi, düşük antijen yoğunluğu koşullarında bile T hücresi aktivasyonunu ve hedef hücre sitolizini tetikleme kapasitesine sahiptir. Bununla birlikte, STEAP1-BBζ CAR T hücrelerinin düşük STEAP1 ekspresyon seviyelerine karşı duyarlılığı, antitümör etkinliğinin arttırılması açısından avantajlı olabilir, ancak aynı zamanda hedef dışı tümör toksisitesinden kaynaklanan yükümlülükleri de vurgulayabilir. STEAP1'in sistemik ekspresyonunun, prostat epitelyal hücrelerinde membranöz ekspresyonun tanımlandığı27 prostat bezi dışında normal insan dokularında18,72 neredeyse hiç bulunmadığı daha önce bildirilmişti. Klinik öncesi ortamda STEAP1-BBζCAR T hücre tedavisinin güvenliğini araştırmak için insanlaştırılmış bir STEAP1 fare modeli oluşturduk. hSTEAP1-KI fare modeli, prostat bezindeki insan STEAP1 ekspresyonunu özetledi ve adrenal kortekste ekspresyon gösterdi. Güven verici bir şekilde, antitümör aktivitesini indüklemek için yeterli bir dozda STEAP1-BBζ CAR T hücresi tedavisi, insan STEAP1 bölgelerinde hedeflenen tümör dışı toksisiteler dahil olmak üzere hSTEAP1-KI farelerinde belirgin sistemik toksisitelere yol açmadı. ifade. Çalışmalarımızda STEAP1-BBζ CAR T hücresi tedavisinden sonra prostat kanserinin nüksetmesi ve ilerlemesinin tekrarlayan bir mekanizması, tümör antijeninin kaçışıydı. Bir yandan bu bulgu, STEAP1-BBζ CAR T hücre tedavisinin genel gücünün altını çiziyor. Bununla birlikte, tümör STEAP1 ekspresyonu kaybının yalnızca doğal tümör antijen heterojenliğinden mi kaynaklandığı, yoksa STEAP1 ekspresyonunun adaptif aşağı regülasyonunun da olup olmadığı açık değildir. Yakın zamanda yayınlanan bir yayın, STEAP1'in promoter metilasyonunun, STEAP1 ekspresyonunu modüle ettiğini ve DNA metiltransferaz ve histon deasetilaz inhibisyonuyla epigenetik deregülasyonun, STEAP1 ekspresyonunu önemli ölçüde yukarı regüle etmek için yeterli olduğunu gösterdi73. STEAP1 CAR T hücre tedavisi ile kombinasyon halinde epigenetik inhibitörlerle tedavi, aynı anda tümör STEAP1 ekspresyonunu artırabilir ve CAR T hücrelerini uygun tükenmeye dirençli farklılaşma durumlarına yeniden programlayabilir74,75, böylece tümör antijen kaybını hafifletebilir ve prostat kanserinde antitümör etkinliğini artırabilir. Çalışmamız aynı zamanda STEAP1'in prostat kanserinde hücre döngüsü ilerlemesini ve hücresel metabolizmayı düzenlemede fonksiyonel bir rol oynadığını da göstermektedir. STEAP1, metalo redüktaz aktivitesi için gerekli olan hücre içi oksidoredüktaz alanına22 sahip olmaması nedeniyle diğer STEAP ailesi üyelerinden (STEAP2, 3 ve 4) benzersizdir. Sonuç olarak, STEAP1 homotrimerleri, ancak diğer STEAP proteinlerine sahip heterotrimerler değil, Fe3+'yi Fe2+'ye ve Cu2+'yu Cu1+'ya indirgeyecek enzimatik fonksiyondan yoksundur. STEAP1'in metal iyonlarına ve hücresel metabolizmaya katılımının kanserin ilerlemesini destekleyip desteklemediği ve nasıl teşvik ettiği henüz belirlenmemiştir ve daha fazla araştırmaya değerdir. Prostat kanserinin immünolojik olarak 'soğuk' tümör mikro ortamı, kanser immünoterapilerinin etkinliğinin önünde önemli bir engeldir. Örneğin, mCRPC'de dominant-negatif dönüştürücü büyüme faktörü reseptörünü (TGF R-DN) eksprese etmek üzere zırhlı PSMA CAR T hücresi terapisinin faz I klinik denemesiyle ilişkili keşif çalışmaları, tümör mikroçevresindeki immünosüpresif sinyal moleküllerinin ekspresyonunun arttığını gösterdi. CAR T infüzyonundan sonra13. Çalışmalarımızda kritik bir bulgu, STEAP1-BBζ CAR T hücresi tedavisinden sonra hem STEAP1 nakavt hücrelerinde hem de STEAP1 antijen kaybı tümörlerinde STEAP1 ekspresyonu kaybı ile antijen işleme ve sunumunun aşağı regülasyonu arasındaki ilişkiydi. Bu nedenle, prostat kanserinde STEAP1 antijen kaybı, yalnızca STEAP1-BBζ CAR T hücre tedavisine doğrudan direnci arttırmakla kalmaz, aynı zamanda konakçının adaptif antitümör bağışıklığını da sınırlayabilir. Tümör hedef antijen ekspresyonunun kaybı ve artan Treg infiltrasyonu ve immünosüpresif moleküllerin daha yüksek ekspresyonu ile daha immünosüpresif bir duruma dönüşüm, tekrarlayan glioblastoma76 hastalarında EGFR-vIII CAR T hücreleri üzerinde yapılan bir faz I çalışmasında da gözlemlenmiştir76. STEAP1 antijen kaybının altında yatan fonksiyonel mekanizmaları ve daha genel olarak benimsenen CAR T hücre tedavisinin dinamik etkilerinin, katı tümörlerde tümör-immün-stromal etkileşimleri modüle ederek antijen kaybına ve immün düzenlemeye nasıl katkıda bulunabileceğini anlamak için ek çalışma gerekli olacaktır.
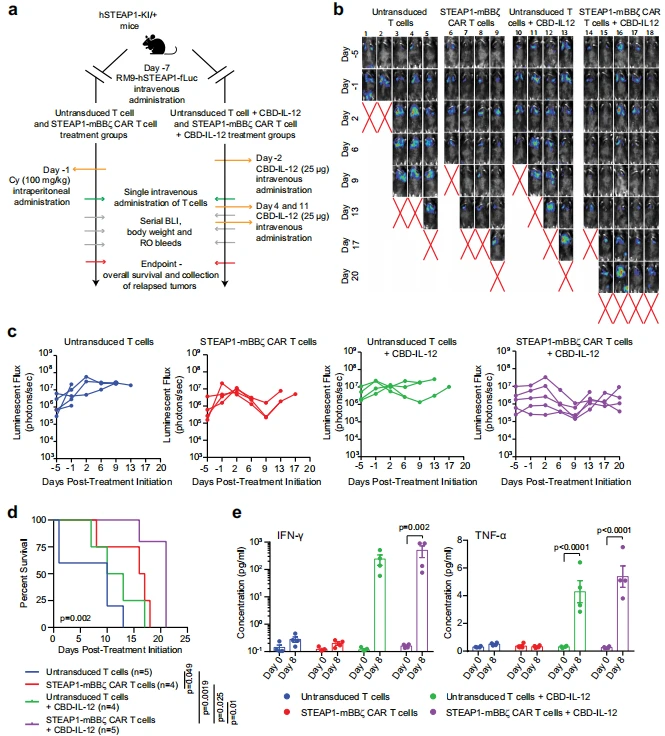
Şekil 7|CBD-IL-12'yi STEAP1-mBBζ CAR T hücre terapisiyle birleştirmek, genel sağkalımı ve inflamatuar sitokin seviyelerini artırır. CBD-IL-12'nin STEAP{{1{{18} ile kombinasyonunu araştıran hSTEAP1-KI/+ farelerinde RM9-hSTEAP1 yayılmış modeli için tümör mücadele deneyinin şeması }}}mBBζ CAR T hücre tedavisi. Cy siklofosfamid (ön koşullandırma için). BioRender.com ile oluşturulmuştur. b RM9-hSTEAP1- fLuc metastazları aşılanmış ve transdüksiyona tabi tutulmamış 5 × 10⁶ fareden oluşan tek bir intravenöz enjeksiyonla tedavi edilen hSTEAP1-KI/ + farelerinin seri canlı BLI'sı Haftalık olarak CBD-IL- 12 tedavisiyle veya tedavisiz 0. günde T hücreleri veya STEAP1-mBBζ CAR T hücreleri. Kırmızı X ölen fareleri belirtir. Parlaklık ölçeği gösterilmektedir. (c) (b)'deki her farenin canlı BLI'sından zaman içindeki toplam akışın miktarını gösteren çizim. d Log-rank (Mantel-Cox) testiyle belirlenen istatistiksel anlamlılıkla (b)'deki farelerin Kaplan-Meier hayatta kalma eğrileri (p=0.002). e hSTEAP1-KI/+ farelerinin ( dönüştürülmemiş fare T hücreleri veya fare STEAP{{38} ile tedaviden önce (0. gün) ve tedaviden sonra (8. gün) RM9-hSTEAP1-fLuc metastazı taşıyan n=4 fare (grup başına) }mBBζ CAR T hücreleri, CBD-IL-12 terapisi olsun veya olmasın. Hata çubuğu SEM ile ortalamayı temsil eder. Panel (e) için p değerleri, Sidak'ın çoklu karşılaştırma testiyle iki yönlü ANOVA'dan elde edildi. Kaynak verileri Kaynak Veri dosyasında sağlanır.

Şekil 8|CBD-IL-12'yi STEAP1-mBBζ CAR T hücresi terapisiyle birleştirmek, tümör bağışıklık mikro ortamını yeniden programlar ve antijen sunumunu ve epitop yayılmasını destekler. a Fare transdüksiyonsuz T hücreleri veya STEAP1-mBBζ CAR T hücreleri ile veya veya ile tedaviden sonra RM9-hSTEAP1 akciğer tümörlerinin STEAP1 (üst), B2m (orta) ve CD3 (altta) IHC boyamasının fotomikrografları CBD-IL-12 tedavisi olmadan. Ölçek çubukları=50 µm. b Metastatik akciğer tümörlerine (grup başına n=4 tümör) sızan CD3 pozitif hücrelerin IHC niceliğini gösteren çubuk grafiği. Tek yönlü ANOVA p=0.{{80}}021. Hata çubuğu SD ile ortalamayı temsil eder. (c) Ly6C− F4/{{20}} MHC-II+ (sol, tek yönlü ANOVA p=0.00{) frekanslarını gösteren grafikler {98}}5) ve Ly6C − F4/80+ iNOS2+ (sağ, tek yönlü ANOVA p=0.0017) makrofajları, (d) Ly6C+ F4/ {{36} } MHC-II+ (sol, tek yönlü ANOVA p=0.0038) ve Ly6C+ F4/80+ iNOS2+ (sağ, tek yönlü ANOVA p=ns) makrofajları, (e) CD11b+ XCR1+ cDC1 (tek yönlü ANOVA p=0.0003), (f) F4/80+ SiglecF+ eozinofiller (tek yönlü ANOVA p=0. 0008) ve (g) Ly6G+ nötrofilleri (tek yönlü ANOVA p=0.0035), dönüştürülmemiş T hücreleriyle tedaviden sonra multiparametrik akış sitometrisi ile belirlendiği üzere toplam CD{45+ hücrelerine normalize edildi, STEAP{{67) Maksimum tedavi yanıtında (nadir) ve tümör nüksünde }}mBBζ CAR T hücreleri, dönüştürülmemiş T hücreleri ve CBD-IL-12 ve STEAP1- mBBζ CAR T hücreleri ve CBD-IL-12 (nüksetme). h (a)'da farelerden toplanan tümör infiltre eden hücreler üzerinde TCRB dizilimi ile analiz edilen TCR repertuarının 'düzgünlüğünün' bir ölçüsü olarak Simpson klonalitesini temsil eden çubuk grafikleri. Grup başına n=4 tümör. Dönüştürülmemiş T hücreleri + CBD-IL-12 için P değerleri, dönüştürülmemiş T hücreleri ve STEAP1-mBBζ CAR T hücreleriyle karşılaştırıldığında sırasıyla 0,008 ve 0,02'dir; ve STEAP1-mBBζ CAR T hücreleri + CBD-IL-12, dönüştürülmemiş ve STEAP1-mBBζ CAR T hücreleriyle karşılaştırıldığında sırasıyla 0,004 ve 0,01'dir. Hata çubuğu SD ile ortalamayı temsil eder. Grup başına paneller (c–g) n=3 tümör için, *p < 0,05; **p < 0,01, ***p < 0,001, panellerdeki p değerleri (b–h), Dunn'ın çoklu karşılaştırma testiyle tek yönlü ANOVA'dan alınmıştır. Kaynak verileri Kaynak Veri dosyasında sağlanır.
Antitümör tepkisini genişletmek için, hSTEAP'te yaygın, sinjeneik RM9-hSTEAP1 tümör modelinde STEAP1-BBζ CAR T hücre terapisi ile kombinasyon halinde CBD-IL-12'nin sistemik uygulamasını araştırdık. 1-KI fareleri, RM9'un zayıf immünojenik bir model olarak önceki karakterizasyonuna dayanarak mCRPC'nin immünosüpresif doğasına yaklaşmak için kullanılır57,77. CBD-IL12 ile birlikte tedavi, genel hayatta kalma, sitokin üretimi, tümör antijen sunumu ve epitop yayılmasıyla tutarlı intratümöral T hücresi çeşitliliğinde iyileşmelere yol açtı. Tümör bağışıklık mikro ortamının yakından incelenmesi, STEAP1-BBζ CAR T hücre terapisine CBD-IL-12 eklemenin, tümör stromal reversiyonunu indüklediğini ve tümörle ilişkili nötrofilleri azaltırken aktif makrofajları ve cDC1'i güçlendirdiğini ortaya çıkardı. Bununla birlikte, çalışmalarımızda tedavi sağlanamadı ve Treg indüksiyonunu destekleyebilecek immünosüpresif nötrofillerin ve cDC2'nin artan frekansları dahil olmak üzere potansiyel telafi edici, adaptif direnç ve tümör ilerlemesi mekanizmalarını vurguladık. Antitümör tepkilerini en üst düzeye çıkarmak için CBD-IL-12'nin dozunun ve uygulama programının daha fazla optimizasyonunun gerekebileceğini unutmamak önemlidir. Ancak bu sonuçlar, CAR T hücrelerini rekombinant sitokinleri ifade edecek şekilde zırhlamak78 (örneğin, IL-2, IL-12, IL-15 veya IL{{24) gibi kombinatoryal immünoterapötik yaklaşımların araştırılmasını desteklemektedir. }}), immünomodülatörlerle eş zamanlı tedavi (örneğin, anti-PD-1/PD-L1 veya anti-CTLA4) veya prostat kanseri tümörü mikro ortamını yeniden modellemek ve CAR T hücresi efektör fonksiyonunu geliştirmek için tümöre yönelik radyoterapi. Bu yazı hazırlık aşamasındayken, Norveç'teki bir gruptan yapılan bir çalışma, bağışıklık sistemi baskılanmış farelerde deri altı 22Rv1 modelinde antitümör aktivitesine sahip bir STEAP1 CAR T hücre tedavisinin klinik öncesi gelişimini bildirdi79. Bildirilen STEAP1 CAR, Oslo1 adı verilen sentetik bir scFv ve bir CD8 menteşe ve zar ötesi alanı içerdiğinden STEAP1-BBζ CAR'dan farklıdır. Diğer bir ayırt edici özellik ise STEAP1-BBζ CAR T hücrelerinin normal CD4/CD8 T hücre oranına sahip tanımlanmış bir ürün olarak hazırlanması, Oslo1 STEAP1 CAR T hücrelerinin ise bu şekilde hazırlanmamasıdır. Oslo1 STEAP1 CAR T hücresi tedavisine ilişkin direnç mekanizmaları ve güvenlik çalışmaları bildirilmemiştir. Bununla birlikte, hem Oslo1 STEAP1 CAR T hücre terapisi hem de STEAP1-BBζ CAR T hücre terapisimiz olduğundan, CAR mühendisliği ve hücre ürünü bileşimindeki bu farklılıkların antitümör etkinliğini, kalıcılığını ve güvenliğini nasıl etkileyebileceğini görmek ilgi çekici olacaktır. programlar kliniğe tercüme edilir. Çalışmalarımızın bulguları, STEAP1-BBζ CAR T hücre terapisini mCRPC'li erkekler için insanda ilk denemeye dönüştürmek üzere Ulusal Kanser Enstitüsü (NCI) Deneysel Terapötikler (NExT) Programı ile bir ortaklığa yol açtı. Bu erken faz klinik denemeden elde edilen güvenlik ve etkinlik sinyalleri, STEAP1'i yüksek oranda eksprese eden diğer kanser türleri için de bu terapötik yaklaşımın araştırılmasının değerli olup olmayacağının belirlenmesine yardımcı olacaktır.
Referanslar
1. Siegel, RL, Miller, KD, Fuchs, HE & Jemal, A. Kanser istatistikleri, 2022. CA: Cancer J. Clinicians 72, 7–33 (2022).
2. Armstrong, AJ ve diğerleri. PREVAIL Çalışmasından kemoterapi almamış metastatik kastrasyona dirençli prostat kanseri olan erkeklerde enzalutamid ile beş yıllık sağkalım tahmini ve güvenlik sonuçları. Avro. Urol. 78, 347–357 (2020).
3.Fizazi, K. ve ark. Metastatik, kastrasyona duyarlı prostat kanserinde abirateron artı prednizon. N. İngilizce J. Med. 377, 352–360 (2017).
4. Scher, HI ve ark. Kemoterapi sonrası prostat kanserinde enzalutamid ile sağkalımın artması. N. İngilizce J. Med. 367, 1187–1197 (2012).
5. Parker, C. ve ark. Alfa yayıcı radyum-223 ve metastatik prostat kanserinde hayatta kalma. N. İngilizce J. Med. 369, 213–223 (2013).
6. Sartor, O. ve diğerleri. Metastatik kastrasyona dirençli prostat kanseri için Lutesyum-177–PSMA-617. N. İngilizce J. Med. 385, 1091–1103 (2021).
7. Kantoff, PW ve diğerleri. Kastrasyona dirençli prostat kanseri için Sipuleucel-T immünoterapisi. N. İngilizce J. Med. 363, 411–422 (2010).
8. Jackson, HJ, Rafiq, S. & Brentjens, RJ Driving CAR T-cells forward. Nat. Rahip Clin. Onkol. 13, 370–383 (2016).
9. Weiner, GJ Daha iyi monoklonal antikor bazlı terapötikler oluşturmak. Nat. Rev. Cancer 15, 361–370 (2015).
10. Chavez, JC, Bachmeier, C. ve Kharfan-Dabaja, MA B hücreli lenfomalar için CAR T hücresi tedavisi: mevcut ürünlerin klinik deneme sonuçları. Terapötik Av. Hematol. 10, 2040620719841581 (2019).
11. Sterner, RC & Sterner, RM CAR-T hücre tedavisi: mevcut sınırlamalar ve potansiyel stratejiler. Kan kanseri J. 11, 69 (2021).
12. Slovin, SF ve diğerleri. Metastatik kastrasyona dirençli prostat kanseri (mCRPC) olan hastalarda P-PSMA-101 CAR-T hücrelerinin 1. Aşama çalışması. J. Clin. Onkol. 40, 98–98 (2022).
13. Narayan, V. ve diğerleri. Metastatik kastrasyona dirençli prostat kanserinde PSMA'yı hedefleyen TGF'ye duyarsız zırhlı CAR T hücreleri: bir faz 1 denemesi. Nat. Med. 28, 724–734 (2022).
14. Paschalis, A. ve diğerleri. Prostat kanserinde prostata özgü membran antijen heterojenliği ve DNA onarım kusurları. Euro. Urol. 76, 469–478 (2019).
15. Chen, N., Li, X., Chintala, NK, Tano, ZE & Adusumilli, PS Katı tümörlerde antijen heterojenliğinin düzensiz yolunda CAR'ları sürmek. Curr. Görüş. İmmünol. 51, 103–110 (2018).
16. Morgan, RA ve diğerleri. ERBB2'yi tanıyan kimerik bir antijen reseptörü ile transdükte edilmiş T hücrelerinin uygulanmasını takiben ciddi bir olumsuz olayın vaka raporu. Mol. Orada. J. Am. Sos. Gen Ther. 18, 843–851 (2010).
17. Lee, JK ve ark. Sistemik yüzey profillemesi, ilerlemiş prostat kanserinin alt tiplerinde immün bazlı tedavi için hedef antijenleri tanımlar. Proc. Natl. Acad. Bilim. ABD 115, E4473–e4482 (2018).
18. Hubert, RS ve diğerleri. STEAP: insan prostat tümörlerinde yüksek oranda eksprese edilen prostata özgü bir hücre yüzeyi antijeni. Proc. Natl Acad. Bilim. ABD 96, 14523–14528 (1999).
19. Nolan-Stevaux, O. Özet DDT02-03: AMG 509: XmAb® 2+1 antikorunu toplayan yeni, hümanize, yarı ömrü uzatılmış, bispesifik STEAP1 x CD3 T hücresi. Kanser Arş. 80, DDT02-03-DDT02-03 (2020).
20. Grunewald, TG ve diğerleri. Yüksek STEAP1 ekspresyonu, Ewing sarkomu hastalarında daha iyi sonuçlarla ilişkilidir. Ann. Onkol. Kapalı. J. Eur. Sos. Med. Onkol. 23, 2185–2190 (2012).
21. Moreaux, J., Kassambara, A., Hose, D. & Klein, B. STEAP1 kanserlerde aşırı eksprese edilir: umut verici bir terapötik hedef. Biyokimya. Biyofiz. Res. İletişim 429, 148–155 (2012).
22. Oosterheert, W. & Gros, P. Prostat 1'in (STEAP1) insan altı-transmembran epitelyal antijeninin kriyo-elektron mikroskobu yapısı ve potansiyel enzimatik fonksiyonu. J. Biol. Kimya 295, 9502–9512 (2020).
23. Jiao, Z. ve diğerleri. Prostat 1 ekspresyonunun altı transmembran epitelyal antijeni, epitelyalden mezenkimal geçişin ilerlemesine yardımcı olarak yumurtalık kanseri metastazını destekler. Histokimya. Hücre Biol. 154, 215–230 (2020).
24. Gomes, IM, Arinto, P., Lopes, C., Santos, CR & Maia, CJ STEAP1, prostat kanseri ve prostatik intraepitelyal neoplazi lezyonlarında aşırı eksprese edilir ve Gleason skoru ile pozitif ilişkilidir. Ürolojik onkolojide: seminerler ve özgün araştırmalar. cilt 32, 53.e23–53.e29 (Elsevier, 2014).
25. Huo, S.-f. ve ark. STEAP1, JAK2/STAT3 sinyal yolu yoluyla akciğer adenokarsinomunun metastazını ve epitelyal-mezenkimal geçişini kolaylaştırır. Biosci. Temsilci 40, BSR20193169 (2020).
26. Gomes, IM ve diğerleri. STEAP1'in yıkılması, hücre büyümesini inhibe eder ve LNCaP prostat kanseri hücrelerinde androjenlerin etkisine karşı koyan apoptozu indükler. Med. Onkol. 35, 1–10 (2018).
27. Gomes, IM, Maia, CJ & Santos, CR STEAP proteinleri: yapıdan kanser tedavisindeki uygulamalara. Mol. Kanser Arş. MCR 10, 573–587 (2012).
28. Danila, DC ve diğerleri. Metastatik kastrasyona dirençli prostat kanserinde prostat 1'in altı transmembran epitelyal antijenini hedef alan bir antikor-ilaç konjugatı olan DSTP3086S'nin Faz I çalışması. J. Clin. Onkol. Kapalı. J. Am. Sos. Klin. Onkol. 37, 3518–3527 (2019).
29. Kelly, WK ve diğerleri. Metastatik kastrasyona dirençli prostat kanseri (mCRPC) olan hastalarda XmAb 2+1 immün tedavisini alan bir STEAP1 x CD3 T hücresi olan AMG 509'un Faz I çalışması. J. Clin. Onkol. 38, TPS5589–TPS5589 (2020).
30. Lin, T.-Y., Park, JA, Long, A., Guo, H.-F. & Cheung, N.-KV Kanser immünoterapisi için T hücrelerini yeniden yönlendiren yeni, güçlü anti-STEAP1 bispesifik antikor. J. İmmunother. Kanser 9, e003114 (2021).
31. Schober, SJ ve diğerleri. STEAP1'e Karşı MHC Sınıf I-Kısıtlı TCR-Transgenik CD4(+) T Hücreleri, Ewing Sarkomunun In Vivo Lokal Tümör Kontrolüne Aracılık Ediyor. Hücreler 9, 1581 (2020).
32. Roudier, MP ve ark. Kemiğe metastatik son dönem prostat karsinomunun fenotipik heterojenliği. Hımm. Pathol. 34, 646–653 (2003).
33. Gomes, IM, Santos, CR, Socorro, S. & Maia, CJ Prostat 1'in altı transmembran epitelyal antijeni, prostat hücrelerinde seks hormonları tarafından aşağı doğru düzenlenir. Prostat 73, 605–613 (2013).
34. Sharp, A. ve ark. Androjen reseptörü ek varyantı-7 ifadesi, prostat kanserinde kastrasyon direnciyle ortaya çıkar. J. Clin. Yatırım. 129, 192–208 (2019).
35. Bakht, MK ve diğerleri. Prostat kanserinin nöroendokrin farklılaşması PSMA'nın baskılanmasına yol açar. Endokr.-İlgili. Kanser 26, 131–146 (2018).
36. Ihlaseh-Catalano, SM ve diğerleri. STEAP1 proteininin aşırı ekspresyonu, prostat karsinomunda biyokimyasal nüks için bağımsız bir belirteçtir. Histopatoloji 63, 678–685 (2013).
37. Gomes, IM ve ark. STEAP1'in yıkılması, hücre büyümesini inhibe eder ve LNCaP prostat kanseri hücrelerinde androjenlerin etkisine karşı koyan apoptozu indükler. Med. Onkol. 35, 40 (2018).
38. Logan, AC ve diğerleri. Lentiviral vektörlerin titresini ve enfektivitesini etkileyen faktörler. Hımm. Gen Ther. 15, 976–988 (2004).
39. Morgan, RA, Gray, D., Lomova, A. & Kohn, DB Hematopoietik kök hücre gen terapisi: ilerleme ve öğrenilen dersler. Hücre Kök Hücresi 21, 574–590 (2017).
40. Larson, SM ve diğerleri. Kanser immünoterapisi için hematopoietik kök hücrelerin kimerik antijen reseptörleri ile gen modifikasyonunun klinik öncesi gelişimi. Hımm. Aşı İmmunother. 13, 1094–1104 (2017).
41. Salter, AI ve diğerleri. Kimerik antijen reseptörü sinyallemesinin fosfoproteomik analizi, hücre fonksiyonunu etkileyen kinetik ve niceliksel farklılıkları ortaya çıkarır. Bilim. Sinyal. 11, eaat6753 (2018).
42. Majzner, RG ve diğerleri. CAR T hücresi aktivitesi için antijen yoğunluğu gereksiniminin ayarlanması. Kanser Keşfi. 10, 702–723 (2020).
43. Challita-Eid, PM ve ark. Prostatın altı transmembran epitelyal antijenine karşı monoklonal antikorlar-1 İn vitro Hücreler Arası İletişimi ve insan tümör ksenograftlarının in vivo büyümesini engeller. Kanser Arş. 67, 5798–5805 (2007).
44. Hudecek, M. ve ark. Kimerik antijen reseptörlerinin sinyal vermeyen hücre dışı aralayıcı alanı, in vivo antitümör aktivitesi için belirleyicidir. Kanser İmmunol. Res. 3, 125–135 (2015).
45. Gomes, IM, Santos, CR & Maia, CJ Prostat hücre hatlarında STEAP1 ve STEAP1B'nin ekspresyonu ve STEAP1'in transkripsiyon sonrası ve translasyon sonrası mekanizmalar tarafından varsayılan düzenlenmesi. Genler Kanser 5, 142–151 (2014).
46. Bernsel, A., Viklund, H., Hennerdal, A. & Elofsson, A. TOPCONS: membran protein topolojisinin fikir birliği tahmini. Nükleik Asitler Res. 37, W465–W468 (2009).
47. Krogh, A., Larsson, B., Von Heijne, G. & Sonnhammer, EL Gizli bir Markov modeliyle transmembran protein topolojisini tahmin etmek: tam genomlara uygulama. J. Mol. Biyol. 305, 567–580 (2001).
48. Long, AH ve ark. 4-1BB ortak uyarımı, kimerik antijen reseptörlerinin tonik sinyallemesi tarafından indüklenen T hücresi tükenmesini iyileştirir. Nat. Med. 21, 581–590 (2015).
49. Berger, C. ve diğerleri. Merkezi bellek hücrelerinden türetilen efektör CD8+ T hücrelerinin uyarlanabilir transferi, primatlarda kalıcı T hücresi belleği oluşturur. J. Clin. Araştır. 118, 294–305 (2008).
50. Gattinoni, L. ve diğerleri. Kök hücre benzeri özelliklere sahip bir insan hafızası T hücresi alt kümesi. Nat. Med. 17, 1290–1297 (2011).
51. Xu, Y. ve diğerleri. Yakından ilişkili T-bellek kök hücreleri, CAR'ın in vivo genişlemesiyle ilişkilidir.CD19-T hücreleri, IL-7 ve IL-15 tarafından korunur. Kan 123, 3750–3759 (2014).
52. Cieri, N. ve diğerleri. IL-7 ve IL-15, saf öncüllerden insan hafızası kök T hücrelerinin oluşturulması talimatını verir. Kan 121, 573–584 (2013).
53. Hansel, DE ve diğerleri. Morfolojik ve fenotipik olarak farklı eşzamanlı primer küçük hücreli nöroendokrin karsinom ve prostat adenokarsinomunda paylaşılan TP53 gen mutasyonu Prostat 69, 603–609 (2009).
54. Cuzick, J. ve diğerleri. Prostat kanserli hastalarda hücre döngüsü proliferasyon genlerinden türetilen bir RNA ekspresyon imzasının prognostik değeri: retrospektif bir çalışma. Lancet Oncol. 12, 245–255 (2011).
55. Chen, ME, Lin, SH, Chung, LW & Sikes, RA PAGE-1 ve GAGE-7'nin izolasyonu ve karakterizasyonu. LNCaP prostat kanseri ilerleme modelinde ifade edilen ve melanomla ilişkili antijenlerle homolojiyi paylaşan yeni genler. J. Biol. Kimya 273, 17618–17625 (1998).
56. Baley, PA, Yoshida, K., Qian, W., Sehgal, I. & Thompson, TC Prostat kanseri için yeni bir in vitro fare modelinde androjen duyarsızlığına ilerleme. J. Steroid Biyokimya. Mol. Biyol. 52, 403–413 (1995).
57. Murad, JP ve ark. Ön koşullandırma, katı tümör CAR T hücresi etkinliğini ve endojen koruyucu bağışıklığı arttırmak için TME'yi değiştirir. Mol. Orada. J. Am. Sos. Gen Ther. 29, 2335–2349 (2021).
58. Brunda, MJ ve diğerleri. Interlökin 12'nin fare tümörlerine karşı antitümör ve antimetastatik aktivitesi. J. Exp. Med. 178, 1223–1230 (1993).