

Nörodejeneratif Hastalıklara Yönelik İlaç Keşfinde Protein Yanlış Katlanmasını Hedefleyen Yeşil Çay Epigallokateşin-3-gallat (EGCG) Bölüm 2
Jun 25, 2024
3. Nörodejeneratif Hastalıklarda Protein Yanlış Katlanması
Proteinlerin doğal durumlarından yanlış katlanmış agregatlara dönüşümü, AD ve PD dahil olmak üzere bazı ND'lerle ilişkilidir ve bunların nedeni olduğu düşünülmektedir [133]. Spesifik proteinlerin yanlış katlanması, toplanması ve birikmesi çoğu ilerleyici ND'nin temel özellikleridir [21,134].
Protein insan vücudu için gerekli besinlerden biridir. Vücudun hücrelerini oluşturan temel elementtir ve aynı zamanda insan vücudunun çeşitli fizyolojik fonksiyonlarının önemli maddi temellerinden biridir. Protein aynı zamanda hafızanın geliştirilmesinde de önemli bir rol oynar.
Her şeyden önce protein, düşünme yeteneğimizi geliştirmemize ve dolayısıyla hafızamızı geliştirmemize yardımcı olabilir çünkü protein, sinir hücrelerinin temel bileşenidir. Nöronlar beyni ve sinir sistemini oluşturan temel birimlerdir. Beyindeki hafızanın işlenmesi ve bilgi aktarımı, nöronlar arasında iletişim ve koordinasyon gerektirir. Bu nedenle yeterli protein alımı, sinir sistemini korumamıza ve beyindeki sinir hücreleri ile nöronlar arasındaki etkileşimi güçlendirmemize, böylece öğrenme, hatırlama ve düşünme yeteneğimizi geliştirmemize yardımcı olabilir.
İkincisi, protein duygularımızı dengelememize, kaygı ve stresi azaltmamıza ve böylece hafızanın iyileşmesine yardımcı olabilir. Çalışmalar, protein eksikliği olan kişilerin sıklıkla sinirlilik, gerginlik ve sinirlilik gibi duygusal dengesizlik belirtileri gösterdiğini göstermiştir çünkü protein, duygu düzenleyici maddelerin sentezinin temelidir. İnsan vücudunun dopamin gibi nörotransmiterleri sentezlemesine ve böylece duyguları düzenlemesine yardımcı olabilir. Duygularımız mümkün olduğu kadar istikrarlı ve rahat olduğunda beynin bilgi işleme yeteneği en üst düzeye çıkarılabilir ve hafızamız da buna göre gelişecektir.
Özetle protein insan vücudu için gerekli olan önemli bir besindir ve aynı zamanda hafızanın geliştirilmesinde de yeri doldurulamaz bir rol oynar. Bu nedenle günlük beslenmemizde protein alımına odaklanmalı, vücudun çeşitli önemli organlarının işlevlerini geliştirmeli, düşünme yeteneğimizi ve duygusal istikrarımızı geliştirmeli, öğrenme ve çalışma konusunda giderek daha iyi performans göstermemizi sağlamalıyız. Belleği geliştirmemiz gerektiği görülebilir ve Cistanche hafızayı önemli ölçüde geliştirebilir çünkü Cistanche'nin antioksidan, anti-inflamatuar ve anti-aging etkileri vardır, bu da beyindeki oksidasyonu ve inflamatuar reaksiyonları azaltmaya yardımcı olabilir, böylece sağlığı korur. sinir sistemi. Ek olarak Cistanche, sinir hücrelerinin büyümesini ve onarımını da destekleyerek sinir ağlarının bağlantısını ve işlevini geliştirebilir. Bu etkiler hafızayı, öğrenme yeteneğini ve düşünme hızını geliştirmeye yardımcı olabilir ve ayrıca bilişsel işlev bozukluklarının ve nörodejeneratif hastalıkların ortaya çıkmasını önleyebilir.
Beyin fonksiyonunu iyileştirmek için hemen tıklayın
A, tau, -syn, TDP-43, Huntingtin veya prion proteini (PrP), ND'lerin patogenezine toplanabilen ve katkıda bulunabilen hastalığa özgü proteinlerin yalnızca birkaç örneğidir (Şekil 2).
Yanlış katlanmış protein agregatları hücresel toksisiteye neden olur ve sonunda nörodejeneratif patolojilerde hücre ölümüne yol açar. Her durumda, agregasyon süreci, ya protein fonksiyonunun kaybı (agregasyonun kendisinin bir sonucu olarak) ya da çözünür agregatların toksisitesi nedeniyle hastalığın ilerlemesinde önemli bir rol oynar [17,22].
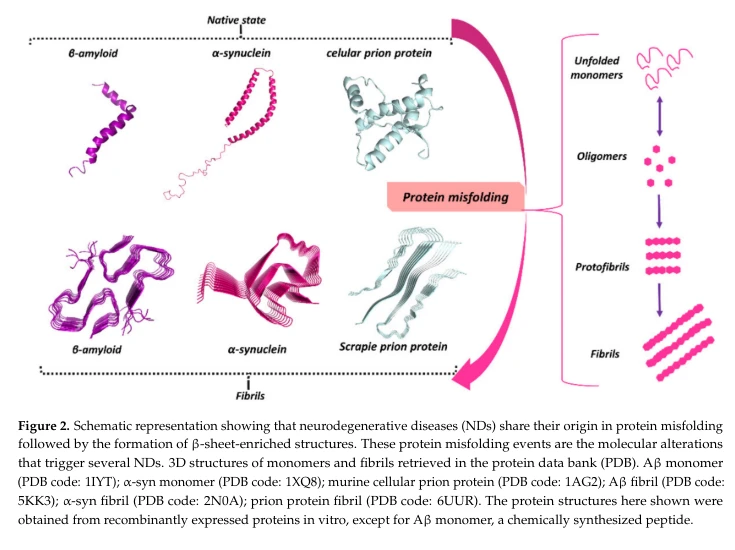
ND'lerin benzer bir yapıyı paylaşan agregatlarla ortak bir agregasyon yolundan kaynaklandığı göz önüne alındığında, bu agregatların benzer mekanizmalar yoluyla hücresel hasara neden olması şaşırtıcı değildir.
Bununla birlikte, yanlış katlanmış proteinler arasındaki temel farklılıklar, hücre içi veya hücre dışı agregatların konumuna ve fibrillerin stabilitesi de dahil olmak üzere çeşitli faktörlere bağlı olan konsantrasyonlarına bağlı olarak ortaya çıkar [93].
Proteinlerin yanlış katlanması, toplanması ve birikmesinin, proteinlerin biriktiği nöronlarda hasara yol açarak nörodejenerasyon sürecine neden olduğu iyi bilinmektedir [135].
Belirli bir protein, çoğu durumda dokularda fibriler birikintiler halinde toplanmasına ve birikmesine neden olan stabil bir alternatif konformasyona katlanabilir [136].
Artan kanıtlar, amiloid fibrillerinin toplanmasına, toplanan proteinlerdeki konformasyonel değişikliklerin eşlik ettiğini göstermektedir. Örneğin 'doğal olarak katlanmamış' polipeptitler A ve -syn, çözünebilir doğal durumlarında öncelikli olarak rastgele sarmal yapıya sahiptirler [24].
Bununla birlikte, fibrilojenez sürecinde (Şekil 3), yapıları bir yaprak yapısına dönüşür, bu da yaprak oluşumunun amiloid birleşme sürecini yönlendirdiğini düşündürür.
Ek olarak, in vitro deneyler, bu yanlış katlanmış proteinlerin, tipik olarak proteinlerin fibril uzamasından (büyüme fazı) önce oligomerler halinde birleştiği (gecikme fazı) ve fibrillerin ve serbest kaldığı bir platoda bir sigmoidal eğri sergileyen bir toplanma kinetiği profiline sahip çapraz yapıları kolayca oluşturduğunu göstermektedir. monomerler dengededir (doyma fazı) [137,138].

Aslında amiloid fibril oluşumu üç aşamadan oluşan karmaşık, çok aşamalı bir süreçtir: çekirdeklenme veya gecikme aşaması, uzama veya büyüme aşaması ve doyma aşaması.
Gecikme aşaması, monomerlerin yapısal yeniden düzenlemelere uğraması ve dimerler, trimerler ve/veya oligomerler halinde kendiliğinden birleşmesi ile başlar. Büyüme aşamasında, oligomerik çekirdek, çözeltideki monomerler için bir şablon görevi görür ve parçalanma, ikincil çekirdeklenme ve fibril birleşmesinin yardımıyla fibril uzamasıyla ilerler.
Son olarak fibril oluşumu, olgun fibriller ve monomerik türlerin konsantrasyonunun azalmasıyla doyma aşamasında bir dengeye ulaşır [138].
Özellikle, Stanley Prusiner'in PrP'nin, ciddi nöropatolojiyi hem yayabilen hem de tetikleyebilen yapısal bilgiyi kodlayan patolojik bir yapıya yanlış katlanabildiğini keşfetmesi, diğer ND'lerin anlaşılmasına önemli ölçüde katkıda bulunmuştur [139,140].
Diğer ND'lerin, özellikle AD (A vetau) ve PD'nin (-syn), yanlış katlanmış PrP ile en azından aynı özelliklerin bazılarını sergilediklerine dair kanıtlar artarken, protein yanlış katlanma bileşenine sahip birçok ND'ye artık 'prion benzeri' adı verilmektedir. [141,142].
Her ne kadar her ND'de farklı proteinler yer alsa da, proteinlerin yanlış katlanması ve toplanması süreci çarpıcı biçimde benzerdir. Yanlış katlanmış proteinler hücreler arasında aktarılır ve 'patolojik tohumlar' olarak adlandırılan şeye dönüşürler [136].
Deneysel çalışmalar, bu düzeneklerin, her bir bozukluğun tipik hücre içi ve/veya hücre dışı lezyonlarını oluşturmak üzere yeniden yapılanan ve biriken spesifik yanlış katlanmış proteinlerin prion benzeri tohumlanmış toplanmasından geldiğini ileri sürmektedir [135,143,144]. Prion paradigması böylece birçok ND'nin patogenezi için birleştirici bir moleküler temel olarak ortaya çıkmıştır [145].
Prion paradigması, belirli proteinlerin yanlış katlanmasının ve tohumlanmış toplanmasının, belirli bozuklukların temel nedeni olduğunu savunur. Bu keşfin, ND'lerin başlatılmasında ve ilerlemesinde yer alan mekanizmaların anlaşılmasının yanı sıra yeni tedavi ve tanı stratejilerinin tasarlanması açısından da büyük etkileri vardır.
Araştırmacılar artık protein yanlış katlanma bozuklukları için çeşitli stratejiler kullanan tedaviler geliştirmeye odaklanıyor. Bunlar arasında yanlış katlanmaya eğilimli hastalıkla ilgili proteinlerin üretiminin engellenmesi, yanlış katlanmış proteinlerin toplanmasının engellenmesi, toplanmış yanlış katlanmış proteinlerin uzaklaştırılması ve yayılmasının engellenmesi ve yanlış katlanmış proteinlerin toksik etkilerini hafifletmek için hücresel sistemlerin manipüle edilmesi yer almaktadır [19].
Protein yanlış katlanması ve toplanması birçok ND'nin önde gelen nedenleri olduğundan, çeşitli çalışmalar nörodejenerasyonla mücadele etmek için amiloid proteinlerinin fibrilizasyon sürecini hedefleme potansiyelini incelemiştir.
Bir dizi bileşiğin, protein yanlış katlanması ve toplanmasının potansiyel inhibitörleri veya modülatörleri olduğu tespit edilmiştir. Belirgin bir şekilde, tanımlanan umut verici moleküllerin çoğu, yanlış katlanmış A ve -syn'i hedef alır; bu moleküllerin oligomerlere ve amiloid plaklar gibi daha büyük agregatlara bağlandığı görülmektedir [146,147].
Bu tür bileşikler üç ana türe ayrılabilir: antikorlar, peptit inhibitörleri ve NP'ler gibi küçük molekül inhibitörleri [132]. Son olarak, ND'lerde yaygın bir neden ve patolojik mekanizma olarak protein yanlış katlanmasını destekleyen çok sayıda kanıt göz önüne alındığında, bunun önerildiği ileri sürülmüştür. bu tedavi edilemeyen bozukluklar için ortak bir tedavinin mümkün olabileceğine inanıyordu [24].
EGCG'nin birçok ND'ye karşı potansiyelinin, farklı ND'ler için ortak bir ilaç tedavisi geliştirme olasılığını güçlendirdiğini belirtmek önemlidir. Son yıllarda, doğal polifenol EGCG'nin protein yanlış katlanması ve toplanmasına karşı rolü geniş çapta incelenmiştir.
EGCG'nin fibrilizasyonu engelleme ve potansiyel olarak yanlış katlanmış agregat proteinlerin (A, tau ve -syn) parçalanmasını indükleme potansiyelini destekleyen çeşitli kanıtlar mevcuttur [148-151].
3.1. AD'de yanlış katlanmış A
A, AD patogenezinde yer alan yanlış katlanmış bir peptiddir ve toplanmış A peptidinden oluşan plak, AD patolojisinde belirgin bir şekilde öne çıkar; bu nedenle son yirmi yılda AD için test edilen ilaçların çoğu A peptidini hedeflemiştir [50,66].
A peptidleri, AD hastalarının beyinlerindeki senil plaklarda bulunan39–42-kalıntı uzunluğundaki peptidlerdir [61]. Bu peptitler, transmembran amiloid öncü proteininin (APP) metabolizması tarafından üretilen proteolitik fragmanlardır; bunlar daha sonra sulu çözeltide kendi kendine toplanıp, çözünür ve esas olarak yapılandırılmamış monomerlerden çözünmeyen düzenli fibrillere dönüşür.
A, hücre dışındaki fibrillerde toplanır toplanmaz, proteolitik bölünmeye karşı dirençli hale gelir [61,152]. APP'nin karmaşık bir enzim ailesi (-sekretazlar ve -sekretazlar) tarafından bölünmesi, esas olarak yapılandırılmamış monomerler olarak A peptidlerini serbest bırakır [152]. Birincil yapının hidrofobikliği göz önüne alındığında, A dört bölgeye ayrılabilir: iki hidrofobik bölge ve iki hidrofilik bölge.
İlk 16 N-terminal kalıntısı hidrofilik bir kuyruk oluştururken iki hidrofobik bölge, merkezi hidrofilik bölge E22-G29 ile ayrılan merkezi L17-A21 kısmı ve C-terminal A30-V40/A42'den oluşur.
İki A hidrofobik bölgesi -yapılara yönelik ikincil bir yapı eğilimi sergiler. Bu bölgeler geçici olarak konformasyonları benimser ve daha sonra geçici olarak bir saç tokası şeklinde katlanabilir.
Solüsyondaki A monomerlerinin geçici saç tokası benzeri bir yapıya sahip olduğu, oysa D23 ila K30 kalıntılarının saç tokası oluşumunda doğrudan yer aldığı ileri sürülmüştür [152]. Daha önce belirtildiği gibi, senil plakların zararlı özelliklerine rağmen, çok sayıda kanıt çözünebilir oligomeriklerin rol oynadığını göstermektedir. En nörotoksik moleküler tür olarak A [70,153,154].
A peptidlerinin yanlış katlanması ve hücre dışı toplanması, AD ilerlemesinin ana nedeni olarak kabul edilmiş olup, toksik A oligomerlerinin oluşumuna ve beyinde -amiloid plakların birikmesine yol açmaktadır [61]. Oligomerik A türünün geçerli bir biyolojik hedefi temsil edebileceği ileri sürülmüştür [66,155,156].
3.2. PD'de yanlış katlanmış -Syn
-syn proteini ağırlıklı olarak sinaptik bölgelerde lokalize olup burada monoamin taşıyıcılar, hücre iskeleti bileşenleri, lipit membranlar, şaperonlar ve sinaptik vezikül (SV) ile ilişkili proteinler gibi birçok ortakla etkileşime girer [157].

-syn monomeriktir ve fizyolojik formunda düzensizdir, ancak bazı çalışmalar in vivo sarmal bir tetramer benimseyip benimsemediğini tartışmaktadır [158-160]. Yanlış katlanmış -syn'in hücre içi toplanmasının PD ile bağlantılı olmasına ek olarak, aşağıdaki gibi diğer ND'lerde de suçlanmıştır. AD, çoklu sistem atrofisi (MSA) ve Lewy cisimcikli demans.
Ayrıca, sinükleinopatiler adı verilen bir bozukluk grubu, yaşamın ilerleyen dönemlerinde ortaya çıkabilecek -syn proteini açısından zengin kalıntıların birikmesiyle karakterize edilir [161,162]. Bu sinükleinopatilerde -sin agregasyonu sürecinde farklı tipte agregat türlerin (oligomerler, protofibriller, fibriller ve diğerleri) oluştuğu ve en azından bazılarının nörotoksik olabileceği ve nörodejenerasyona yol açabileceği düşünülmektedir [163].
Bu nedenle, -syn'in nöronal birikimini hedeflemek, PH ve diğer sinükleinopatilerin ilerlemesini geciktirmek için potansiyel bir yöntem olarak caziptir [164].
140-amino asit -syn, insan kromozomu 4'teki SNCA geni tarafından kodlanan 14 kDa'lık bir nöronal proteindir [165]. Birincil amino asit dizisi üç ana alana bölünebilir: N-terminal alanı (1-60), merkezi alan (61-95) ve C-terminal alanı (96-140).
Çok tekrarlı bir konsensus dizisi (KTKEGV) içeren ve -sarmal bir eğilime sahip olan N-terminal alanı, membranlar ve düzensiz, asidik bir karboksi ile etkileşimlerinin modüle edilmesinde çok önemli bir rol oynayan anamfipatik lizin açısından zengin amino terminali ile karakterize edilir. terminal kuyruğu. Kuyruk, nükleer lokalizasyonunu ve metaller, küçük moleküller ve proteinlerle etkileşimlerini düzenlemede rol oynamıştır.
-syn'in merkezi bölgesi, AD amiloid plaklarının (NAC) amiloid olmayan bileşeni olarak bilinen ve -tabaka yapısını elde ederken -syn toplanmasında rol oynayan oldukça hidrofobik bir motifi içerir. NAC bölgesi -syn toplanması için vazgeçilmezdir.
C-terminal alanı negatif yüklü ve prolin kalıntıları ile zenginleştirilmiştir ve polipeptide esneklik sağlar [166,167]. -syn'in NAC bölgesi, proteinin yanlış katlanması için yüksek bir eğilim sağladığından, aynı zamanda fibriller olarak da adlandırılan -yaprak amiloid düzeneklerini oluşturur. patolojik durumlar. Bununla birlikte, amiloid fibrillerdeki -syn birleşimi dinamiktir ve ara oligomerik türlerin varlığı kapsamlı bir şekilde incelenmiştir [164].
Oligomerik A'-syn oligomerlerine benzer şekilde, daha büyük fibriler topluluklardan daha fazla nörotoksik etkiye neden olurlar, bu da onların ana patojenik türler olabileceği sonucunu doğurur [168].
Toksik ara madde hipotezi bu görüşe dayanmaktadır; toksik oligomerlerin, amiloid gözenek oluşumu yoluyla zarların bütünlüğünü bozduğunu, fibriler son ürünlerin ise sadece detoksifikasyonun bir yan ürünü olduğunu öne sürmektedir.
Bu görüş, fibril içeren Lewy cisimciklerinin sıklıkla sağlıklı dopaminerjik nöronlarda bulunması gerçeğiyle desteklenmektedir [169-171].
4. Nörodejeneratif Hastalıkların Tedavisinde EGCG
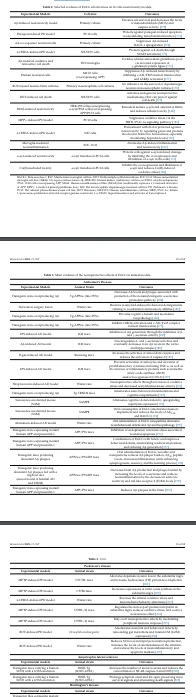
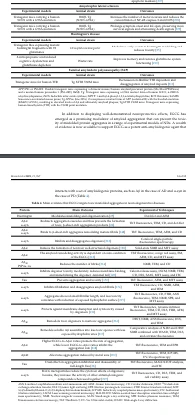
ND tedavisinde yeşil çay kullanmanın büyük potansiyeli ışığında, yeşil çay kateşinleri, in vitro ve in vivo çalışmalar ve klinik denemeler de dahil olmak üzere kapsamlı bir şekilde incelenmiştir [16,117]. Yeşil çayın ana biyoaktif bileşiği olan EGCG'nin terapötik potansiyeli, artık ND araştırmalarında iyi bilinmektedir [10]. Son 20 yılda, EGCG'nin farklı in vitro ve in vivo modellerde EGCG'nin oksidatif strese karşı koyduğu ve AD ve PD benzeri fenotipleri iyileştirdiği gösterilmiştir (Tablo 2 ve 3).
4.1. İn Vitro Nörotoksisite Modellerinden Kanıtlar
1990'larda, A kaynaklı nörotoksisite modeliyle yapılan çalışmalar, A 1-42 varlığının nörotoksisiteye ve artan protein oksidasyonuna ve bunun sonucunda oksidatif strese yol açtığını gösterdi [220-222].
A proteininin nörotoksisitesine oksijensiz radikaller aracılık eder ve antioksidanlar ve serbest radikal temizleyiciler tarafından hafifletilebilir. Oksidatif stresin antioksidan bileşiklerle zayıflatılması bu nedenle AD'nin tedavisinde potansiyel bir terapötik strateji olabilir.
2000'li yılların başlarında, yeşil çay polifenol EGCG'nin güçlü antioksidan özellikleri, kültürlenmiş hipokampal nöronlar kullanılarak A kaynaklı bir nörotoksisite modelinde araştırıldı; sonuçlar, EGCG'nin, reaktif oksijen türlerini temizleyen A kaynaklı nöronal apoptoza karşı koruyucu etkilere sahip olduğunu ortaya koydu. AD'nin önlenmesinde EGCG'nin faydalarına ilişkin ilk raporların arasında yer almaktadır [172].
Daha sonra, A kaynaklı nörotoksisite modelinde EGCG'nin nöroprotektif etkisinin altında yatan moleküler mekanizma, antioksidan özelliklere sahip indirgenmiş glutatyonun hücresel metabolizmasına odaklanılarak araştırıldı. Sonuçlar, EGCG tedavisinin, -glutamilsistein ligazın yüksek ekspresyonu yoluyla hücresel glutatyon havuzunu güçlendirdiğini gösterdi [176].
Oksidatif stresin ayrıca, APP işlemede ve A oluşumunda hız sınırlayıcı enzim olan ve AD için terapötik bir hedef olan nöronal hücrelerde BACE-1 proteininin yukarı regülasyonunu indüklediği de gösterilmiştir [223,224]. A 1-42 tonöronal kültürüne maruz kalma BACE-1 protein düzeylerini arttırmasına rağmen, EGCG tedavisi A'nın indüklediği radikal oksijen üretimini ve -tabaka yapısı oluşumunu önemli ölçüde zayıflattı [174].
2010'ların başında, EGCG'nin hücresiz analizlerde A ve -sin fibrillogenezini inhibe ettiği biliniyordu; araştırmacılar daha sonra EGCG'nin bir hücre modeli sisteminde çözünmeyen A ve -syn agregatlarını yeniden modelleyip şekillendiremeyeceğini araştırdılar [148].
Bu araştırma, EGCG'nin, olgun A ve -syn fibrillerinin hücresel toksisitesini, yapılarını yeniden şekillendirerek azaltabildiğini gösterdi. -yaprak bakımından zengin amiloid yapıların EGCG aracılı yeniden yapılanması, memeli hücreleri için toksik olmayan daha küçük amorf protein agregatlarının ortaya çıkmasına yol açar [148]. 2017 yılında, EGCG'nin koruyucu etkilerini araştırmak için -syn transdüksiyonlu PC12 hücrelerinin kullanımı gerçekleştirildi. Bu, EGCG'nin hücrelerde -syn'in aşırı ekspresyonunu ve fibrilasyonunu inhibe ederek bu hücreleri -syn'in neden olduğu hasara karşı koruyabildiğine dair kanıt sağlamaktadır [151].
Daha yeni bir çalışma, EGCG'nin Cu(II) kaynaklı -syn fibrilasyonuna müdahale edebildiğini ve hücre canlılığını koruyabildiğini bildirdi. Araştırmacılar, EGCG'nin Cu(II) kaynaklı reaktif oksijen türlerinin (ROS) oluşumunu inhibe ettiğini, bunun hücrelerde -syn'in aşırı ekspresyonunun ve fibrilasyonunun azalmasına yol açtığını gösterdi. Ayrıca Cu ve EGCG'nin kombinasyonu, tek başına EGCG'den daha iyi kriyo koruma sergiledi. Burada Cu(II)'nin aynı zamanda fibrilasyonu ve protein agregasyonunu hızlandıran bir anoksidan olduğunu belirtmekte fayda vardır [183].
Ayrıca, 6-hidroksidopamin(6-OHDA), 1-metil-4-fenil{{4 }},2,3,6-tetrahidropiridin (MPTP), rotenon (ROT) veparakuat. EGCG, ROT'a karşı olmasa da parakuat, 6-OHDA ve MPP+ nörotoksisitesine karşı olağanüstü nöronal koruma göstermiştir [173,175,178,180,181].
EGCG'nin ROT ile tedavi edilen ayrışmış mezensefalik kültürler ve organotipik striatal kültürler üzerindeki nöroprotektif etkilerinin değerlendirilmesinde, EGCG, nitrik oksidin (NO) indirgenmesi yoluyla striatal dilim kültürlerinde ROT'un etkilerini kısmen ortadan kaldırdı ancak hücreleri ROT toksisitesine karşı ayrıştırmadı [178] .

Her ne kadar son çalışma, EGCG'nin hücre modellerinde ROT kaynaklı nörotoksisiteye karşı koruma sağladığını göstermese de, yakın zamanda EGCG'nin ROT kaynaklı PD modelleri üzerinde in vivo nöroprotektif bir etkiye sahip olduğu rapor edilmiştir [206,207]. İn vitro nörotoksisite modellerinden elde edilen bu sonuçlar birlikte, EGCG'nin ND'leri tedavi etmek için nöroprotektif bir ajan olarak kullanılabileceği fikrini desteklemektedir.
For more information:1950477648nn@gmail.com


