Parkinson Hastalığının Tedavisinde ve Teşhisinde Grup I MGluR'ler: MGluR5 Alt Tipi Bölüm 1'e Odaklanma
Apr 24, 2023
Soyut
Metabotropik glutamat reseptörlerinin (mGluR'ler; C sınıfı G-protein-bağlı reseptörlerin üyeleri) uyarıcı nörotransmisyonu modüle ettiği, presinaptik hücre dışı glutamat seviyelerini düzenlediği ve dendritik dikenler üzerindeki postsinaptik iyon kanallarını modüle ettiği gösterilmiştir. mGluR'lerin sinaps oluşumunu, uzun vadeli güçlendirmeyi, otofajiyi, apoptozu, nekroptozu ve proinflamatuar sitokinlerin salınımını düzenlemek için sayısız sinyal yolunu aktive ettiği bulundu. mGluR'lerin ünlü bir ifade modeli, Alzheimer hastalığı, Parkinson hastalığı, Huntington hastalığı ve şizofreni dahil olmak üzere birçok nörodejeneratif hastalıkta belirgindir. Çeşitli mGluR'ler arasında mGluR5, nörodejeneratif hastalıklar ve nöropsikiyatrik bozukluklarda en çok araştırılan prospektif terapötik hedefler ve potansiyel tanı araçları türlerinden biridir. Son araştırmalar, mGluR5 radyoligandlarının nörodejeneratif hastalık ilerlemesini değerlendirmek ve ilgili ilaçların kinetik özelliklerini izlemek için potansiyel bir araç olabileceğini gösterdi. Bu makale, PD'nin ilerlemesi ve olası tedavisinde grup I mGluR'ler, özellikle mGluR5 hakkında fikir vermektedir.
anahtar kelimeler
glutamat sinyali; metabotropik glutamat reseptörleri; C G-protein-bağlı reseptörler; nörodejeneratif hastalıklar; Pozitron emisyon tomografi; radyoligandlar;Cistanche faydaları.
Bilmek için buraya tıklayınCistanche'ın etkileri
giriiş
Memeli merkezi sinir sisteminin (CNS) en önemli uyarıcı nörotransmitteri olan glutamat, hafıza ve sinaptik plastisite geliştirmede kritik bir role sahiptir. Bununla birlikte, glutamat hiperaktivasyonu, nörodejeneratif hastalık patolojisinden önce gelebilir ve/veya abartabilir [1,2]. İyonotropik glutamat reseptörleri (iGluR'ler) ve metabotropik glutamat reseptörleri (mGluR'ler) olmak üzere iki farklı glutamat reseptörü vardır. Uyarıcı nörotransmisyonu hızla destekleyen ligand kapılı iyon kanalları olan iGluR'lerin aksine [3], mGluR'ler G-protein ayrışmasını destekler. mGluR'ler G - G proteinlerini ayırır ve G aracılı hücre içi ikinci haberci seviyesini veya aracılı iyon kanalı düzenlemesini arttırır ve kanonik olmayan yolları uyarır [4,5]. mGluR'ler, c sınıfı G-protein-bağlı reseptörlere (GPCR'ler) aittir ve şimdiye kadar sekiz alt tip tanımlanmıştır. Bu alt tipler ayrıca fenotiplere ve hücre içi sinyalleşmeye göre üç alt kategoriye ayrılır [6-8]. Grup I, G q/11 G-proteinlerine bağlanan mGluR1 ve mGluR5'ten oluşur ve hücre içi Ca2 artı akışı destekler [9,10]. Grup II, mGluR2 ve mGluR3'ü içerir; ve mGluR4, mGluR6, mGluR7 ve mGluR8, grup III mGluR'lere aittir [8]. Hem grup II hem de III mGluR'ler, Gi yoluyla adenilil siklazı negatif olarak düzenler ve oto-reseptör eylemi yoluyla glutamat veya -aminobutirik asit (GABA) salınımını inhibe edebilirler [11].
İkinci en yaygın nörodejeneratif hastalık olan Parkinson hastalığı (PD), motor ve motor olmayan sakatlık belirtileri ile karakterizedir ve bu kronik progresif nörodejeneratif hastalık çoğunlukla yaşlı yetişkinleri etkiler, ancak gençleri de etkileyebilir. Artan kanıtlar, glutamat ve dopaminin nigrostriatal, mezokortikal ve mezolimbik sistemlerde nörotransmisyonu düzenlediğini göstermektedir [1-4]. Bununla birlikte, bu karşılıklı sinyalleşmenin, artan mGluR ekspresyonunun substantia nigra'daki [6] dopaminerjik nöronların zehirlenmesine yol açtığı PD'yi [5] bariz bir şekilde etkilediği gösterilmiştir. Presinaptik membranda glutamat geri alımının bozulması nedeniyle patolojik durumda artan glutamat salınımı, hücre dışı glutamat konsantrasyonunu arttırır. Aşırı glutamat salınımı, Na artı ve Ca2 artı konsantrasyonunu artırabilir ve bu, Parkinson hastalığında doğrudan nöronal hücre ölümüne ve nörodejenerasyona neden olabilir. Ek olarak, aktive edilmiş mikroglia ve reaktif astrositler, salınan büyük miktarda glutamatı artırarak durumu şiddetlendirebilir.
Önemli kanıtlar, glutamaterjik antagonistler tarafından farmakolojik inhibisyonun veya grup 1 mGluR'lerin negatif allosterik modülasyonunun, PD hayvan modellerinde dopaminerjik nöronları ve diskineziyi iyileştirdiğini gösterdiğini göstermektedir [12-14]. Spesifik olarak mGluR5'i hedeflemek, motor ve/veya bilişsel bozukluğu iyileştirebilir. Bu çalışmalar, grup 1 mGluR ifadesindeki anormalliklerin PD ilerlemesi veya abartması ile patolojik bir bağlantısı olabileceğini düşündürmektedir; bu nedenle, glutamat reseptörleri, yeni ilaç tasarımı için heyecan verici hedeflerdir.
Hem PD hastalarının hem de hayvan beyinlerinin değerlendirilmesi, PD'nin iyi bilinen bir ayırt edici özelliği olan yüksek -sinüklein (S) agregasyon seviyeleri [15] ile orantılı olarak ilişkili olan mGluR5 ekspresyonunun yukarı regülasyonunu bildirmiştir. Buna karşılık, bazı çalışmalar, S'nin N-terminal bölgesinde mGluR3'e değil, seçici olarak mGluR5'e bağlandığını ve mikroglia aracılı nöroinflamasyonu uyardığını bildirmiştir [16]. Patolojik bağlantıyı aydınlatmak için PD'de oldukça spesifik bir mGluR5 radyofarmasötiğinin küçük, tek bölgeli denemeleri yapılmıştır; ancak, sonuç karmaşıktır veya sonuçsuzdur [17,18]. Bu gözden geçirme, mGluR5'in PD ilerlemesindeki en son bulguları tartışarak, bunun yeni terapötiklerin tasarlanmasındaki ve PD teşhisindeki önemini vurgulamaktadır.
Cistanche hapları
Grup I mGluR'lerin Beyindeki Lokalizasyonu
Grup I mGluR'lerin üyeleri beyin boyunca yaygındır. mGluR1, serebellar korteks nöronlarında, olfaktor ampulde, lateral septumda, globus pallidusta, entopedinküler çekirdekte, ventral pallidumda, magnoselüler preoptik çekirdekte ve talamik çekirdeklerde yüksek oranda ifade edilir [19-21]. mGluR5 çoğunlukla telensefalonda, özellikle serebral korteks, hipokampus, subikulum, olfaktör ampul, striatum, nükleus akumbens ve lateral septal nükleusta eksprese edilir [22-24]. Omuriliğin yüzeysel dorsal boynuzunda yüksek bir mGluR5 ekspresyonu görülebilir [8]. Hipokampus, serebellum, koku ampulü ve talamusun CA3 bölgesinde, mGluR1'in yüksek oranda ifade edildiği gözlemlenirken, mGluR5'in hipokampus, korteks, striatum ve koku ampulünün CA1 ve CA3 bölgesinde yüksek ifadeye sahip olduğu gözlemlenmiştir [25]. . Sıçan ve maymun beyinlerinin kullanıldığı karşılaştırmalı bir çalışma, plazma zarında yüksek yoğunluklu mGluR1 ifadesinin bulunduğunu, oysa büyük miktarda mGluR5'in substantia nigra'nın hücre içi bölmesinde ifade edildiğini gösterdi. Plazma zarına bağlı grup I mGluR'ler, esas olarak ekstrasinaptiktir veya sıçanlarda ve maymunlarda simetrik, GABAerjik ve striatonigral sinapsların ana gövdesinde eksprese edilir [21].
Her iki reseptör de beyin gelişimi sırasında lokalizasyonlarında ve ekspresyonlarında alt tipe özgü varyasyonlar göstermiştir [26,27]. Örneğin mGluR1 ekspresyonu, gelişim fazı sırasında hem hipokampusta hem de neokortekste kademeli olarak artar [26]. Kortekste, mGluR5a ekspresyonu postnatal ikinci haftada zirveye ulaşır ve ardından düşer [26], mGluR5b mRNA düzeyi postnatal olarak artar ve bu alt tip ağırlıklı olarak erişkinlerde eksprese edilir [28].
Grup I mGluR'lerin aktivasyon ve ekspresyon paterni, korteksin gelişim fazı sırasında nörogenez ve sinaptogenezin çeşitli yönlerinde düzenleyici bir role sahip olabilir [28,29]. Beynin bir bölgesindeki grup I mGluR'lerin dağılım paterni, bunların farklı işlevleriyle ilgilidir. mGluR1 ve mGluR5'in mikroskobik analizi, sinaptik bağlantıların etrafındaki perisinaptik halkada postsinaptik membranların dışında lokalize olduklarını göstermiştir [30]. Grup I mGluR'ler ayrıca beyin dışındaki periferik hücrelerde de bulunur, nosiseptif sinyal iletimini ve inflamatuar ağrıyı düzenler [31].
Hücre özgüllüğü açısından, mGluR'lerin çoğu nöronal hücrelerde eksprese edilse de, istisnai olarak, mGluR3 ve mGluR5 beyin boyunca glial hücrelerde eksprese edilmiştir. Bununla birlikte, hücre genotipik varyasyonu, farklı hücre tiplerinde mGluR'lerin ekspresyonundaki farklılığın nedeni olacaktır. Bu bağlamı açıklığa kavuşturmak ve korteksteki farklı hücre tiplerinde mGluR ifade yoğunluğunun bir veritabanını oluşturmak için Zhang ve ark. (2014) [32], saflaştırılmış nöronların, astrositlerin, mikrogliaların ve fare korteksinden oligodendrositlerin çeşitli olgunlaşma durumlarının RNA-Seq'ini kullanarak yüksek çözünürlüklü bir transkriptom gerçekleştirmiştir. Bu çalışma mGluR1'in çoğunlukla nöronlarda ifade edildiğini, oysa mGluR5'in astrositlerde korteksteki nöronlardan daha yoğun ifadeye sahip olduğunu gösteriyor.
Grup I mGluR'ler Beyinde Sinyal Veriyor
Grup I mGluR'lerin Temel Sinyalizasyonu
Grup I mGluR'nin her iki üyesi de doğal ligand bağlanması için hücre dışı bir alan ve sentetik allosterik modülatör bağlanması için yedi-transmembran alan (7TM) içerir. mGluR1 ligand bağlama bölgesi, iki küresel alanı bir menteşe bölgesi ile ayıran ve bir ligandın yokluğunda sırasıyla açılıp kapanarak reseptörlerin dinlenme veya aktif formunu ifade eden bir kristal yapıya sahiptir [33]. İzole 7TM bölgesinin insan mGluR1 ve mGluR50 kristal yapıları iyi çalışılmıştır [34,35]. İlginç bir şekilde, bu yapısal araştırmalar, mGluR1'in, A sınıfı GPCR'ler gibi 2. hücre dışı döngü konumunda büyük bir saç tokası onayına sahip olduğunu buldu. Bir başka ilginç gözlem ise, mGluR1'in transmembran bölgesinin TM1-TM1 etkileşimleriyle bir dimer oluşturabilmesi ve bu etkileşimlerin kolesterol molekülleri tarafından stabilize edilmesiydi [34].
Grup, I mGluR aktivasyonunun, büyük ölçüde mGluR1 (D854) ve mGluR5'in (T840) G-protein birleştirme alanındaki tek bir amino asit kalıntısı nedeniyle farklı frekanslarda sayısız osilatör tepkiyi indüklediği rapor edilmiştir [25]. Ayrıca, plazma zarının lipid içeriği, grup I mGluR'lerin aktivitesi üzerinde bir etkiye sahip olabilir. Bu grubun her iki üyesinin de lipitle zenginleştirilmiş bir ortama sahip zarlarda bulunduğu görülmüştür [36,37]. Bununla birlikte, bu reseptörlerden hiçbirinin lipid açısından zengin sallarla ilişkili olduğu görülmedi, bu da ilişkinin geçici olabileceğini düşündürüyor. Bir çalışma, lipid sal ve mGluR1 arasındaki bu ilişkinin, zarın kolesterol içeriğine bağlı olduğunu ve agonist bağlanmasıyla geliştirilebileceğini bildirdi [38]. TM5 ve reseptörün üçüncü hücre içi halkası, reseptörün agonist aracılı aktivasyonunu artırarak zardaki kolesterol seviyelerini artıran bir kolesterol bağlama motifine sahiptir. Bununla birlikte, kolesterol seviyesindeki azalma, mGluR1-bağımlı hücre dışı sinyalleme tarafından düzenlenen kinaz (ERK) sinyal aktivasyonunu inhibe eder [25,38]. Bu veriler, lipit salları ve zar kolesterolü tarafından grup I mGluR sinyal aktivasyonunun ilişkisini ve pozitif düzenlemesini gösterir.

Herba Cistanche
Grup I mGluR'ler, aşağı akışta fosfolipaz Cı'i (PLC 1) uyaran ve diasilgliserol (DAG) ve inositol-1,4,5-trifosfatı etkinleştiren G-proteini G q/11'e pozitif olarak bağlanır (IP3). IP3 reseptörleri (IP3R) daha sonra hücre içi Ca2 plus salınımını tetikler [8], oysa plazma membranındaki DAG, ekstraselüler Ca2 plus ile birlikte protein kinaz C'yi (PKC) aktive eder ve fosfolipaz D (PLD), fosfolipaz A2'yi (PLA2) aktive eder. ve mitojenle aktive olan protein kinaz (MAPK'ler) yolakları [39]. PKC'nin mGluR5 aracılığıyla aktivasyonu da NMDAR'ı uyarabilir [40]. Bununla birlikte, bir Ca2 artı kanala bağımlı fosfataz olan kalsinörinin N-metil-D-aspartat reseptörüne (NMDAR) bağımlı aktivasyonu, mGluR5'in PKC aracılı desensitizasyonunu tersine çevirir [41]. Ek olarak mGluR1, Ca2 artı -, kalmodulin- ve Src'ye bağlı prolin açısından zengin tirozin kinaz (Pyk2) aktivasyonu yoluyla kortikal nöronlardaki NMDAR kaskadını yukarı regüle edebilir [42]. Ek olarak, mGluR1/5- aracılı Homer protein etkileşimleri de önemlidir. Homer, IP3'ü fosforilleyebilir ve NMDAR protein kompleksinin parçası olan riyanodin reseptörlerini ve Shank proteinlerini aktive edebilir [43,44]. Homer proteinleri ve mGluR1/5'in eşleşmesi ayrıca fosfoinositid 3-kinaz (PI3K), fosfoinositide bağımlı kinaz (PDK1) ve PI3K arttırıcıyı (PIKE) dahil ederek Akt'yi aktive eder ve bu da nörokorumaya yol açar (Şekil 1) [45 ,46]. Grup I mGluR'ler G q/ll'e bağlansa da, bu reseptörlerin aşırı ekspresyonu Gs ve G i/o'ya da bağlanma gösterdi. Benzer şekilde, mGluR1a'nın Gi/o'ya bağlandığı ve aşırı eksprese edilmiş Çin hamsteri yumurtalık (CHO) hücrelerinde cAMP stimülasyonuna yol açtığı gösterilmiştir [47]. Bu örnek, grup I mGluR'lerin çeşitli G-proteinlerine bağlanabileceğini ve bunların anlaşılmasının, bu reseptör mekanizmalarının in vivo olarak da anlaşılmasına yol açabilecek doğal formdaki endojen reseptör mekanizmalarını ortaya çıkarabileceğini göstermektedir.

Ayrıca, bir grup I mGluR'ler, IP3- ile uyarılan Ca2 artı salınımı, Homer proteinleri ve Pyk2 [48,49] aracılığıyla ERK sinyalleme kaskadını da modüle eder. ERK aktivasyonu, hücre büyümesinin, farklılaşmasının ve hayatta kalmasının yanı sıra beyin kaynaklı nörotrofik faktör (BDNF) [50] gibi nörotrofik faktörlerin artması için önemlidir; bu, grup I mGluR aracılı nöro korumanın aktivasyona dayanabileceğini gösterir. ERK sinyalizasyonu. Bununla birlikte, yukarıda tartışıldığı gibi, mGluR5 glial hücrelerde nöronlardan daha fazla eksprese edilir, özellikle astrositlerde (Şekil 2), burada IP3 ile kompleksler oluştururlar ve glutamat salınımını kolaylaştırmak ve astrositlerin apoptozisine katkıda bulunmak için hücre içi Ca2 plus'ı arttırırlar. 51–54]. Çalışmalar ayrıca kortikal ve hipokampal astrositlerde mGluR5 aktivasyonunun, MAPK yolaklarını ve PLD sinyalini uyarabildiğini bulmuştur [55,56]. Bir agonist tarafından mGluR5'in seçici aktivasyonu, G q-sinyal iletim yolu yoluyla mikroglial aktivasyonu ve ilişkili nöroinflamasyonu ve nörotoksisiteyi inhibe eder [57].
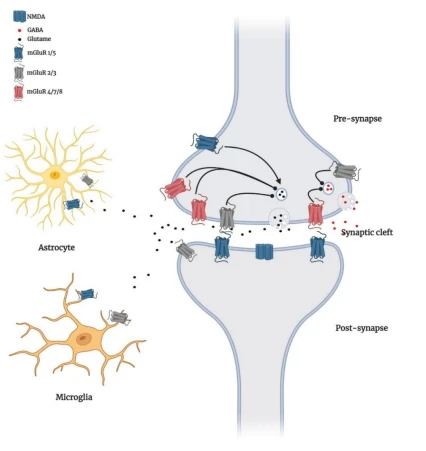
Grup I mGluR Duyarsızlaştırma ve Ticareti
Birçok GPCR, reseptörleri uzun süreli aşırı stimülasyondan korumak için ikinci haberci yolunun aktivasyonu yoluyla duyarsızlaştırmaya tabi tutulur. Desensitizasyon, belirli bir GPCR'nin ilgili G-proteininden ayrılmasından kaynaklanır. Birkaç GPCR duyarsızlaştırma mekanizması değerlendirilmiştir ve gözlemler, sürecin reseptör tipi, ligand tipi ve sistem tipi dahil olmak üzere çeşitli gerçeklere bağlı olduğunu göstermektedir [59-61]. Fosforilasyon, bazı GPPCR duyarsızlaştırmasında çok önemli bir rol oynar; fosforilasyon, reseptörün, G-protein eşleşmesine müdahale eden ve ikinci haberci yolu oluşumuna yol açan -arrestin gibi adaptör proteinlere bağlanmasına yol açar [59]. Diğerleri için, endositoz desensitizasyonda çok önemli bir rol oynar [61].
Şimdiye kadar grup I mGluR'lerin birkaç kinaza bağlı duyarsızlaştırması test edildi ve grup I mGluR'lerin agonist aracılı duyarsızlaştırmasında PKC'nin önemli olduğu görüldü. Örneğin, mGluR1a'nın PKC tarafından fosforilasyonu, reseptörün desensitizasyonuna yol açar [62]. İlginç bir şekilde, PKC aktivasyonunun Gq'ya bağlı mGluR1 yolunu etkilediği, ancak reseptörün cAMP yoluna bağlanmasını etkilemediği gösterilmiştir. Bu veriler mGluR1'in PKC aktivasyonu yoluyla seçici duyarsızlaşmasını göstermektedir [10]. mGluR5'in duyarsızlaştırılması, mGluR1'den çok iyi çalışılmıştır. mGluR5'te birkaç serin/treonin tortusunun mevcudiyeti, muhtemelen PKC aracılı desensitizasyon işleminde yer alır. mGluR5 bir kalmodulin bağlama bölgesine sahiptir ve bazal durumda kalmodulin, reseptörün S881 ve S890 amino asit kalıntı bölgeleri bölgesinde mGluR5 ile etkileşime girer ve PKC'nin bu iki bağlanma bölgesini fosforile ettiği gösterilmiştir [63]. Kalmodulin'in fosforilasyon yoluyla mGluR5'e bağlanmasının PKC aracılı inhibisyonunun aksine, kalmodulin, reseptörün PKC'ye bağlı fosforilasyonunu inhibe edebilir [64]. Bu veriler, PKC'ye bağlı fosforilasyonun ve kalmodulin bağlamanın birbirini dengelediğini göstermektedir. Başka bir ikinci haberciye bağımlı protein kinaz olan PKA, grup I mGluR duyarsızlaştırma işleminde ters etki gösterir. PKA aktivasyonu, adaptör proteinlerin reseptörün C-terminalinden ayrışmasıyla sonuçlanır ve reseptör endositozunun inhibisyonuna ve mGluR1'in agonist bağımlı desensitizasyonuna yol açar [62]. Birçok GPCR duyarsızlaştırması için, G-protein bağlı reseptör kinazlar (GRK'ler) çok önemli bir rol oynar. Reseptörün spesifik kalıntılarının GRK aracılı fosforilasyonu, reseptörü ilgili G-proteinlerinden ayıran -arrestinin bağlanmasıyla sonuçlanır [59-61]. GRK'lerin, HEK293 hücrelerinde ve birincil nöronlarda heterolog olarak eksprese edildiğinde, grup I mGluR'nin her iki üyesinin desensitizasyonunu düzenleyebileceği birkaç çalışma tarafından öne sürülmüştür [65-67]. GRK2, fosforilasyondan bağımsız gibi görünen mGluR1 ve mGluR5'in desensitizasyon sürecine dahil olmuştur [66,68]. Tersine, GRK4 serebellar Purkinje nöronlarında mGluR1'in seçici desensitizasyonunu göstermiştir, ancak mGluR5'i göstermemiştir [67]; benzer şekilde GRK5, mGluR1-aracılı Purkinje cirosunu [69] etkiler. GRK'lar tipik olarak substrat özgüllükleriyle sınırlı olmadığından, grup I mGluR'lerde GRK aracılı artık modifikasyon bulmak zor olmuştur.

Cistanche takviyeleri
Referanslar
1. Ferraguti, F.; Crepaldi, L.; Nicoletti, F. Metabotropik Glutamat 1 Reseptörü: Güncel Kavramlar ve Perspektifler. Eczane. Rev. 2008, 60, 536–581.
2. Cakarya, M.; Park, S.-Y.; Haque, ME; Karthivashan, G.; Kim, I.-S.; Ganesan, P.; Choi, D.-K. Nörodejeneratif Hastalık Modelinde Nörotoksik Madde Kaynaklı Yaralanma: Glutamat Reseptörlerinin Tutulmasına Odaklanma. Ön. Mol. Nörobilim. 2018, 11, 307.
3. Dingledine, R.; Borges, K.; Bowie, D.; Traynelis, SF Glutamat reseptörü iyon kanalları. Eczane. Rev. 1999, 51, 7–61.
4. Pim, J.-P.; Galvez, T.; Prézeau, L. Aile 3/C G-protein-bağlı reseptörlerin evrimi, yapısı ve aktivasyon mekanizması. Eczane. orada 2003, 98, 325–354.
5. Willard, SS; Koochekpour, S. Glutamat, Glutamat Reseptörleri ve Aşağı Akış Sinyal Yolları. Int. J. Biol. bilim 2013, 9, 948–959.
6. Gerber, Ü.; Tanrım, C.; Benquet, P. Metabotropik glutamat reseptörleri: Hücre içi sinyal yolları. Curr. görüş. Eczane. 2007, 7, 56–61.
7. Pim, J.-P.; Duvoisin, R. Metabotropik glutamat reseptörleri: Yapı ve fonksiyonlar. Nörofarmakoloji 1995, 34, 1–26.
8. Ribeiro, F.; Vieira, LB; Pires, RG; Olmo, RP; Ferguson, SS Metabotropik glutamat reseptörleri ve nörodejeneratif hastalıklar. Eczane. Res. 2017, 115, 179–191.
9. Abdul-Ghani, MA; Valiante, TA; Carlen, PL; Pennefather, IP3 üretimine bağlanan PS Metabotropik glutamat reseptörleri, sıçan dentat granül nöronlarında IAHP'nin inhibisyonuna aracılık eder. J. Neurophysiol. 1996, 76, 2691–2700.
10. Dhami, GK; Ferguson, SS Metabotropik glutamat reseptörü sinyalinin düzenlenmesi, desensitizasyon ve endositoz. Eczane. orada 2006, 111, 260–271.
11. Schoepp, DD Merkezi sinir sistemindeki presinaptik metabotropik glutamat reseptörlerinin işlevlerinin açıklanması. J. Pharmacol. Tecrübe. orada 2001, 299, 12–20.
12. Kang, Y.; Henchcliffe, C.; Verma, A.; Vallabhajosula, S.; O, B.; Kothari, PJ; Pryor, K.; Mozley, PD 18F-FPEB PET/CT, Parkinson Hastalığında mGluR5 Yukarı Düzenlemesi Gösteriyor. J. Nörogörüntüleme 2018, 29, 97–103.
13. Berg, D.; Godau, J.; Trenkwalder, C.; Eggert, K.; Csoti, I.; Storch, A.; Huber, H.; Morelli-Canelo, M.; Stamelou, M.; Ries, V.; et al. Levodopa kaynaklı diskinezilerin AFQ056 tedavisi: 2 randomize kontrollü çalışmanın sonuçları. Pzt. Uyuşmazlık 2011, 26, 1243–1250.
14. Armentero, M.-T.; Fancellu, R.; Nappi, G.; Bramanti, P.; Blandini, F. NMDA veya mGluR5 glutamat reseptörlerinin uzun süreli blokajı, nigrostriatal dejenerasyonu azaltırken, Parkinson hastalığının bir kemirgen modelinde bazal ganglion devrelerinde seçici metabolik değişikliklere neden olur. Nörobiyol. Dis. 2006, 22, 1–9.
15. Fiyat, DL; Rockenstein, E.; Ubi, K.; Phung, V.; MacLean-Lewis, N.; Aşkay, D.; Cartier, A.; Spencer, B.; Patrick, C.; Desplats, P.; et al. Lewy Vücut Hastalığı ve Alfa Sinükleinopatinin Transgenik Modellerinde mGluR5 Ekspresyonunda ve Sinyalinde Değişiklikler - Eksitotoksisite İçin Etkiler. PLoS BİR 2010, 5, e14020.
16. Zhang, Y.-N.; Fan, J.-K.; Gü, L.; Yang, H.-M.; Zhan, S.-Q.; Zhang, H. Metabotropik glutamat reseptörü 5, Parkinson hastalığında nörotoksisiteden korunmak için -sinüklein kaynaklı mikroglia iltihabını inhibe eder. J. Nöroinflamasyon 2021, 18, 23.
17. Wang, W.-W.; Zhang, X.-R.; Zhang, Z.-R.; Wang, X.-S.; Chen, J.; Chen, S.-Y.; Xie, C.-L. mGluR5 Antagonistlerinin L-Dopa ile Uyarılan Diskinezili Parkinson Hastaları Üzerindeki Etkileri: Randomize Kontrollü Çalışmaların Sistematik Bir İncelemesi ve Meta-Analizi. Ön. Yaşlanma Nörobilim. 2018, 10, 262.
18. Crabbe, M.; Van der Perren, A.; Weerasekera, A.; Himmelreich, U.; Baekelandt, V.; Van Laere, K.; Casteels, C. Akut Parkinson hastalığı ve levodopa kaynaklı diskinezinin 6-OHDA sıçan modelinde değiştirilmiş mGluR5 bağlama potansiyeli ve glutamin konsantrasyonu. Nörobiyol. Yaşlanma 2018, 61, 82–92.
19. Martin, LJ; Blackstone, CD; Huganir, RL; Fiyat, DL Sıçan beyninde bir metabotropik glutamat reseptörünün hücresel lokalizasyonu. Nöron 1992, 9, 259–270.
20. Abe, T.; Sugihara, H.; Nava, H.; Shigemoto, R.; Mizuno, N.; Nakanishi, S. İnositol fosfat/Ca2 artı sinyal iletimine bağlı yeni bir metabotropik glutamat reseptörü mGluR5'in moleküler karakterizasyonu. J. Biol. kimya 1992, 267, 13361–13368.
21. Hubert, GW; Paket, M.; Smith, Y. Sıçan ve Maymun Substantia Nigra'da mGluR1a ve mGluR5'in Farklı Hücre Altı Lokalizasyonu. J. Neurosci. 2001, 21, 1838–1847.
22. Shigemoto, R.; Nomura, S.; Ohishi, H.; Sugihara, H.; Nakanishi, S.; Mizuno, N. Sıçan beyninde bir metabotropik glutamat reseptörünün, mGluR5'in immünohistokimyasal lokalizasyonu. Nörobilim. Letonya 1993, 163, 53–57.
23. Romano, C.; Sesma MA; McDonald, BT; O'Malley, K.; Van den Pol, AN; Olney, JW Sıçan beyninde metabotropik glutamat reseptörü mGluR5 immünoreaktivitesinin dağılımı. J. Komp. Nörol. 1995, 355, 455–469.
24. Bhattacharyya, S. Grup I Metabotropik Glutamat Reseptörlerinin (mGluR'ler) iç hikayesi. Int. J. Biochem. Hücre Biol. 2016, 77, 205–212.
25. Katanya, OG; Landwehrmeyer, GB; Testa, C.; Standart, D.; Penney, J; Young, A. Metabotropik glutamat reseptörleri, gelişim sırasında farklı şekilde düzenlenir. Nörobilim 1994, 61, 481–495.
26. Lopez-Bendito, G.; Shigemoto, R.; Fairén, A.; Luján, R. Sıçan kortikal gelişimi sırasında grup I metabotropik glutamat reseptörlerinin farklı dağılımı. Sereb. Korteks 2002, 12, 625–638.
27. Romano, C.; van den Pol, AN; O'Malley, KL Sıçan beyninde metabotropik glutamat reseptörü mGluR5'in gelişmiş erken gelişimsel ifadesi: Protein, mRNA ek varyantları ve bölgesel dağılım. J. Komp. Nörol. 1996, 367, 403–412.
28. Martínez-Galán, JR; López-Bendito, G.; Lujan, R.; Shigemoto, R.; Fairén, A.; Valdeolmillos, erken doğum sonrası fare korteksindeki M. Cajal-Retzius hücreleri, fonksiyonel metabotropik glutamat reseptörlerini seçici olarak ifade eder. Avro. J. Neurosci. 2001, 13, 1147–1154.
29. Lujan, R.; Nusser, Z.; Roberts, JDB; Shigemoto, R.; Somogyi, Sıçan Hipokampüsündeki Dendritler ve Dendritik Dikenler Üzerinde Metabotropik Glutamat Reseptörleri mGluR1 ve mGluR5'in P. Perisinaptik Konumu. Avro. J. Neurosci. 1996, 8, 1488–1500.
30. Bhave, G.; Kerim, F.; Carlton, SM; Iv, RWG Periferik grup I metabotropik glutamat reseptörleri, farelerde nosisepsiyonu modüle eder. Nat. Nörobilim. 2001, 4, 417–423.
31. Zhang, Y.; Chen, K.; Sloan SA; Bennett, ML; Scholze, AR; O'Keeffe, S.; Phatnani, HP; Guarnieri, P.; Caneda, C.; Ruderisch, N.; et al. Serebral korteksin glia, nöronlar ve vasküler hücrelerinin bir RNA dizileme transkriptomu ve ekleme veritabanı. J. Neurosci. 2014, 34, 11929–11947.
32. Tsuchiya, D.; Kunishima, N.; Kamiya, N.; Jingami, H.; Morikawa, K. Bir antagonist ve hem glutamat hem de Gd3 plus ile kompleks haline getirilmiş bir metabotropik glutamat reseptörünün ligand bağlayıcı çekirdeklerinin yapısal görünümleri. Proc. Natl. Acad. bilim ABD 2002, 99, 2660–2665.
33. Wu, H.; Wang, C.; Gregory, KJ; Han, GV; Ço, HP; Xia, Y.; Niswender, CM; Katritch, V.; Meiler, J.; Cherezov, V.; et al. Bir Allosterik Modülatöre Bağlı Sınıf C GPCR Metabotropik Glutamat Reseptörü 1'in Yapısı. Bilim 2014, 344, 58–64.
34. Doré, AS; Bamya, K.; Patel, JC; Serranovega, MJ; Bennett, KA; Cooke, RM; Errey, JC; Cezayeri, A.; Han, S.; Tahan, B.; et al. C sınıfı GPCR metabotropik glutamat reseptörü 5 transmembran alanının yapısı. Nat. Hücre Biol. 2014, 511, 557–562.
35. Burgueño, J.; Zenginleştir, C.; Canela, EL; Mallol, J.; Lluís, C.; Franco, R.; Ciruela, F. Metabotropik glutamat tip 1 reseptörü, düşük yoğunluklu caveolin bakımından zengin plazma membran fraksiyonlarında lokalize olur. J. Neurochem. 2003, 86, 785–791.
36. Francesconi, A.; Kumari, R.; Zukin, RS Grup I Metabotropik Glutamat Reseptör Kaçakçılığı ve Caveolar/Lipid Raft Yoluyla Sinyal Verme Yönetmeliği. J. Neurosci. 2009, 29, 3590–3602.
37. Kumari, R.; Castillo, C.; Francesconi, A. Grup I Metabotropik Glutamat Reseptörleri Tarafından Agoniste Bağımlı Sinyalleme, Lipid Alanlarıyla İlişkilendirilerek Düzenlenir. J. Biol. kimya 2013, 288, 32004–32019.
38. Hermans, E.; Challiss, J. Grup I metabotropik glutamat reseptörlerinin yapısal, sinyal verme ve düzenleyici özellikleri: Prototipik aile C G-protein-bağlı reseptörler. biyokimya J.2001, 359, 465–484.
39. Lu, W.-Y.; Xiong, Z.-G.; Lei, S.; Orser, BA; Dudek, E.; Browning, MD; Macdonald, JF G-protein-bağlı reseptörler, NMDA reseptörlerini düzenlemek için protein kinaz C ve Src yoluyla hareket eder. Nat. Nörobilim. 1999, 2, 331–338.
40. Alagarsamy, S.; Marino, MJ; Rouse, ST; Gereau, R.; Heinemann, SF; Conn, PJ NMDA reseptörlerinin aktivasyonu, doğal ve rekombinant sistemlerde mGluR5'in duyarsızlaşmasını tersine çevirir. Nat. Nörobilim. 1999, 2, 234–240.
41. Heidinger, V.; Manzerra, P.; Wang, XQ; Strasser, U.; Yu, SP; Choi, DW; Behrens, MM Metabotropik glutamat reseptörü 1-NMDA reseptörü akımının yukarı regülasyonunu indükledi: Kortikal nöronlarda Pyk2/Src-ailesi kinaz yolu aracılığıyla aracılık. J. Neurosci. 2002, 22, 5452–5461.
42. Tu, JC; Xiao, B.; Yuan, JP; Lanahan, AA; Leoffert, K.; Li, M.; Linden, DJ; Worley, PF Homer Prolin Açısından Yeni Bir Motifi Bağlıyor ve Grup 1 Metabotropik Glutamat Reseptörlerini IP3 Reseptörleriyle Bağlıyor. Nöron 1998, 21, 717–726.
43. Tu, JC; Xiao, B.; Naisbitt, S.; Yuan, JP; Petralia, RS; Frenci, P.; Doğan, A.; Aakalu, VK; Lanahan, AA; Sheng, M.; et al. Postsinaptik Yoğunluk Proteinlerinin Shank Ailesi tarafından mGluR/Homer ve PSD-95 Komplekslerinin Bağlanması. Nöron 1999, 23, 583–592.
44. Rong, R.; Ahn, J.-Y.; Huang, H.; Nagata, E.; Kalman, D.; Kapp, JA; Tu, J.; Worley, PF; Snyder, SH; Ye, K. PI3 kinaz arttırıcı— Homer kompleksi, mGluR1 ile PI3 kinazı birleştirerek nöronal apoptozu önler. Nat. Nörobilim. 2003, 6, 1153–1161.
45. Hou, L.; Klann, E. Rapamisin Sinyal Yolunun Fosfoinositid 3-Kinaz-Akt-Memeli Hedefinin Etkinleştirilmesi Metabotropik Glutamat Reseptörüne Bağlı Uzun Süreli Depresyon için Gereklidir. J. Neurosci. 2004, 24, 6352–6361.
46. Aramori, I.; Nakanishi, S. Transfekte edilmiş CHO hücrelerinde metabotropik bir glutamat reseptörü olan mGluRl'nin sinyal iletimi ve farmakolojik özellikleri. Nöron 1992, 8, 757–765.
47. Mao, L.; Yang, L.; Tang, S.; Şamdanı, S.; Zhang, G.; Wang, JQ The Scaffold Protein Homer1b/c Metabotropik Glutamat Reseptörü 5'i Nöronlardaki Hücre Dışı Sinyalle Düzenlenen Protein Kinaz Kaskadlarına Bağlar. J. Neurosci. 2005, 25, 2741–2752.
48. Nicodemo, AA; Pampillo, M.; Ferreira, LT; Dale, LB; Kregan, T.; Ribeiro, FM; Ferguson, SS Pyk2, metabotropik glutamat reseptörü G protein sinyalini ayırır, ancak ERK1/2 aktivasyonunu kolaylaştırır. Mol. Beyin 2010, 3, 4.
49. Balazs, R. Glutamatın Trofik Etkisi. Curr. Tepe. Med. kimya 2006, 6, 961–968.
50. Biber, K.; Laurie, DJ; Berthele, A.; Somer, B.; Tölle, TR; Gebicke-Härter, P.-J.; Van Calker, D.; Boddeke, Astrositler ve Mikroglia'da Grup I Metabotropik Glutamat Reseptörlerinin HWGM İfadesi ve Sinyali. J. Neurochem. 1999, 72, 1671–1680.
51.Miller, S.; Romano, C.; Cotman, CW Kortikal astrositlerde bir fosfoinositid-bağlı metabotropik glutamat reseptörünün büyüme faktörü artışı. J. Neurosci. 1995, 15, 6103–6109.
52. Pasti, L.; Volterra, A.; Pozzan, T.; Carmignoto, P. Astrositlerde Hücre İçi Kalsiyum Salınımları: Nöronlar ve Astrositler In Situ Arasında Son Derece Plastik, Çift Yönlü Bir İletişim Biçimi. J. Neurosci. 1997, 17, 7817–7830.
53. Niswender, CM; Conn, PJ Metabotropik Glutamat Reseptörleri: Fizyoloji, Farmakoloji ve Hastalık. Annu. Rev. Pharmacol. Toksikol. 2010, 50, 295–322.
54. Servetja, J.-M.; Masgrau, R.; Sarri, E.; Picatoste, F. Grup I Metabotropik Glutamat Reseptörleri, Sıçan Kültürlü Astrositlerde Fosfolipaz D Stimülasyonuna Aracılık Eder. J. Neurochem. 1999, 72, 1441–1447.
55. Peavy, RD; Conn, Metabotropik Glutamat Reseptörlerinin Uyarılması ile Kültürlenmiş Sıçan Kortikal Glia'sında Mitojenle Aktive Edilen Protein Kinazın PJ Fosforilasyonu. J. Neurochem. 1998, 71, 603–612.
56. Byrnes, KR; Stoica, B.; Loane, D.; Riccio, A.; Davis, M.; Faden, AI Metabotropik glutamat reseptörü 5 aktivasyonu, mikroglial ilişkili enflamasyonu ve nörotoksisiteyi inhibe eder. Glia 2009, 57, 550–560.
57. Iacovelli, L.; Bruno, V.; Salvatore, L.; Melchiorri, D.; Gradini, R.; Caricasole, A.; Barletta, E.; De Blasi, A.; Nicoletti, F. Doğal grup-III metabotropik glutamat reseptörleri, mitojenle aktive olan protein kinaz/fosfatidilinositol-3-kinaz yollarına bağlanır. J. Neurochem. 2002, 82, 216–223.
58. Krupnick, JG; Benovic, JL G proteininde reseptör kinazlarının ve arrestinlerin rolü — Çiftli reseptör düzenlemesi. Annu. Rev. Pharmacol. Toksikol. 1998, 38, 289–319.
59. Kelly, E.; Bailey, C.; Henderson, G. GPCR desensitizasyonunun agonist-seçici mekanizmaları. Br. J. Pharmacol. 2008, 153, S379–S388.
60. Ferguson, SS G proteinine bağlı reseptör endositozunda gelişen kavramlar: Reseptör desensitizasyonu ve sinyalleşmedeki rol. Eczane. Rev. 2001, 53, 1–24.
61. Francesconi, A.; Duvoisin, RM Metabotropik glutamat reseptör sinyali üzerinde protein kinaz C ve protein kinaz A'nın karşıt etkileri: reseptör-G protein birleştirme bölgesinin fosforilasyonu yoluyla inositol trisfosfat/Ca2 artı yolunun seçici duyarsızlaştırılması. Proc. Natl. Acad. bilim ABD 2000, 97, 6185–6190.
62. Gereau, RW; Heinemann, SF Metabotropik Glutamat Reseptörünün Hızlı Desensitizasyonunda Protein Kinaz C Fosforilasyonunun Rolü. Nöron 1998, 20, 143–151.
63. Minakami, R.; Jinnai, N.; Sugiyama, H. Metabotropik Glutamat Reseptör Alt Tipi 5'in (mGluR5) Fosforilasyonu ve Calmodulin Bağlanması İn Vitro Antagonistiktir. J. Biol. kimya 1997, 272, 20291–20298.
64. Dale, LB; Bhattacharya, M.; Anborgh, PH; Murdoch, B.; Bhatia, M.; Nakanishi, S.; Ferguson, SS G Proteine Bağlı Reseptör Kinaz Aracılı Metabotropik Glutamat Reseptörü 1A'nın Desensitizasyonu Hücre Ölümüne Karşı Korur. J. Biol. kimya 2000, 275, 38213–38220.
65. Dale, LB; Babwah, AV; Bhattacharya, M.; Kelvin, DJ; Ferguson, SS Metabotropik Glutamat Reseptörü Aracılı İnositol 1,4,5-Trifosfat, Kalsiyum ve Protein Kinaz C Salınımlarının SS Mekansal-Zamansal Modeli: Protein kinaz C'ye bağlı reseptör fosforilasyonu gerekli değildir. J. Biol. kimya 2001, 276, 35900–35908.
66. Sorensen, SD; Conn, P. G proteinine bağlı reseptör kinazları, metabotropik glutamat reseptörü 5 fonksiyonunu ve ekspresyonunu düzenler. Nörofarmakoloji 2003, 44, 699–706.
67. Ribeiro, F.; Ferreira, LT; Paket, M.; Kregan, T.; Ding, S.; Gros, R.; Ferguson, SS Nöronlarda Metabotropik Glutamat Reseptörü 5'in Fosforilasyondan Bağımsız Düzenlenmesi G Protein-bağlı Reseptör Kinaz 2 ile Duyarsızlaştırma ve İçselleştirme. J. Biol. kimya 2009, 284, 23444–23453.
68. Sallese, M.; Salvatore, L.; D'Urbano, E.; Sala, G.; Storto, M.; Launey, T.; De Blasi, A.; Nicoletti, F.; Knopfel, T. G-protein-bağlı reseptör kinaz GRK4, metabotropik glutamat reseptörlerinin homolog desensitizasyonuna aracılık eder. FASEB J. 2000, 14, 2569–2580.
69. Yamasaki, T.; Fujinaga, M.; Kawamura, K.; Furutsuka, K.; Nengaki, N.; Shimoda, Y.; Shiomi, S.; Takei, M.; Hashimoto, H.; Yui, J.; et al. İnsan Alfa-Sinüklein A53T Transgenik Sıçanlarda Parkinson Hastalığının Patolojik İlerlemesi Sırasında Striatal mGluR1'de Dinamik Değişiklikler Ama mGluR5'te Değil: Çoklu PET Görüntüleme Çalışması. J. Neurosci. 2016, 36, 375–384.
Shofiul Azam 1,† , Md. Jakaria 1,2,†, JoonSoo Kim 1, Jaeyong Ahn 1, In-Su Kim 3,* ve Dong-Kug Choi 1,3,*
1 Uygulamalı Hayat Bilimleri Bölümü, Enstitü, BK21 Programı, Konkuk Üniversitesi, Chungju 27478, Kore; shofiul_azam@hotmail.com (SA); md.jakaria@florey.edu.au (MJ); kgfdkr@gmail.com (JK); Neverland072@kku.ac.kr (JA)
2 Melbourne Demans Araştırma Merkezi, The Florey Institute of Neuroscience and Mental Health, The University of Melbourne, Parkville, VIC 3052, Avustralya
3 Biyoteknoloji Bölümü, Biyomedikal ve Sağlık Bilimleri Fakültesi, İnflamatuvar Hastalık Araştırma Enstitüsü (RID), Konkuk Üniversitesi, Chungju 27478, Kore
* Yazışma: kis5497@hanmail.net (I.-SK); choidk@kku.ac.kr (D.-KC); Tel.: artı 82-43-840-3905 (I.-SK); artı 82-43-840-3610 (D.-KC); Faks: artı 82-43-840-3872 (D.-KC)
† Bu yazarlar bu çalışmaya eşit katkıda bulunmuştur.